PART XVI · RENAL AND GENITOURINARY SYSTEM · CHAPTER 74
腎臟發育Renal Development
本章重點 Key Points
- 腎臟器官生成(renal organogenesis)是基因驅動的計畫性生長與互補的細胞凋亡(apoptosis)之間的複雜交互作用,讓具功能的腎臟、血管床,以及與其交織的生殖系統得以正常發育。
- 腎素-血管張力素系統(renin-angiotensin system, RAS)對腎臟正常發育至關重要:母體-胎盤 RAS 與發育中的胎兒 RAS 之間有精細的交互作用,且具有受荷爾蒙與性別影響的組態,協助血管與腎臟的器官生成。
- 早產(<37 週)與低出生體重(LBW)都與慢性腎臟病(chronic kidney disease, CKD)相關;隨著治療進步、存活率提高,這群病人的長期健康最佳化值得更多研究。
導論:腎臟的功能與腎元數量 Introduction
後腎的複雜性與腎元 The Metanephric Kidney and the Nephron
- 人類腎臟(精確地說是後腎 metanephric kidney)極為複雜,含超過 25 種功能與型態各異的細胞。
- 主要功能(由腎元 nephron 執行):過濾廢物、維持電解質與體液恆定、協助骨骼礦化、調節血壓與血液組成。
- 每個腎臟的腎元數為 200,000 至 2,000,000 個;生長高峰在第三孕期,腎元生成(nephrogenesis)於妊娠 36 週前完成。
- 此後腎臟的生長來自個別腎元變大,而非腎元數目增加。
本章的核心邏輯腎元數量在出生前就已決定,出生後只能靠既有腎元變大來代償。因此任何減少腎元數量的因素,都可能留下終生影響。
為什麼要研究腎臟發育 Why Development Matters
- 腎臟器官生成是複雜且尚未完全了解的過程。影響母體與胎兒健康的因素(包括子宮內環境因素)可導致型態發生失敗,造成先天性腎臟與泌尿道異常(congenital anomalies of the kidney and urinary tract)。
- 若腎元數量因早產、低出生體重,或暴露於傷害發育中腎臟的環境因子而減少,成年後可能出現腎臟病與高血壓。
- 人類腎臟發育的許多步驟仍屬未知,目前多由動物模型外推。
- 本章涵蓋:已知(及推測)的分子與細胞機轉、環境因素對胎兒腎臟的影響,以及 CKD 與其他成人健康結果的長期風險。
影響器官生成的因素 Factors Influencing Organogenesis
轉錄因子與訊息傳遞路徑 Transcription Factors and Signaling Pathways
- 器官生成始於細胞群的早期圖樣化(patterning):透過基因表現與轉錄因子(transcription factors),決定各器官特有的細胞命運。
- 轉錄因子由 DNA 資訊指導產生,納入較大的分子網絡,最終主導下游訊息路徑(原文對轉錄因子本質的描述見章末「閱讀時請留意」)。
- 同一因子,用途不同:轉錄因子在各器官系統中可能有不同任務。
- 同一路徑,反覆使用:訊息路徑在不同器官的發育中重複出現,在同一器官的多個分化階段也可能重複使用。
上皮-間質交互誘導 Reciprocal Epithelial–Mesenchymal Induction
- 訊息路徑建立上皮的型態發生(epithelial morphogenesis):賦予細胞極性、使組織彎曲摺疊而塑形,並讓上皮藉訊息與周圍鬆散的間質(mesenchyme)互動。
- 腎臟發育是交互誘導(reciprocal induction)的典型例子:
- 間質 → 上皮後腎間質(metanephric mesenchyme)表現轉錄因子 Wilms tumor 1(WT1),帶動神經膠細胞衍生神經營養因子(glial cell–derived neurotropic factor, GDNF)表現,這是上皮性輸尿管芽(ureteral bud)向外生長的關鍵。
- 上皮 → 間質輸尿管芽再回頭對後腎間質發出訊號,誘導形成腎元單位。
- 平衡輸尿管芽與發育中的後腎間質之間必須維持精細的平衡,組織才能分化為最終的腎臟單位。
物理力與細胞外基質 Physical Forces and Extracellular Matrix
- 影像技術進步、離體器官培養(ex vivo organ culture)與計算策略,增進了對器官發育中細胞內外物理力的了解。
- 跨物種研究讓我們更了解細胞外基質(extracellular matrix)如何調節發育中組織的力學性質;細胞外基質也是細胞遷移、旋轉與延長所需的基質(substrata)。
- 這類研究目前多在非人類組織進行,但對釐清人類器官發育的關鍵步驟很重要,也可能與再生醫學(regenerative medicine)相關。
腎臟血管床的發育 Development of the Renal Vascular Bed
血管系統為何最先發育 Vascular System in Embryogenesis
- 所有脊椎動物的血管系統都是高度組織化的動脈、靜脈與微血管分支網絡。
- 循環系統連同血液系統,是胚胎發生中第一個開始運作的生理系統。
- 兩者必須同步發育,因為胚胎變大後,單靠擴散(diffusion)已不足以供應氧氣與養分。
- 血管系統的形成因此攸關組織生長與分化、氧氣與養分輸送,以及廢物移除。
血管新生的兩種過程 Vasculogenesis and Angiogenesis
- 血管生成(vasculogenesis)與血管新生(angiogenesis)透過內皮細胞的旁分泌(paracrine)作用,在決定胚胎圖樣上扮演主要角色。血管對器官發育、分化與出生後重塑都很關鍵。
- 雙向關係:發育中的器官向血管內皮細胞發出訊號;內皮細胞也回傳器官形成的圖樣指令。
- 起始時間:血管發育在原腸化(gastrulation)後不久開始:血島(blood islets)出現在卵黃囊,血管母細胞(angioblast)前驅細胞出現在頭部間質與後側板中胚層(posterior lateral plate mesoderm)。
- 後腎胚基(metanephric blastema)內已有血管前驅細胞。
- 局部環境決定分化:小鼠研究中,將不同的腎外內皮細胞移植到發育中的腎床後,仍可形成腎血管樹,顯示局部環境訊號啟動腎內皮層的分化。
- 血管新生一般發生在胚胎期較晚階段,以出芽(sprouting)、橋接(bridging)與套疊式生長(intussusceptive growth)擴增既有血管床。
- 原始血管最後經分支、修剪與特化,以配合所供應器官的功能。氧分壓與血流動力對形成局部血管的精細圖樣非常重要。
調控血管發育的生長因子 Angiogenic Growth Factors
血管生長因子不只是血管發育所必需,也參與器官圖樣化。
| 因子 | 來源 | 作用 |
|---|---|---|
| VEGF vascular endothelial growth factors | 原文稱內皮細胞本身是這些蛋白的來源;發育中腎絲球區的足細胞(podocyte)大量分泌;腎小管可能分泌 | 促進血管母細胞分化與管腔形成,是最重要的因子;早期參與血管圖樣化,後期調節出生前後正常組織的內皮維持;透過與造血幹細胞作用,幫助骨髓血液成分動員;足細胞分泌使該區血管分支增加;參與直血管的出生後發育;協調腎絲球與腎小管的發育 |
| FGF fibroblast growth factors | — | 與肝素結合的生長因子,作用於內皮細胞表面受體;主要功能是協助控制器官生成期間血管樹的分支型態發生 |
| RAS | — | 動物模型研究提示,出生後的血管分支可能由 RAS 介導 |
- 各區域特有的分支圖樣,可能來自局部因子與不同的局部前驅細胞族群。
- 腎絲球後血管床(post-glomerular vascular bed)與腎小管結構的直血管(vasa recta)緊密相鄰,可能受腎小管自身分泌的 VEGF 等血管新生因子調控。
- 腎臟血管是經由血管生成與血管新生同時進行而發育的。
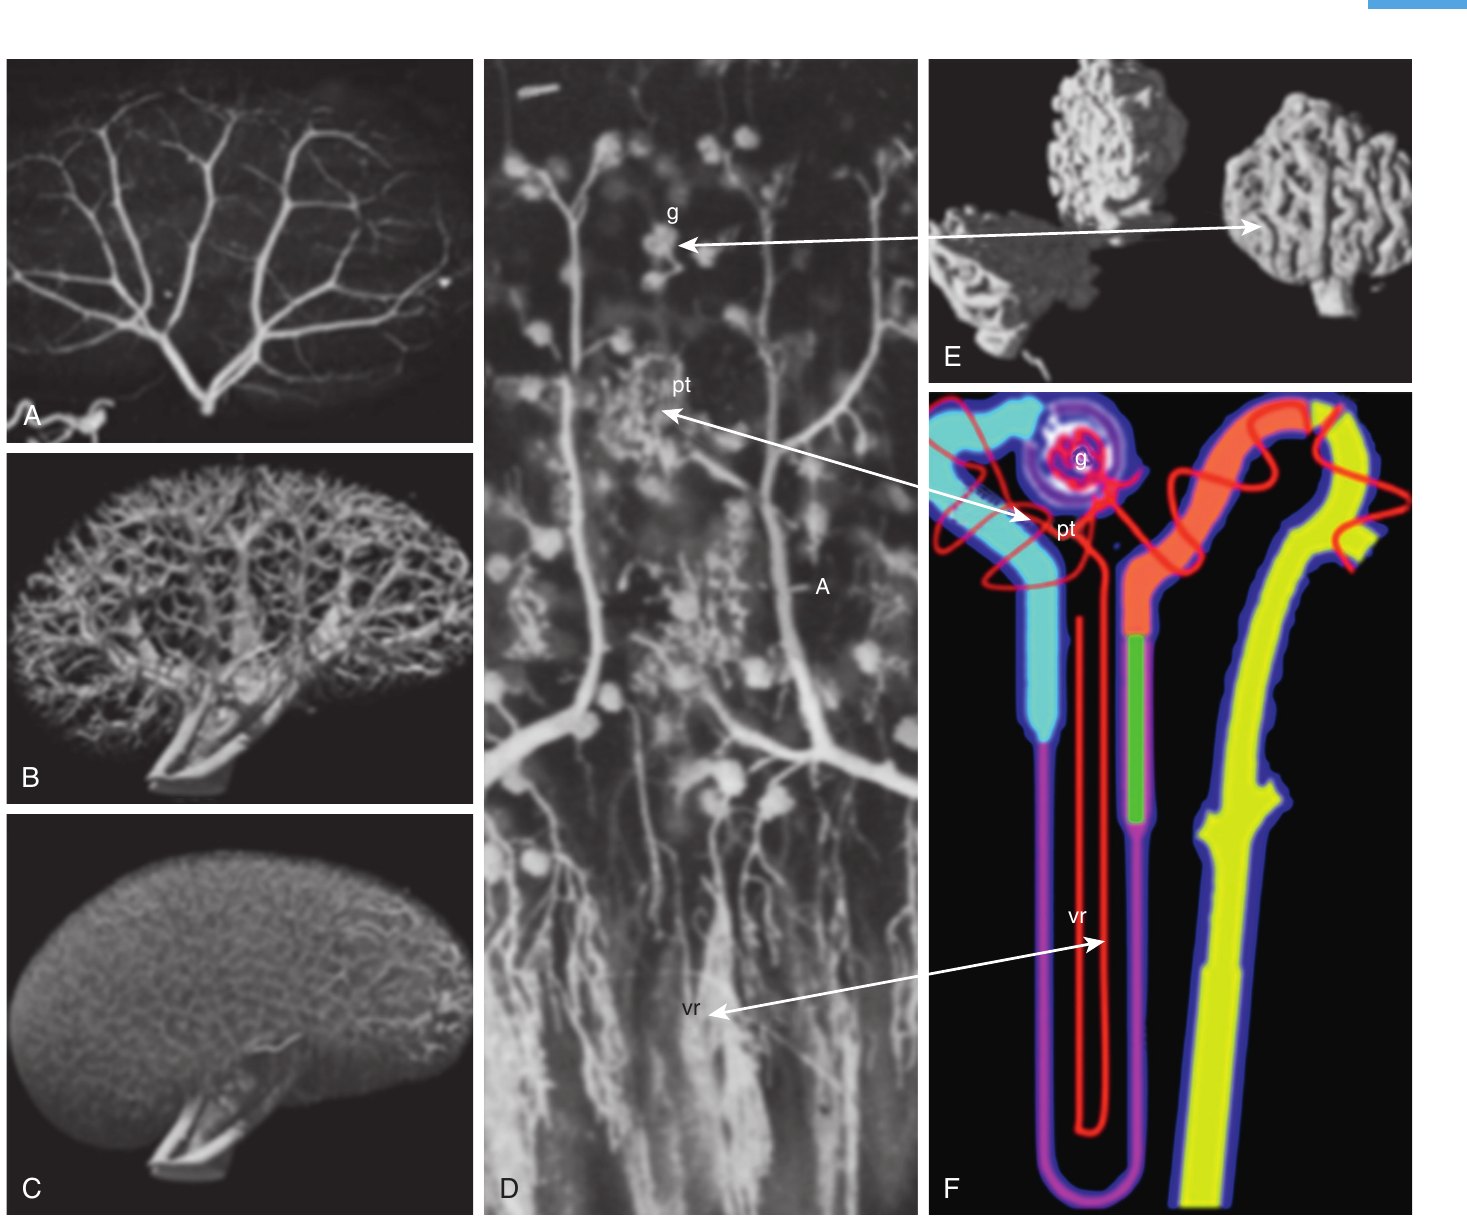
腎血管床的獨特之處 Unique Features of the Renal Vasculature
- 腎臟佔體重不到 0.8%,卻接受心輸出量的 20%;這樣的血流量是清除代謝廢物、維持血中體液與離子恆定的關鍵。
- 腎動脈由靠近腎髓質的腎門(hilum)進入;雖然離髓質近,卻有 90% 的血液直接送到周邊的腎絲球微血管床,只有 10% 送到髓質。
- 動脈結構是把血液導向腎絲球的關鍵。此圖樣形成的機轉還不清楚,但隨發育進行,髓質部動脈樹分支很少,皮質動脈則分支豐富,尤其是環繞腎絲球的入球小動脈(afferent arterioles)。
三段微血管床的功能配合 Glomerular, Peritubular, and Medullary Capillary Beds
| 血管床 | 結構特性 | 功能 |
|---|---|---|
| 腎絲球微血管 | 內皮對液體與低分子量溶質高度通透;周圍腎血管阻力很高 | 高阻力使超過濾液以 125 mL/min 流經尿液空間;由腎絲球微血管流出的液體量約為身體其他微血管系統的 50 倍 |
| 腎小管周圍微血管 peritubular capillaries | 膠體滲透壓(oncotic pressure)高 | 回收在高腎絲球過濾率(GFR)下否則會流失的溶質與液體;腎小管再吸收,微血管藉高膠體滲透壓送回全身循環,兩者互補 |
| 直血管 vasa recta | 位於髓質、緊鄰腎小管;長環狀排列,貼近亨利氏環(loop of Henle) | 輸送氧氣與養分到髓質,帶回髓質腎小管再吸收的電解質與溶質;提高此區滲透壓以保留水分,對尿液濃縮很關鍵 |
血液最後在皮質-髓質交界區匯入靜脈系統,經腎靜脈流出腎臟。
腎臟型態發生 Renal Morphogenesis
從中間中胚層到後腎 From Intermediate Mesoderm to Metanephros
- 哺乳類泌尿生殖系統源自中間中胚層(intermediate mesoderm)。
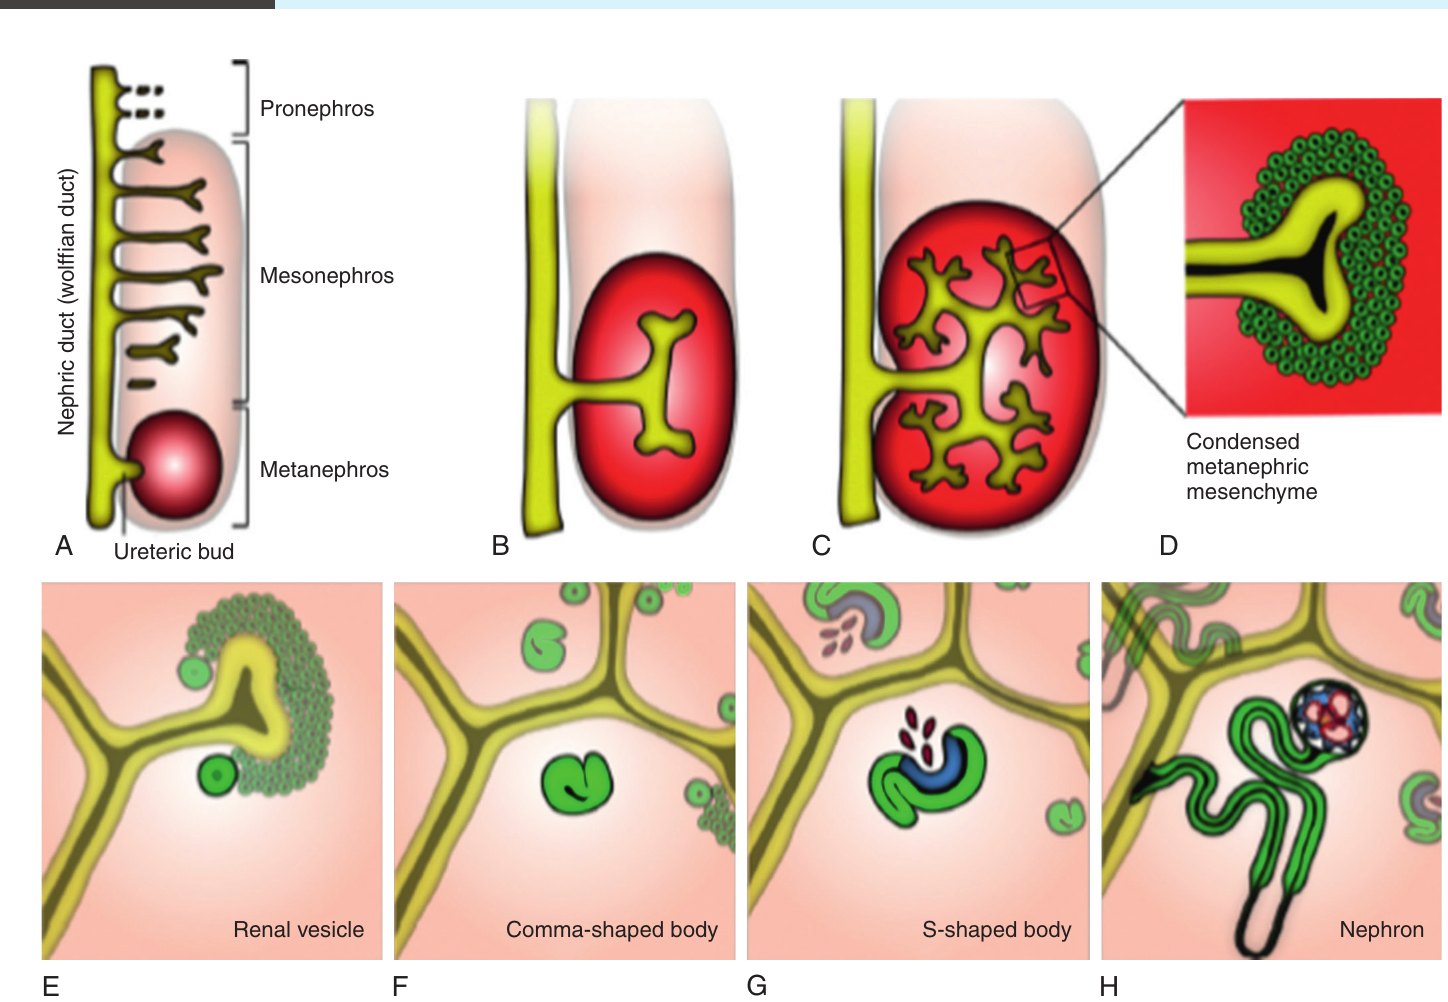
- 成對的上皮性腎管(nephric ducts)在胚胎左右兩側由背側發生、向尾側延長,並誘導中間間質中胚層形成前腎管與中腎管。
- 這些管道持續延長,直到抵達並融合於泄殖腔(cloaca);泄殖腔是膀胱與尿道的前驅構造。
- 前腎(pronephros)與中腎(mesonephros)是短暫存在、功能極少的原始腎小管;中腎小管只有一部分留下來,成為男性生殖系統的一部分。
- 後腎(metanephric kidney)來自腎管後段:後腎間質與腎管交互誘導,形成輸尿管芽。
- 人類後腎分化約始於妊娠 5 週,第一批有功能的腎元約在第 8 週形成。
- 輸尿管芽侵入後腎間質,啟動間質轉上皮的分化,最後形成成熟腎臟的腎絲球-腎元-集尿管系統。
腎管的形成與維持 Nephric Duct Formation and Maintenance
- BMP(bone morphogenetic protein)訊息看來調控中間中胚層的需求;也是維持前腎管基因表現所必需,使發育中的腎管得以存活與分化。
- 配對盒基因 PAX2 與 PAX8(paired box genes)看來是驅動腎管發育、延長與維持所必需。
泌尿道與生殖道的分離 Separation of Urinary and Genital Tracts
早期腎臟發育的最後階段,是將生殖道與泌尿道分開。
- 輸尿管芽從腎管伸出後,經細胞凋亡使輸尿管與總腎管(common nephric duct)分離,形成通往日後膀胱(泄殖腔結構)的新輸尿管膀胱交界。
- 凋亡在尾側最活躍,在輸尿管芽分支點較不活躍。
- 凋亡是透過下調 RET(受體酪胺酸激酶)活性發生。輸尿管重塑仍需要 RET,但表現量低於從腎管長出輸尿管芽所需。
- 總腎管最終被清除,是泌尿道功能正常的必要條件。
| 異常 | 可能結果 |
|---|---|
| 輸尿管重塑缺失或延遲 | 可能造成腎盂輸尿管交界處阻塞(ureteropelvic junction obstruction) |
| 總腎管凋亡過度活化 | 可能造成膀胱輸尿管逆流(vesicoureteral reflux) |
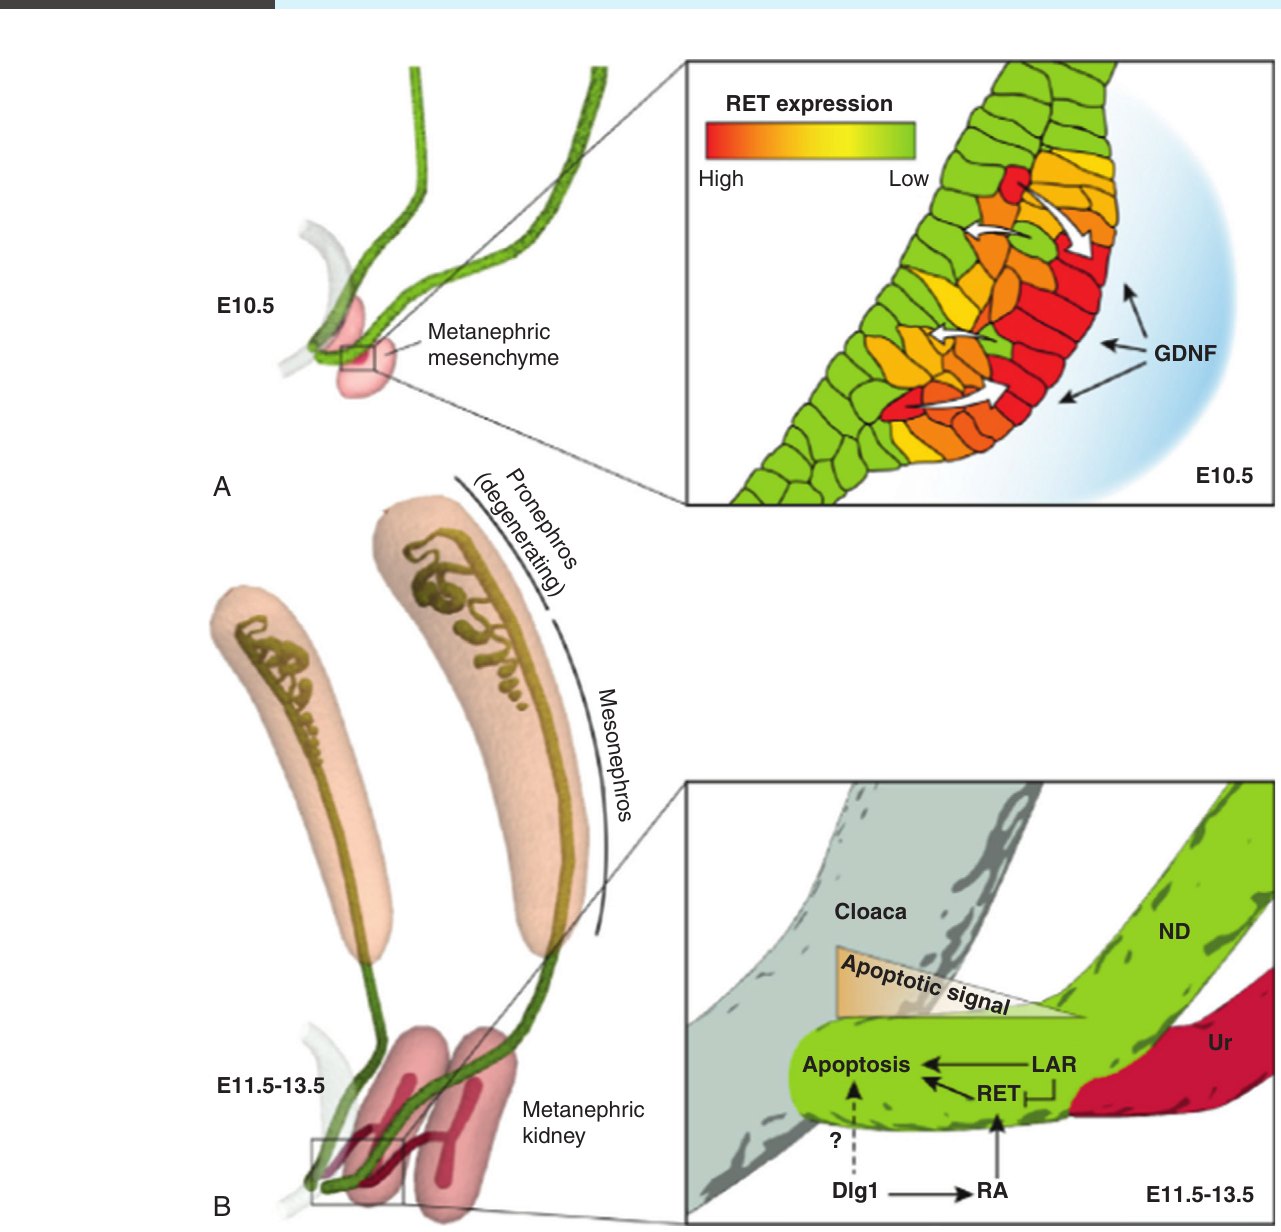
RET-GDNF 路徑與輸尿管芽 The RET–GDNF Pathway and Ureteric Budding
- 輸尿管芽發育需要活化的 RET-GDNF 路徑:GDNF 位於鄰近腎管的後腎間質,與沿腎管分布的 RET 作用,啟動輸尿管芽發育。
- 缺少 RET 時,輸尿管誘導失敗;但在把 GDNF 培養於腎管旁的研究中,輸尿管芽會在異位形成。
- Wnt(Wingless/integrated)路徑因子(特別是因子 11)與 FGF 會上調 GDNF,協助發育中的輸尿管-腎元樹分支。
輸尿管分支與腎元分節 Ureteric Branching and Nephron Segmentation
- 輸尿管芽伸向後腎間質後開始分支,形成輸尿管樹(ureteric tree)。
- 分支只發生在輸尿管尖端,靠 RET-GDNF 的交互訊號;此訊號上調 RET-Wnt11,進一步增加 GDNF 分泌。原文指出這個輸尿管訊號定位於帽狀間質(cap mesenchyme)。
- 經過持續的增生、延長、圖樣化與分節,腎元的各功能區形成可辨認的成人腎元(腎絲球、近端小管、亨利氏環、遠端小管),全部連回集尿管(collecting duct)。
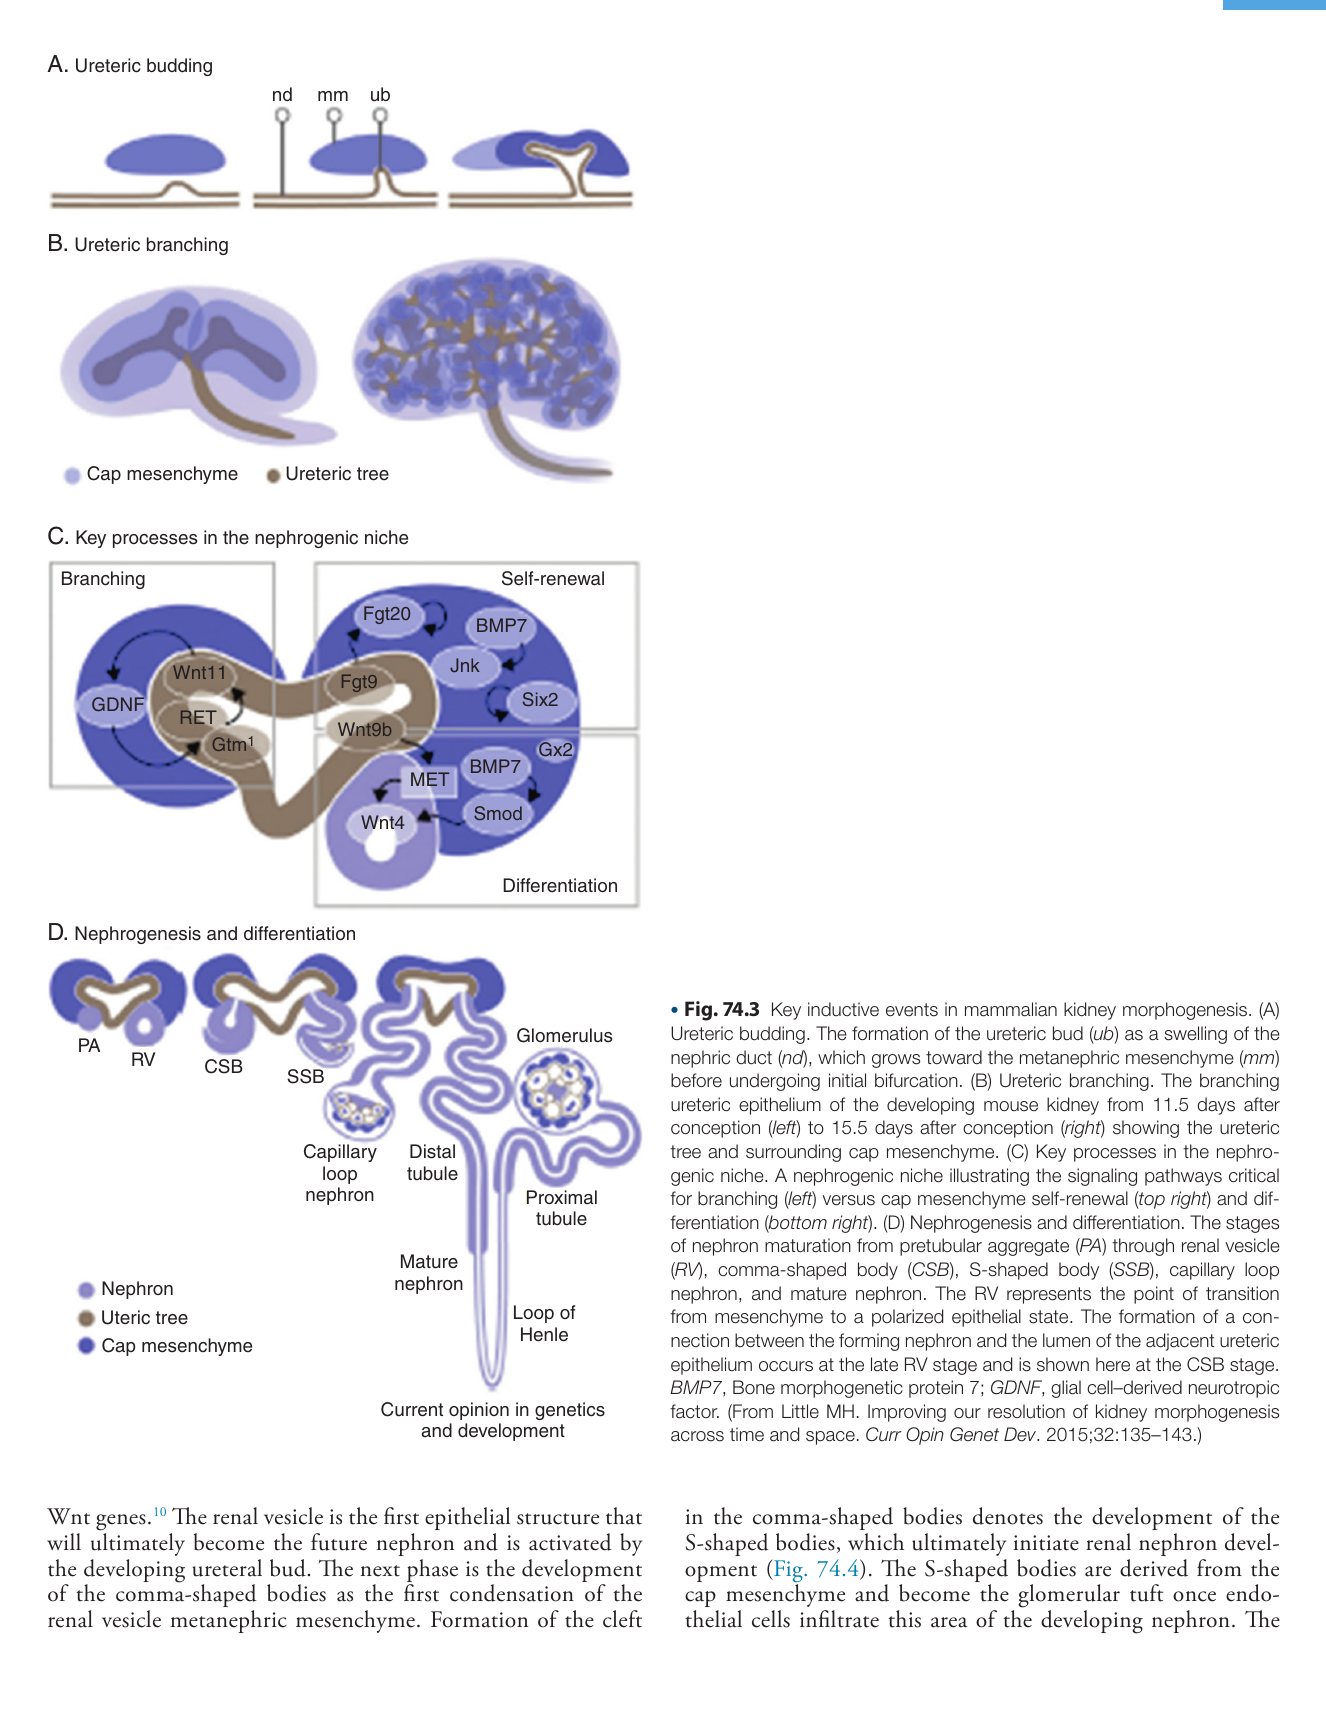
腎元的形成階段 Stages of Nephron Formation
輸尿管芽上皮在帽狀間質區侵入後腎間質後,此處間質受 Wnt 基因影響,凝聚包圍輸尿管芽尖端。之後依序為:
- 腎小泡 renal vesicle第一個日後成為腎元的上皮構造,由發育中的輸尿管芽活化;圖 74.3 說明它是間質轉為極化上皮的轉折點。
- 逗號形小體 comma-shaped body腎小泡後腎間質的第一次凝聚;小體內出現裂隙(cleft),代表 S 形小體開始發育。
- S 形小體 S-shaped body源自帽狀間質,啟動腎元發育。與輸尿管尖端融合後決定腎元的軸向:近端成為腎絲球,遠端與輸尿管芽分支系統融合成集尿管。內皮細胞浸潤後形成腎絲球叢(glomerular tuft)。
- 腎元生成與血管生成的銜接S 形小體期的足細胞分泌 VEGF,吸引遷移中的血管內皮細胞到 S 形小體裂隙,兩條發育路線在此相接。
| 分子 | 本節所述角色 | 異常時 |
|---|---|---|
| BMP | 看來調控中間中胚層需求;維持前腎管基因表現 | — |
| PAX2、PAX8 | 看來是腎管發育、延長與維持所必需 | — |
| WT1 | 於後腎間質帶動 GDNF 表現 | 見「腎絲球發育」一節 |
| GDNF | 由後腎間質分泌,活化輸尿管芽發育 | 培養於腎管旁時,輸尿管芽在異位形成 |
| RET | 與 GDNF 作用,啟動輸尿管芽;低表現量時參與輸尿管重塑 | 缺失時輸尿管誘導失敗 |
| Wnt(Wnt11)、FGF | 上調 GDNF,協助分支 | — |
| Wnt 基因 | 使間質凝聚包圍輸尿管芽尖端 | — |
| VEGF | 足細胞分泌,吸引內皮細胞到 S 形小體裂隙 | — |
分支終止與錨定基因 End of Branching and Anchor Genes
- 隨發育進行,輸尿管尖端與帽狀間質逐漸變小。人類的輸尿管分支約在妊娠第 14 至 15 週停止。
- 人類腎臟為多乳頭(multipapillate),約 8 至 15 葉,每葉約有 15 代集尿管分支。
- 腎元發育中廣泛的圖樣化與分節,由錨定基因(anchor genes)驅動;這些基因對所在細胞區室具有絕對專一性。
- 腎臟有超過 15 個不同的解剖區室,目前僅在 6 個次區室定義出 37 個錨定基因。
- 這些基因的作用尚不清楚,但可能藉由向局部間質釋放啟動子與組織因子,啟動腎元各區室的分化。
人鼠比較與腎元數的個體差異 Human–Mouse Comparison and Variation in Nephron Number
- 人類腎元發育常與小鼠比較,以外推可能相同或推測的步驟。
- 人類腎元數在個體間可能不同,尤其是總數偏低的情況,變異與下列因素有關:
- 早產、極度早產(<28 週)
- 低出生體重(<2500 g)
- 子宮內暴露於母體因素:子癇前症、其他高血壓、吸菸、營養不良、糖尿病及其他母體狀況
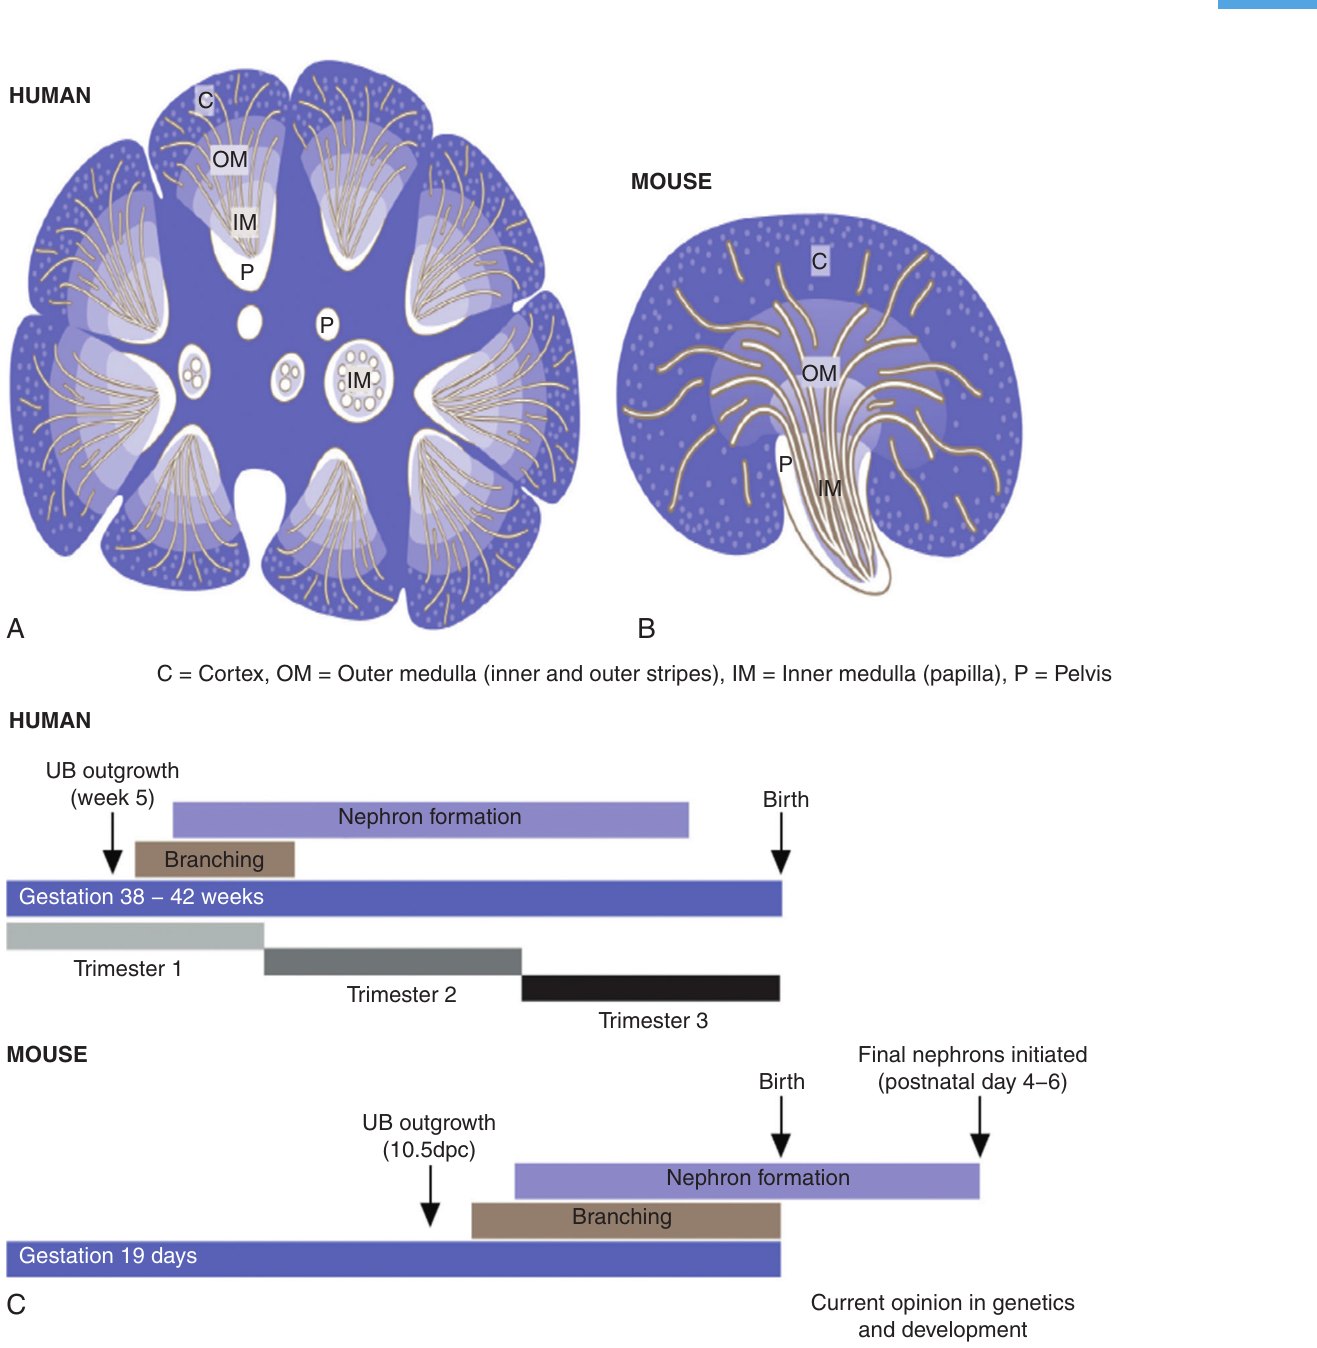
| 項目 | 人類 | 小鼠 |
|---|---|---|
| 腎臟構造 | 8–15 葉,多乳頭 | 單乳頭(unipapillate) |
| 妊娠長度 | 38–42 週 | 19 天 |
| 輸尿管芽外長 | 第 5 週 | 10.5 dpc |
| 最後腎元 | 出生前結束(見內文,約 34 至 36 週) | 出生後第 4–6 天起始 |
腎絲球發育 Glomerular Development
分階段形成與蛋白尿 Staged Formation
- 腎絲球分階段形成,仰賴腎絲球微血管內特定細胞類型的訊息傳遞。
- 發育中任何一個組成出錯,都可能降低腎元過濾能力,典型表現是蛋白尿(proteinuria)。
- 腎絲球與腎小管的發育緊密相連,腎絲球形成始於腎元發育的 S 形小體期。
微血管叢與足細胞 Capillary Tuft and Podocytes
- 腎元發育早期,腎絲球內皮前驅細胞位於 S 形構造裂隙,緊鄰發育中的足細胞。
- 最初的一條微血管環,最後成熟為構成腎絲球微血管叢的 6 至 8 條微血管環。
- 內皮前驅細胞的遷移可能來自局部足細胞分泌的 VEGF。足細胞釋放的 VEGF 量,透過促血管新生與抗血管新生訊息控制微血管發育。
- 足突(foot processes)是腎絲球過濾屏障的一部分,必須緊密連接;否則入球小動脈來的過濾液會漏出蛋白質與較大溶質,失去本應回到全身血管的蛋白、液體與溶質。
- 血管生成始於 S 形小體期:腎絲球足細胞表現多種 VEGF,誘導內皮細胞遷移至裂隙。
- S 形小體足細胞分泌 VEGF-A,造成靠近腎絲球基底膜、緊鄰腎絲球內皮細胞之足細胞的窗孔(fenestration),可能讓少量液體由血管叢進入腎絲球;但這些窗孔的功能與機轉仍不清楚。
WT1 與相關症候群 WT1 and Associated Syndromes
- WT1 是鋅指轉錄因子(zinc finger transcription factor),目前分離出 4 種異構體(isoforms)。
- 一般認為它可與 DNA 及信使 RNA 結合,在胎兒發育期的不同器官中作為抑制子或活化子。
- 小鼠研究顯示 WT1 對泌尿生殖發育很重要,對足細胞發育不可或缺,也可能參與足細胞維持。
- 人類 WT1 相互作用及表現異常在疾病中的影響,仍需進一步研究。
| 症候群 | 表現 | 遺傳機轉 |
|---|---|---|
| WAGR 症候群 | Wilms 腫瘤、無虹膜症(aniridia)、泌尿生殖異常、智能障礙 | 11p13 位點間質性缺失,此處含 WT1 與 PAX6 基因 |
| Denys-Drash 症候群 | 腎絲球繫膜硬化(mesangial sclerosis)、Wilms 腫瘤、性腺發育不全(gonadal dysgenesis) | WT1 突變被認為與這些異常有關 |
輸尿管的生長與發育 Ureteral Growth and Development
輸尿管的構造與蠕動 Structure and Peristalsis
- 輸尿管是把尿液由腎盂送到膀胱的肌肉管道。上段離開腎盂處是薄壁、漏斗狀的管子,穿過腹部時逐漸增厚,斜向進入膀胱,終止於膀胱三角(bladder trigone)。
- 管壁有兩種組織成分:
- 特化的襯裡管腔(原文寫 endothelial-lined,見章末「閱讀時請留意」)
- 外層間質外套:固有層(lamina propria)、多層平滑肌,以及最外層的外膜(tunica adventitia);外膜內含上下行的血管、神經與淋巴管
- 尿液不是被動流下,而是靠單向蠕動收縮推送到膀胱。
- 蠕動波由節律細胞(pacemaker cells)觸發,在腎盂輸尿管交界處的平滑肌細胞引起去極化收縮。
平滑肌功能異常與先天異常 Smooth Muscle Dysfunction and Congenital Anomalies
- 平滑肌功能異常(尤其在腎盂輸尿管或輸尿管膀胱交界處)會妨礙尿液由腎盂有效排到膀胱,可造成尿液排出障礙或逆流(reflux)。
- 上段或下段輸尿管阻塞,合併輸尿管擴張(hydroureter)或腎盂擴張(hydronephrosis)時,會傷害腎實質;阻塞嚴重時,腎功能可明顯下降甚至喪失。
- 這些狀況佔先天性腎臟與泌尿道異常的一大部分,常是潛在基因缺陷的表現。
- 目前這類缺陷常可在出生前由產前超音波診斷。
輸尿管的來源與時序 Origin and Timing
- 輸尿管與後腎都來自腎管:輸尿管芽由腎管外凸,經大量分支與延長成為腎內的管道系統,終於集尿管;輸尿管芽的柄部(stalk)則成為輸尿管的上皮部分。
- 輸尿管發育取決於輸尿管芽發育,以及 GDNF 與 RET 的結合;這會活化靠近腎管處組織形成管腔襯裡。
- 若 GDNF 訊號落在輸尿管芽正常位置的前方或後方,輸尿管可能異位開口於膀胱或尿道。
- 原文指出,由腎管產生的原始輸尿管在男性分化為輸精管(vas deferens),在女性則退化(此句見章末「閱讀時請留意」)。
- E11.5 至 E18.5輸尿管上皮表現 Shh 訊號(見下文)。
- E12離體後腎細胞培養實驗顯示,輸尿管間質已呈放射狀排列,含結締組織與平滑肌細胞,其發展為遠端輸尿管需依賴相鄰上皮。
- E12.5原文寫「在人類」自此日起,柄部遠端與腎管分離,併入膀胱,並與生殖管道結構分開。
- E13.5 至 E15.5平滑肌層開始發育。
- E16.5開始產尿,此時輸尿管柄周圍的上皮已分化為尿路上皮;具豐富收縮絲的終末分化平滑肌細胞分布於整條發育中的輸尿管。
輸尿管併入膀胱 Translocation Into the Bladder
為了保持通暢,輸尿管必須從腎管轉位到泄殖腔中發育的膀胱壁,分為兩步:
- 第一步腎管與泄殖腔融合,可能來自兩者間的相互訊息。轉位的精確機轉仍不清楚。
- 第二步輸尿管遠端併入膀胱壁,在此經歷細胞凋亡,直到輸尿管抵達膀胱三角的最終位置。
遠端成熟異常若遠端輸尿管成熟異常,輸尿管會在膀胱內或膀胱外呈盲端,形成輸尿管囊腫(ureterocele),或異位開口於膀胱、尿道,或沿著退化中腎管路徑的其他泌尿生殖道位置。這類輸尿管都伴有腎水腫。
| 發育環節 | 異常 | 結果 |
|---|---|---|
| 輸尿管芽位置 | GDNF 訊號落在正常位置前方或後方 | 輸尿管可能異位開口於膀胱或尿道 |
| 遠端輸尿管間質特化 | BMP4 缺少或減少 | 腎管與遠端輸尿管柄異位出芽 |
| 遠端輸尿管成熟 | 遠端成熟異常 | 輸尿管囊腫或異位輸尿管,伴腎水腫 |
| 總腎管清除 | 重塑缺失或延遲;凋亡過度活化 | 腎盂輸尿管交界處阻塞;膀胱輸尿管逆流 |
| 平滑肌功能 | 交界處平滑肌功能異常 | 尿液排出障礙或逆流;阻塞嚴重時腎實質受損,功能明顯下降甚至喪失 |
輸尿管分段與訊息分子 Regional Specification and Signaling
- 輸尿管近、中、遠段的形成,取決於該段的局部上皮與間質。
- 遠端輸尿管柄附近的間質會使柄延長;同樣的間質移植到近端輸尿管區域,則會分支並誘導腎元生成聚集體,形成類腎元構造。
- BMP4可能是遠端輸尿管間質特化的訊息分子;缺少或減少時,腎管與遠端輸尿管柄會出現異位出芽。
- Sonic hedgehog(Shh)於 E11.5 至 E18.5 由輸尿管上皮表現,藉由增加輸尿管間質生長促進發育。
- BMP4 看來會刺激 Shh,協助平滑肌細胞分化進入發育中的輸尿管。
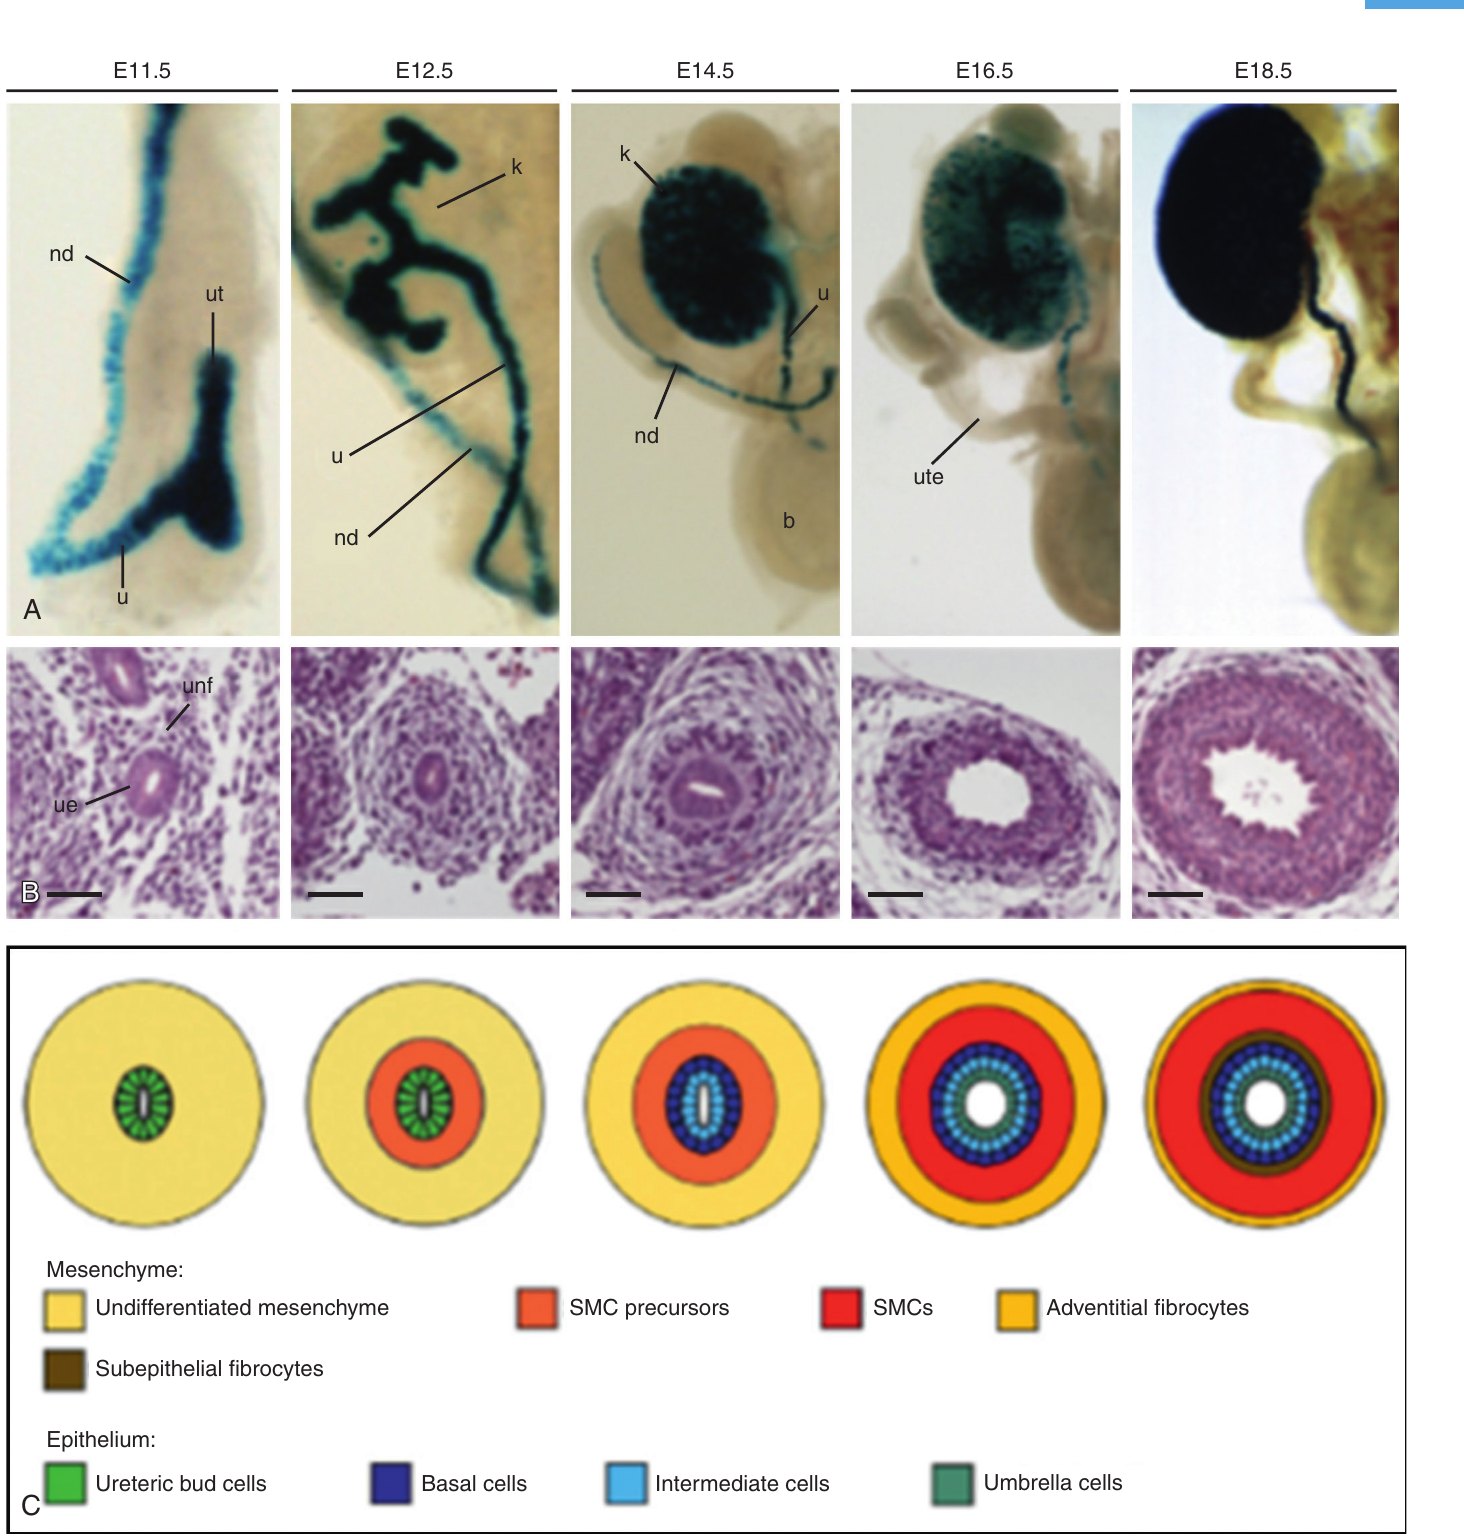
平滑肌分化與自發性電活動 Smooth Muscle Differentiation and Pacemaking
- 輸尿管平滑肌的分化方向是由下往上:從靠近輸尿管膀胱交界處的遠端,上行到腎盂輸尿管交界處。
- 肌纖維排列緊密,以間隙接合(gap junctions)相連,收縮因此以由近端往遠端的波傳遞。
- 這些波彼此協調,之前先有腎盂的自發性電活動;此活動不依賴神經功能或刺激。
- 該區平滑肌細胞呈現膜電位自發振盪,傳到其他平滑肌細胞,產生沿輸尿管往遠端的蠕動波。
別混淆兩個方向分化是遠端往近端;收縮波是近端往遠端。
尿路上皮 Urothelium
- 尿路上皮(urothelium)是高度特化的複層上皮,由腎盂一路襯到尿道近端。
- 輸尿管上皮細胞的分子訊息需要與輸尿管間質細胞密切互動,原始上皮才能成熟為多層尿路上皮。
- 成熟尿路上皮靠尿路上皮斑塊(urothelial plaques)中的 uroplakin 蛋白達到對尿液不通透。
- 胚層來源不同:膀胱上皮源自內胚層(endoderm),輸尿管上皮源自中胚層(mesoderm)。
腎素-血管張力素系統對胎兒發育的程式化作用 Renin–Angiotensin System Interaction for Programming Fetal Development
全身性 RAS Circulating RAS
RAS 是全身性的荷爾蒙系統,介導鈉再吸收、血管收縮、醛固酮生成與血管加壓素分泌。
- 血管張力素原由肝臟製造(angiotensinogen)。
- 血管張力素 I由腎臟來的腎素(renin)活化而成。
- 血管張力素 II經血管張力素轉化酶(ACE)切割產生,是生物活性最強的胜肽,作用於第 1 型(AT1)與第 2 型(AT2)受體。
局部 RAS:腎臟與胎盤 Local RAS in Kidney and Placenta
- 除循環 RAS 外,許多器官還有以自分泌或旁分泌方式作用的局部 RAS,對包括腎臟與胎盤在內的多種器官之生長、發育與功能很關鍵。
- 子宮胎盤循環的局部 RAS 協助胎盤血管新生,並調節胎盤細胞激素、生長因子與血管活性物質的產生,這些都影響胎兒生長發育。
| 部位 | AT1 受體 | AT2 受體 |
|---|---|---|
| 胎兒腎臟 | 腎臟血管新生期間,血管張力素 II 經 AT1 介導腎小管生長與分支 | 作為生長調節者,藉細胞凋亡防止腎小管失控生長 |
| 胎盤 | 促進滋養層侵入、血管新生、胎盤生長與分支;調節子宮螺旋動脈的血管收縮;絨毛膜絨毛上的 AT1 調節胎盤內胎兒血流 | — |
性荷爾蒙與性別差異 Sex Hormones and Sex Differences
- 睪固酮:增加腎素與 AT1 受體表現,上調升壓路徑(vasopressor arm)。
- 雌激素:上調降壓路徑(vasodepressor arm,ACE2 與 AT2 受體)。
- 腎臟與胎盤 RAS 在男女組織中可能表現不同,對不良刺激的反應也可能不同,進而造成成年男女的差異。
產前糖皮質素暴露 Prenatal Glucocorticoid Exposure
- 胎兒暴露於過量糖皮質素可能有不良影響;糖皮質素是胎兒生長發育的強力調節者。
- 對早產高風險孕婦短療程使用,已改善新生兒存活;但重複劑量與胎兒生長不良相關。
- 愈來愈多證據顯示,產前糖皮質素治療有長期代謝、心血管與腎臟不良後果,包括曾於產前暴露的年輕成人 GFR 降低、胰島素阻抗增加。
腎臟上升 Renal Ascent
傳統理論與近期質疑 Traditional Theories and Recent Challenges
- 腎臟由薦椎區上升到第一腰椎附近的最終位置。傳統認為這來自腰薦椎生長、腰椎屈曲減少,使身體伸直。
- 傳統也認為,上升時血液供應的改變,來自節段血管陸續接上、消失,直到最上方接上腎臟的血管成為腎動脈。
- 上升也與腎門方向改變有關:由朝腹側旋轉 90 度,變成朝內側。
- 近期研究質疑這些理論:最終的腎動脈要到腎臟抵達第一腰椎區後才出現,而節段血管在腎臟遷移途中就消失了。
人類 5 至 7 週胚胎的觀察 Findings in 5- to 7-Week Human Embryos
- 發育中的後腎由數個卵圓形腎盂組成,被一條間質組織帶環繞,腎臟上極緊鄰此帶。
- 這條組織帶向上延伸到發育中的腎上腺皮質,由密集發育的神經細枝組成,連接大內臟神經(major splanchnic nerves),被認為是腹腔神經節(celiac ganglia)的起源。
- 胚胎中的腎臟呈長形,沿第二或第三至第五腰椎分布,始終鄰近臍動脈。標本中也可見中腎,原文記為位於後腎尾側(見章末「閱讀時請留意」)。
- 連接腎上腺皮質、可能的腹腔神經節與後腎的緻密帶形成一條實心帶,使這些器官構造同時上升,不受腰薦椎曲度變化影響。
- 研究者發現,腎臟抵達第一腰椎的最終位置時,脊椎仍有腹側彎曲。他們推測腎臟遷移取決於腎臟本身的生長,而非脊椎生長與身體伸直。
- 腎臟到位後,緻密帶消散,腎臟與發育中的腎上腺及腹腔神經節之間改由包覆的脂肪囊分隔。
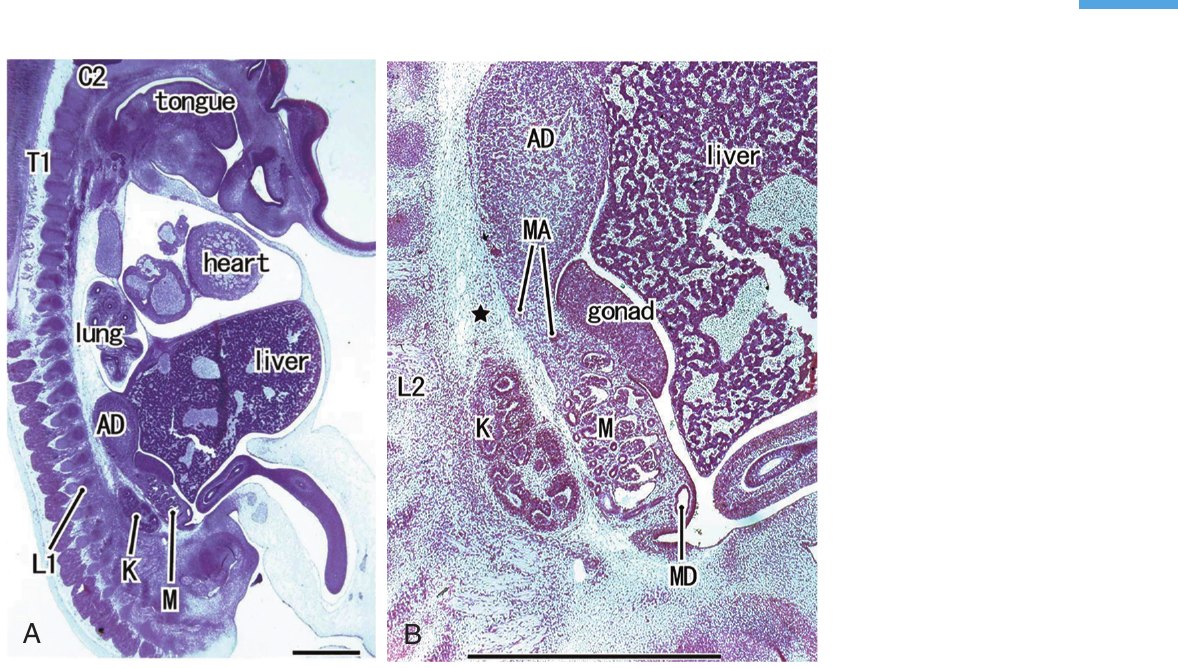
上升期間的血液供應 Blood Supply During Ascent
- 過去認為供應發育中腎臟的「階梯狀動脈」,其實連接在中腎上,並不鄰近遷移中的後腎。
- 這提示:後腎鄰近臍動脈,臍動脈可能是腎臟的血流來源,直到腎臟抵達最終位置、由發育中的腎動脈供應。
- 後腎到位後腎元生成仍持續進行,因此腎臟上升到第一腰椎區的期間,腎絲球可能不需要直接血流。
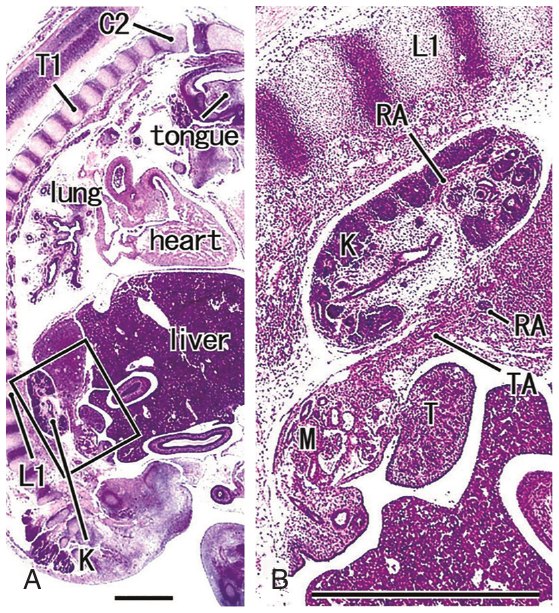
| 問題 | 傳統看法 | 近期研究 |
|---|---|---|
| 上升動力 | 腰薦椎生長與身體伸直 | 推測為腎臟本身的生長;腎臟到位時脊椎仍有腹側彎曲 |
| 腎動脈來源 | 節段血管逐一更替,最上方者成為腎動脈 | 節段血管在遷移時已消失;最終腎動脈在抵達第一腰椎區後才出現 |
| 上升期血流 | 階梯狀動脈供應腎臟 | 這些動脈連接中腎;可能由鄰近的臍動脈供應 |
腎功能的胎兒程式化與周產期環境因素的影響 Fetal Programing of Renal Function and the Perinatal Environmental Factor’s Influence
腎功能發育與成人腎臟病 Development of Renal Function and Adult Renal Disease
- 基因與環境因素都是主要器官系統發育與功能的重要決定因子;愈來愈明顯的是,產前程式化(prenatal programing)會影響日後的器官功能與部分成人疾病。
- 早產(<37 週)在過去數十年更為普遍,全球發生率最高達活產的 14%。
- 早產者(包括 <28 週的極度早產兒)超過 95% 存活到成年(>18 歲)。
- 多數早產者的早期死亡風險低,但心血管、腎臟、內分泌、代謝、呼吸與神經發育系統的慢性病風險增加。
- 這些慢性病可能造成成年早期到中期的死亡風險較足月或近足月出生者中度增加(30% 至 50%)。
早產與腎元生成中斷 Preterm Birth and Interrupted Nephrogenesis
- 早產增加嬰兒在腎元生成完成前出生的機會。
- 腎元生成在第三孕期最活躍,超過 60% 的功能性腎元在此期形成,尤其是妊娠 28 至 34 週之間;腎元生成約在 34 至 36 週完成。
- 這個過程一旦中斷,終生腎元數量會較低,日後發生 CKD 與高血壓的可能性增加。
- 原文同時寫到早產後腎元仍繼續形成,以及腎元生成隨早產而停止(見章末「閱讀時請留意」)。下文另述:36 週前出生時腎元生成仍在進行,但數量可能因子宮內壓力或產前/周產期壓力源而減少。
- 早期足月也有風險:CKD 風險主要集中於極度早產(<28 週)與早產(<37 週),但早期足月(37 至 38 週)出生者的 CKD 風險仍顯著增加。
- 研究早產兒的同胞手足後發現,風險增加看來來自早產的直接影響,而非共同的基因或環境因素。
低出生體重、IUGR 與高危族群 Low Birth Weight, IUGR, and Risk Groups
- 低出生體重(<2500 g)不論妊娠週數,CKD 風險都增加。
- 極度早產兒與小於妊娠年齡(SGA)兒的心血管與腎臟疾病風險更高。
- 非裔美國人的子宮內生長遲滯(IUGR)與 LBW 風險是白人族群的兩倍;其危險因子在特定族群中較常見。
- IUGR 與約 30% 至 35% 的腎元缺損相關,這些嬰兒可能發生續發性腎絲球高血壓與非腎病性局部節段性腎絲球硬化(FSGS)。
| 類別 | 因子 |
|---|---|
| 胎兒 IUGR 與 LBW 風險較高 | 母體高血壓、吸菸、體重增加不足或營養不良、身高較矮、產前照護不佳、高齡、社經地位較低 |
| 早產兒 CKD 風險較高 | 先天異常、母體肥胖(BMI ≥30)、子癇前症 |
| 腎元數減少的相關情境 | 早產、極度早產、LBW、IUGR、子宮內暴露於母體因素、周產期阻塞性尿路病變 |
Brenner 假說與血壓 The Brenner Hypothesis and Blood Pressure
- 腎元總數較少LBW 與早產都與嬰兒腎元不足相關。
- 單一腎元過濾率上升Brenner 假設,每個現存腎元必須提高過濾率,以滿足身體的排泄需求。
- 血壓相應上升要達到必要的腎臟鈉排泄量,血壓必須相應升高。
- 結果日後發生原發性高血壓(essential hypertension)的可能性增加。
- 人類研究發現 LBW 與嬰兒期到成年期較高的血壓呈反向關係。不是所有 LBW 兒童都有高血壓,但 LBW 嬰兒、兒童與年輕成人的血壓傾向高於正常出生體重者。
- 高出生體重(>4000 g)也與日後不良腎臟結果相關;在人類是否與腎元數異常有關仍不確定。
- LBW 嬰兒成年後冠狀動脈心臟病、胰島素敏感性問題與高血壓的風險也增加(用詞見章末「閱讀時請留意」)。
性別差異 Sex Differences
- 女性的腎絲球數約比男性少 12%,但一般而言,早產造成的 CKD 風險男女相近。
- 針對性別的資料互有衝突:一項瑞典研究發現早產女性比早產男性更容易發生 CKD;另一項研究則發現早產男性的 CKD 風險是早產女性的 1.3 倍。
腎絲球代償性肥大 Compensatory Glomerular Hypertrophy
- 腎元數在出生前決定,但腎臟可藉腎絲球肥大增加過濾能力。
- 平均腎絲球體積與腎絲球數量呈負相關,與目前體型呈正相關。
- 相較於無高血壓的對照組,高血壓者平均腎絲球體積高 133%,腎絲球數量則減少 46.6%。
出生後環境與藥物 Postnatal Environment and Antenatal Steroids
- 早產兒的子宮內環境突然終止,器官尚未成熟,必須適應子宮外功能與早產帶來的壓力。
- 出生後早期的生理與子宮內不同,早產兒通常還要接受加護照顧,包括各種藥物暴露、未達理想的營養,以及可能的維生措施。
- 產前短療程糖皮質素常用於有早產風險的孕婦,以促進胎肺成熟、降低早產相關的新生兒病率與死亡率。
- 重複劑量可能有一些益處,但曾暴露於即使一個短療程的早產出生年輕成人,仍有 GFR 降低與胰島素阻抗增加。
營養:EUGR、追趕生長與高蛋白配方 Nutrition: EUGR, Catch-Up Growth, and High-Protein Formula
- 早產兒在餵食與腸胃器官正常發育之前就失去子宮內營養,初期營養未達理想很常見;許多早產兒有餵食問題,可能發生子宮外生長遲滯(extrauterine growth restriction, EUGR)。
- EUGR 影響出生後早期生長,與生命早期的不良結果相關,也有長期心血管與腎臟不良後果。
- 為預防 EUGR,新生兒加護病房已轉向在出院後使用蛋白質與熱量較高的配方,協助追趕生長(catch-up growth)。
- 追趕生長可能表現為不對稱的過度生長,以及出院後最多 3 個月內體重快速增加,並與高脂肪堆積及胰島素敏感性改變相關。
- 高蛋白配方的增加蛋白負荷,對早產的心臟與腎臟可能有短期與長期不良影響。
- 兩難:早產兒相對缺乏熱量與蛋白,需要補足;但為克服 EUGR 而使用高蛋白飲食,之後又可能帶來心臟、代謝與腎臟傷害。
- 一項隨機對照試驗顯示,哺餵母乳的早產兒在青少年期的血壓較低、胰島素敏感性較好。高蛋白配方是否對成年有長期不良影響,仍需進一步研究。
母體營養、維生素 A 與腎毒性藥物 Maternal Nutrition, Vitamin A, and Nephrotoxic Drugs
- 不良產前環境(如母體低蛋白攝取造成的子宮內及新生兒期營養不良)可能對腎功能有不良影響。
- 維生素 A:在大鼠中,維生素 A 藉由調節腎元數與發育中腎臟的血管供應,決定胎兒腎臟程式化。維生素 A 與其他類視色素(retinoids)協助調節細胞增生、分化、免疫功能與凋亡。
- 吸菸、酗酒或周產期營養不良的女性常有低血中維生素 A,可能使胎兒維生素 A 偏低或缺乏,並與嬰兒 IUGR 相關。
- 腎毒性藥物:孕期母體服用腎毒性藥物與新生兒急性腎衰竭相關,尤其是早產或 LBW 嬰兒。
- NSAID:推測母體暴露非類固醇消炎藥會因前列腺素 E2 降低,造成腎臟灌流不足及血管運動性腎病變的胎兒腎毒性。新生兒腎臟受 NSAID 傷害看來較少,提示傷害風險在腎元生成期間最高。
- 其他限制養分傳遞、減少必需養分的胎兒胎盤因素,包括母體吸菸、高血壓、營養不良,以及影響營養的社經因素。
周產期阻塞性尿路病變與逆流 Perinatal Obstructive Uropathy and Reflux
- 周產期阻塞性尿路病變可能使受影響嬰兒的腎元數減少。機轉可能是腎小管受機械性牽張,活化離子通道,升高細胞內鈣,繼而引起細胞凋亡。
- 單側輸尿管阻塞動物模型:解除阻塞後主要傷害是腎小管凋亡與萎縮,導致該腎生長受損、腎絲球數減少、GFR 下降。
- 對側腎臟有代償性生長,但兩側腎臟都出現腎絲球硬化、腎小管萎縮、巨噬細胞浸潤與間質纖維化。
- 成人尿路阻塞看來不會像先天或周產期阻塞那樣減少腎元數。腎元在腎元生成期間或剛完成時,可能對阻塞傷害特別脆弱。
- 出生後不久診斷的高度膀胱輸尿管逆流也可能與不良腎臟結果相關;在這群病人中,出生後早期診斷與治療並未改善腎臟結果。
腎元數與疾病的關聯並非絕對 Modifiers of the Nephron Number–Disease Link
- 低腎元數雖與腎臟病及高血壓相關,但並非所有腎臟程式化模型都如此;部分研究甚至發現低血壓。
- 部分族群(如非裔美國人)腎元數較少,卻未表現相關高血壓。可能還需要其他尚未確定的因素,才會誘發高血壓與腎臟病。
- 可能相關的因素包括個人遺傳與性別:停經前女性在腎元數減少時,高血壓一般較少。
- 動脈壓的性別差異可能來自性荷爾蒙及性染色體組成。部分研究顯示,女胎對不良子宮內環境看來比男胎不易受害。
表觀遺傳學 Epigenetics
- 新研究聚焦於表觀遺傳學(epigenetics):環境因素造成基因修飾,改變基因表現但不改變遺傳密碼本身。
- 愈來愈多證據顯示,早期表觀遺傳印記記錄基因與環境的互動,並轉化為基因表現的改變,依哪些基因被活化來決定細胞分化。
- 早產造成發育停滯或改變;壓力、子宮外營養與毒物暴露等出生後刺激改變基因調控,可能帶來終生影響。
- 早期研究針對早產兒前驅細胞血管新生能力的表觀遺傳修飾,也是研究腎臟與心血管等器官系統表觀遺傳表現的基礎。
- 已見的改變包括 DNA 甲基化、組蛋白修飾與非編碼 RNA。
- 動物模型中,產前糖皮質素暴露會改變基因甲基化並升高血壓,引發對人類胎兒類似表觀遺傳表現的疑慮。
代償能力與次級危險因子 Renal Compensation and Secondary Risk Factors
- 胎兒腎臟程式化可能使 LBW、IUGR 及子宮內暴露於腎傷害因子者,成年後面臨高血壓與腎功能不良的風險。
- 但腎臟看來有相當大的能力代償這些產前傷害。
- 控制成年期的次級危險因子(如飲食與壓力)可能減少腎臟發育異常帶來的高血壓與腎功能不全。
結論 Conclusion
- 腎臟器官生成是尚未完全了解的複雜過程,由錨定基因、活化分子、生長因子與荷爾蒙作用互補驅動。
- 母體-胎盤-胎兒環境介面的表觀遺傳因素,仍在進一步研究其與成人不良健康結果的關係。
- 近期研究顯示,早產或 LBW 出生的成人,主觀生活品質高,與同齡足月或正常出生體重成人相近。
- 目前超過 50% 的早產出生成人存活且無重大共病,反映早期治療介入的進步,以及這群病人維持健康的韌性。
臨床反思:NICU 視角 Clinical Reflection—NICU Perspective
臨床上可帶走的重點
- 腎元數是出生前決定的資本:超過 60% 在第三孕期形成,早產打斷的正是這段高峰,CKD 與高血壓風險也因此延續到成年。
- 風險不只在最小的早產兒:早期足月(37 至 38 週)、任何週數的 LBW、SGA、IUGR,以及高出生體重(>4000 g)都與不良腎臟結果相關。
- NICU 暴露本身是影響因子:本章列出藥物暴露、未達理想的營養與維生措施;母體腎毒性藥物與新生兒急性腎衰竭相關,NSAID 的傷害風險在腎元生成期間最高。
- 產前糖皮質素的取捨:短療程改善新生兒存活並促進胎肺成熟,但即使一個短療程,也與年輕成人 GFR 降低、胰島素阻抗增加相關。
- 營養的兩難:預防 EUGR 需要提高蛋白與熱量,但高蛋白負荷與快速追趕生長都有疑慮;一項隨機對照試驗中,哺餵母乳的早產兒青少年期血壓較低、胰島素敏感性較好。
- 阻塞與逆流:腎元在發育期特別脆弱;高度膀胱輸尿管逆流出生後早期診斷與治療,並未改善這群病人的腎臟結果。
- 長期觀點:腎臟有相當的代償能力,控制成年期次級危險因子可能減少不良結果;近期研究顯示這群成人的主觀生活品質高,與同齡足月或正常出生體重成人相近。
閱讀時請留意 Points to Verify
原文內部不一致
- 早產後腎元是否繼續形成:原文在同一句寫 “the nephrons continue to form after premature birth, nephrogenesis ceases with premature birth”,前後矛盾;後文另寫 36 週前出生時腎元生成仍在進行。
- 腎元生成完成時間:導論寫 36 週前完成,後文寫約 34 至 36 週。
- 第三孕期腎元比例:一處寫 “more than 60%”,另一處寫 “60%”。
- 轉錄因子的本質:原文寫 “Transcription factors, generally ribonucleic acids (RNAs)”,與下文 WT1 為鋅指轉錄因子、與 DNA 結合的描述不易對應,疑似誤植。
- 胚胎日的物種:輸尿管一節寫 “In the human” 後接 E12.5、E12,並以 E 日期描述開始產尿等時序;圖 74.3、圖 74.5 的相近時程屬小鼠(小鼠妊娠 19 天),這些 E 日期是否真為人類資料需查證。本筆記照原文保留。
- 輸尿管襯裡名稱:輸尿管構造與 GDNF 段落用 “endothelial-lined lumen”、“formation of the endothelium”,但下文稱該襯裡為上皮/尿路上皮,疑似誤植。
- 輸精管的來源:原文寫 “primordial ureters that arose from the nephric duct” 在男性分化為輸精管,而同節其他處描述的是腎管本身退化或重塑,主詞疑似有誤。
- 足細胞窗孔:原文寫 VEGF-A 造成 “fenestration of the podocytes”,又同時提到緊鄰內皮細胞;窗孔的所屬細胞請查證。
- 中腎位置:原文寫中腎位於後腎尾側(caudal),與圖 74.4A 中腎在後腎上方的排列不同。
- 上升期腎臟高度:內文寫第二或第三至第五腰椎,圖 74.7 圖說寫第二到第四腰椎;兩者胚胎可能不同,原文未說明。
- 胰島素用詞:原文寫 LBW 成人風險增加 “insulin sensitivity”,同章他處談的不良結果是胰島素阻抗增加,用詞疑似有誤。
- CKD 性別差異:原文先寫男女同等受影響,又列出方向相反的兩項研究;屬資料衝突,原文已註明。
- GDNF 全名:原文同時出現 neurotropic 與 neurotrophic 兩種拼法。
- 兩個比例勿混用:“超過 95%” 指存活到成年;“超過 50%” 指成年且無重大共病,兩者分母情境不同。