新生兒白血球生理學與疾病Neonatal Leukocyte Physiology and Disorders
本章重點 Key Points
- 新生兒與小嬰兒的宿主防禦主要仰賴先天免疫(innate immune system);因為先前接觸感染原與環境抗原的機會有限,後天免疫這一臂的結構與功能都還在發育中。
- 嗜中性球低下(neutropenia)在新生兒期很常見。
- 新生兒嗜中性球在移動、吞噬、殺菌上都有廣泛的功能不足。
- 除少數缺陷外,新生兒單核球與巨噬細胞的功能大致可與成人相比。
- 新生兒 T 細胞與 B 細胞族群仍在發育。有些適應機制為新生兒所特有,可部分彌補後天免疫的不足,例如不需 T 細胞協助即可運作的 B1 細胞,以及產生多特異性抗原結合(polyspecific antigen binding)的免疫球蛋白。
- 先天淋巴細胞(innate lymphoid cells, ILCs)是近年才描述的先天免疫新族群,很可能在新生兒期與嬰兒早期扮演重要角色。
本章範圍 Overview
- 本章概述新生兒白血球生理,以及白血球的量(quantitative)與質(qualitative)異常。
- 涵蓋對象:新生兒造血、嗜中性球(neutrophils)、單核球(monocytes)、淋巴球(lymphocytes)、樹突細胞(dendritic cells, DCs)與先天淋巴細胞(ILCs)的正常生理與缺陷,並討論新的治療方向。
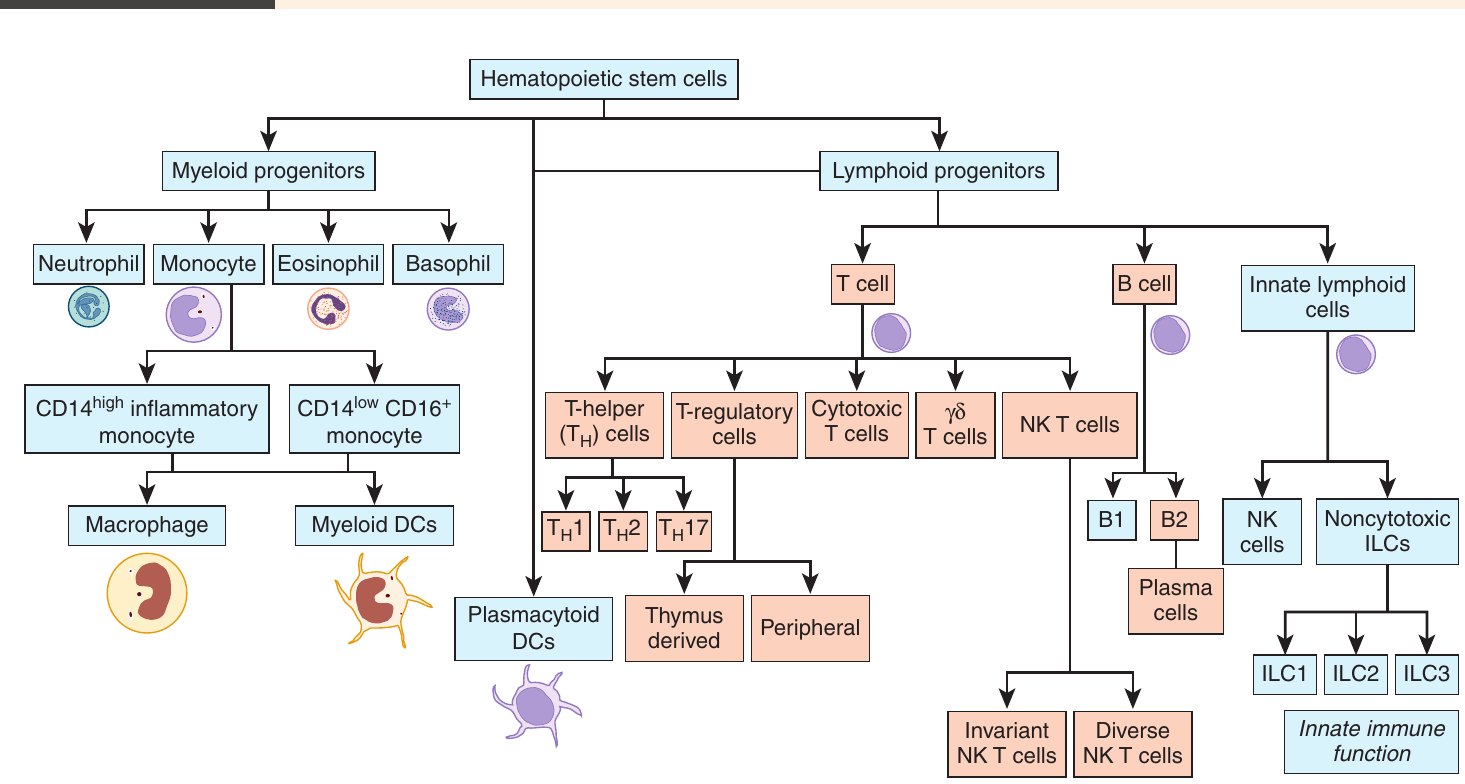
嗜中性球生理與功能 Neutrophil Physiology and Function
個體發生 Ontogeny
嗜中性球是細胞性先天反應的重要防線。其生命週期可概念性地分為三段:骨髓 → 血液 → 組織。
| 分區 | 細胞階段 | 特性 |
|---|---|---|
| 增殖庫(neutrophil proliferative pool, NPP) | 骨髓母細胞(myeloblasts)、前骨髓細胞(promyelocytes)、骨髓細胞(myelocytes) | 仍具分裂能力 |
| 儲存庫(neutrophil storage pool, NSP) | 後骨髓細胞(metamyelocytes)、帶狀核(bands)、分節核(segmented)嗜中性球 | 失去分裂能力,就地繼續分化 |
- 成人的 NSP 是可觀的儲備,需要時能迅速動員進入血流。
- 妊娠中期胎兒與早產兒的 NSP 相對小得多,敗血症時容易耗竭。
- 大鼠數據(細胞數/公斤):成鼠 NSP 約 6 × 10⁹;妊娠 19 天胎鼠僅約 0.9 × 10⁹;足月(21 天)也只微升到 1.2 × 10⁹。
- 物種差異:胎鼠與新生鼠的肝、脾容納相當比例的 NPP 與 NSP;人類新生兒的嗜中性球生成與儲存則主要在骨髓。
循環池與邊緣池 Circulating and Marginated Blood Neutrophil Pools
- 血中嗜中性球分布於大小約略相等的兩區:循環池(circulating pool)自由隨血流循環;邊緣池(marginated pool)則短暫附著於血管內皮。
- 健康成人兩池各約 0.4 × 10⁷ 個細胞/公斤。
- 用力哭鬧或運動後,或給予腎上腺素(epinephrine)、皮質類固醇(corticosteroids)後,邊緣池細胞可短暫(30 至 45 分鐘)移入循環。
- 嗜中性球在血中只停留數小時(半衰期約 6.3 小時),隨後移入組織;感染時移入組織的量增加。
- 胎羊實驗:羊水內給予內毒素(endotoxin)後,循環嗜中性球先因移往組織而下降,之後 6 天逐漸上升。
- 嗜中性球停留組織的時間及最終去向,目前仍不太清楚。
嗜中性球異質性 Neutrophil Heterogeneity
目前已有證據顯示存在帶不同分子標記的嗜中性球亞群,功能差異的細節仍在陸續釐清。最常被評估的三個標記如下:
| 標記 | 性質 | 已知或推測的意義 |
|---|---|---|
| OLFM4(olfactomedin 4) | 醣蛋白,曾被認為可能是腫瘤抑制因子;近期在約 25% 循環人類嗜中性球的特殊顆粒(specific granules)中發現 | 表現 OLFM4 可能負向調節部分嗜中性球的殺菌效率 |
| CD177(NB1) | 55-kDa 的表面醣蛋白,為 glycosylphosphatidylinositol 錨定受體,在循環嗜中性球上表現量不一 | 可與血小板-內皮細胞黏附分子 1(platelet–endothelial cell adhesion molecule–1)高親和力結合,並與絲胺酸蛋白酶 PR3 結合;感染時 CD177+ 亞群可能藉細胞表面 PR3 增加組織浸潤 |
| ICAM-1 陽性 | 表現細胞間黏附分子 1(intercellular adhesion molecule-1)的嗜中性球 | 被認為會從組織逆向穿越內皮(reverse transendothelial migration)回到血流,可能參與發炎的全身擴散 |
近期研究顯示,年齡、微環境、微生物叢致敏(priming)與發炎暴露都會造成更多表型差異,進而影響細胞激素生成、吞噬作用與嗜中性球胞外陷阱(neutrophil extracellular traps, NETs)的產生:
- 依器官:脾臟嗜中性球為 CD26Llow、CD11bhi、ICAM-1hi,會產生 NETs;淋巴結嗜中性球表現 CCR7、LFA-1、CXCR4,與 T 淋巴球互動並媒介 T 細胞活化。
- 依暴露(小鼠):暴露於抗藥性金黃色葡萄球菌(Staphylococcus aureus)後,依 TLR 表現、細胞激素生成與巨噬細胞活化潛能分出兩個亞群:
- PMN-1:表現 TLR2/4/5/8,產生 IL-12,典型活化(classically activate)巨噬細胞。
- PMN-2:表現 TLR2/4/7/9,產生 IL-10,替代性活化(alternatively activate)巨噬細胞。
- 結論:嗜中性球是複雜的發炎細胞,在恆定狀態與多種疾病狀態下都能執行不同的免疫與非免疫功能。
新生兒嗜中性球低下 Neonatal Neutropenia
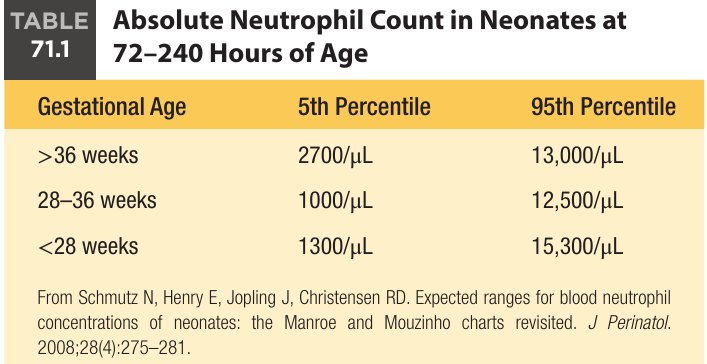
定義與參考值 Definition and Reference Values
- Manroe 等:建立足月與早產兒生後 28 天內的 ANC 參考值,涵蓋健康嬰兒與有周產期併發症的嬰兒。
- Mouzinho 等:連續追蹤健康極低出生體重(very low-birthweight, VLBW)早產兒的白血球,以確認此族群是否不同於先前以足月兒為主的世代。結果 ANC 範圍較寬,主要因下限往下移,尤其在生後前 60 小時;未成熟嗜中性球絕對值,以及未成熟/總嗜中性球比值則無差異。
- Schmutz 等:妊娠 28 週以上者 ANC 在生後 6 至 8 小時達高峰;未滿 28 週者在 24 小時才達高峰。
- 同一研究中,產程延長後出生者的 ANC 高於擇期剖腹產者;女嬰 ANC 較高,平均比男嬰多約 2000/μL。
嗜中性球低下嬰兒的致病機轉包括:骨髓系前驅細胞耗竭、前驅細胞對增殖或成熟訊號反應不足,以及嗜中性球使用與破壞增加。
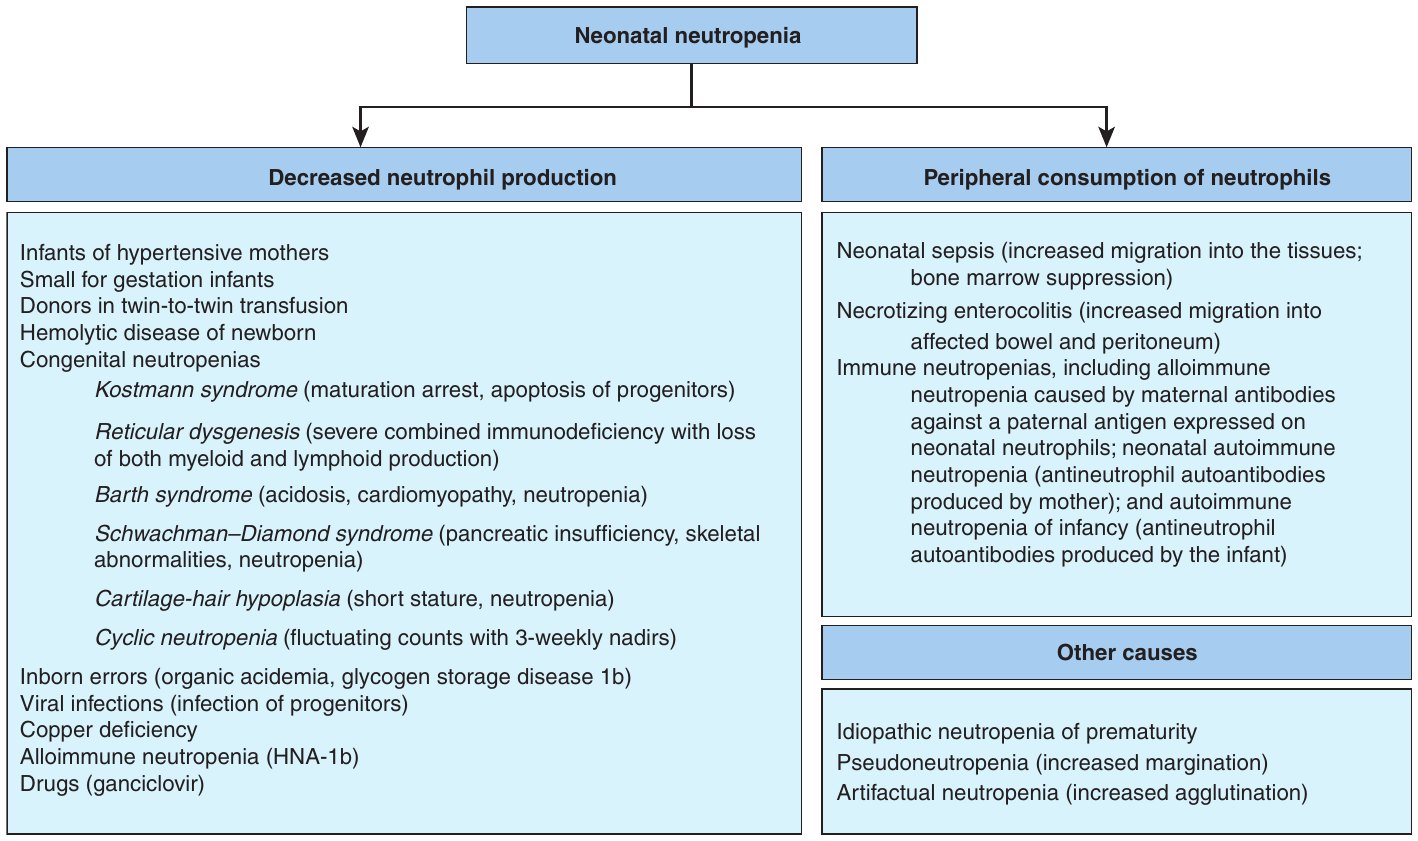
| 大類 | 病因 |
|---|---|
| 生成減少(decreased production) | 高血壓母親所生嬰兒;小於妊娠年齡(small for gestation)嬰兒;雙胞胎輸血症候群(twin-to-twin transfusion)的供血者;新生兒溶血病(hemolytic disease of newborn) |
先天性嗜中性球低下:
| |
| 先天代謝異常:有機酸血症(organic acidemia)、肝醣儲積症 1b 型(glycogen storage disease 1b) | |
| 病毒感染(感染前驅細胞);銅缺乏(copper deficiency) | |
| 同種免疫性嗜中性球低下(HNA-1b) | |
| 藥物:ganciclovir | |
| 周邊消耗(peripheral consumption) | 新生兒敗血症:移往組織增加、骨髓抑制 |
| 壞死性腸炎(necrotizing enterocolitis, NEC):往受累腸道與腹膜移動增加 | |
| 免疫性:同種免疫(母體抗體對抗新生兒嗜中性球上的父源抗原);新生兒自體免疫(母體產生抗嗜中性球自體抗體);嬰兒自體免疫(嬰兒自行產生抗嗜中性球自體抗體) | |
| 其他 | 早產兒特發性嗜中性球低下(idiopathic neutropenia of prematurity);偽性嗜中性球低下(pseudoneutropenia,邊緣化增加);人為性嗜中性球低下(artifactual neutropenia,凝集增加) |
敗血症引起的嗜中性球低下 Sepsis-Induced Neutropenia
嚴重敗血症的新生兒常出現嗜中性球低下,這也顯示新生兒與成人嗜中性球系統的差異:新生兒前驅細胞較少、前驅儲存池較小,壓力下容易耗竭。
| 項目 | 成鼠 | 新生鼠 |
|---|---|---|
| 循環嗜中性球 | 短暫下降後明顯上升(neutrophilia) | 原文未於此比較 |
| 前驅細胞池 | 增加 2 至 3 倍 | 減少 50% |
| 骨髓系增殖速率 | 上升至最大能力的 75% | 未能上升(本來就接近最大值) |
| NSP 儲備 | 下降 33% | 原本已偏低,再下降近 80% |
免疫媒介性嗜中性球低下 Immune-Mediated Neonatal Neutropenia
嬰兒持續性嗜中性球低下時,要把免疫媒介列入鑑別診斷。
同種免疫性(alloimmune)
- 機轉:母親對嬰兒嗜中性球上帶有、而母體嗜中性球沒有的父源抗原致敏,產生免疫球蛋白 G(IgG)。
- 血清學:母親與嬰兒血清中都可發現嗜中性球特異性抗體,但母親嗜中性球數正常。
- 發生率:估計佔活產的 3%。
- 常見抗原(美國):人類嗜中性球抗原(human neutrophil antigen, HNA)-1a、HNA-1b、HNA-2a。
- 血液表現:IgG 可通過胎盤,故周邊血呈現重度嗜中性球低下。
- 病程:自限性,通常在 6 至 7 週內緩解。期間易受感染,多為皮膚感染;大多輕微,但重度低下者有致命感染風險,應密切監測。
新生兒自體免疫性(neonatal autoimmune)
- 母親帶有抗嗜中性球抗體,經胎盤結合胎兒嗜中性球。
- 嚴重度通常比同種免疫性輕。
母親高血壓相關的嗜中性球低下 Maternal Hypertension–Associated Neutropenia
- 母親高血壓是新生兒暫時性嗜中性球低下最常見、描述最完整的原因之一。
- 嚴重度與出生體重、妊娠週數成反比,與高血壓嚴重度成正比。
- 這些嬰兒的嗜中性球生成似乎減少,但原因未明。
- 多項研究發現:嗜中性球前驅細胞數減少、細胞週期活動減少、NPP 與 NSP 相對正常,且沒有「左移(left shift)」。
- 感染風險的證據互相矛盾,但風險可能不高,因為多數個案在 72 小時內緩解,幾乎都在 5 至 7 天內恢復。
早產兒特發性嗜中性球低下 Idiopathic Neutropenia of Prematurity
- 通常為良性,於早期新生兒期之後(第 4 至 10 週)出現。
- 通常是暫時性,多數病人會自行恢復。
- 白血球分類在嗜中性球低下的情況下,未成熟嗜中性球仍很少,提示嗜中性球再生受到暫時抑制。
- 部分早產兒可較嚴重(有時 ANC <500/μL)且較持久,但即使如此仍會自行緩解。
新生兒嗜中性球低下的治療 Treatment of Neonatal Neutropenia
G-CSF 與 GM-CSF 的作用
- 重組顆粒球群落刺激因子(granulocyte colony-stimulating factor, G-CSF)與顆粒球-巨噬細胞群落刺激因子(granulocyte-macrophage colony-stimulating factor, GM-CSF)常用於治療新生兒嗜中性球低下。
- G-CSF:刺激嗜中性球生成、成熟並自骨髓釋出,也減少嗜中性球凋亡;是循環嗜中性球濃度的主要全身調節者。
- GM-CSF:使前驅細胞產生顆粒球與巨噬細胞群落;在穩定狀態下可能不扮演主要角色,但會在發炎組織中被誘導。
用於新生兒敗血症的證據(結果互相矛盾)
| 研究 | 族群 | 結果 |
|---|---|---|
| 五項研究的統合分析(G-CSF) | 新生兒敗血症 | 死亡率下降(odds ratio 0.17,95% CI 0.03 至 0.70);排除非隨機研究後不再顯著 |
| Carr 等回顧(G-CSF/GM-CSF) | 疑似敗血症的早產兒 | 開始治療後 14 天死亡率未下降(RR 0.71,95% CI 0.38 至 1.33) |
| 同上之次族群 | 97 名敗血症合併嗜中性球低下(ANC <1700/μL)嬰兒 | 死亡率顯著下降(RR 0.34,95% CI 0.12 至 0.92;NNT 6,95% CI 3 至 33) |
GM-CSF 在新生兒敗血症預防或治療上的角色也尚不明確。
G-CSF 的其他適應情境
- 免疫媒介性嗜中性球低下:矯正效果極佳。除促進生成外,G-CSF 可能降低嗜中性球上的抗原表現,使其較不受循環抗體攻擊,也可能改善嗜中性球功能。
- 先天性嗜中性球低下:許多病人有效。
- Kostmann 症候群:嬰兒早期出現 ANC 低(常低於 200/μL)及反覆細菌感染,帶有嗜中性球彈性蛋白酶基因 ELANE 突變。G-CSF 可減少抗生素與住院需求,並改善存活。
- 週期性嗜中性球低下:罕見血液疾病,ANC 每隔 3 週規律下降,可低至 250/μL。ANC 較高時骨髓可能看似正常,但在重度低下發生時或之前呈現特徵性骨髓系細胞「成熟停滯(maturational arrest)」。重度低下期可用 G-CSF 提升數值;這些病人對 GM-CSF 可能沒有反應。
- 早產兒特發性嗜中性球低下:大多會自行緩解;一項研究中 G-CSF 使 ANC 快速上升,顯示這些病人的骨髓嗜中性球儲備足夠。
- 靜脈或皮下給予,劑量 5 至 10 μg/kg/day。
- 通常 24 至 48 小時內出現反應、ANC 上升。
- 偶有病人血中嗜中性球不上升:若 ANC 仍低於 1000/μL,可每 7 至 14 天以 10 μg/kg 的幅度遞增。
- ANC 超過 5000/μL 後可減量或暫停。
- 耐受性:新生兒通常可耐受,沒有不良反應。
- 長期使用(先天性嗜中性球低下):曾與脾腫大、血小板低下、骨質疏鬆、骨髓化生不良症候群/白血病,以及抗 G-CSF 抗體的產生有關。
其他治療
- 靜脈免疫球蛋白(intravenous immunoglobulin, IVIG):對約 50% 的同種免疫與自體免疫性嗜中性球低下嬰兒有效;可從 NSP 動員嗜中性球,但可能需重複給藥才能維持效果。
- 類固醇:對同種免疫性通常無效;在嬰兒自體免疫性嗜中性球低下可能短暫提升 ANC。
- 換血(exchange transfusion):對免疫媒介性通常無效。
單核球生理與功能異常 Monocyte Physiology and Dysfunction
個體發生 Ontogeny
- 妊娠 3–6 週卵黃囊(yolk sac)的造血細胞中可見胚胎巨噬細胞。
- 4.5 週約 70% 造血細胞在形態上可辨識為單核球;此後 6 週隨紅血球系細胞成為主體,比例下降(原文數字見章末)。
- 6 週至妊娠中期胎肝成為主要造血部位,之後骨髓成為終生的血球生成中心。
- 10 週後骨髓造血首度建立後,循環單核球才規律出現(另見章末留意事項)。
- 12 週胎肝巨噬細胞最早已表現 CD11b。
- 約 15–21 週典型單核球標記 CD14 才出現。
- 第 5 個月此前未觀察到血管內單核球;單核球前驅(單核母細胞 monoblasts、前單核球 promonocytes)則持續存在於胎肝。
表面標記:新生兒與成人比較
- CD14:循環單核細胞上的表現,臍帶血與成人周邊血相當。
- CD11a、CD11b、CD11c:臍帶血單核球上的密度低於成人。
- 第二類主要組織相容性複合體(class II MHC)抗原 HLA-DR、HLA-DP、HLA-DQ:新生兒單核球表現較低。其密度在體外與單核球的抗原呈現能力相關,但對新生兒宿主防禦的影響不明。
- IgG Fc 受體(FcγR):對單核球與巨噬細胞吞噬微生物及抗體依賴性細胞毒性很重要。單核球持續表現高親和力 FcγRI(CD64)與 FcγRII(CD32)。
- Toll 樣受體(Toll-like receptors, TLRs):在辨識微生物病原上極為關鍵。足月新生兒單核球的 TLR2、TLR4 基礎量正常,但受多種 TLR 促效劑刺激後腫瘤壞死因子(tumor necrosis factor, TNF)釋放減少;早產兒臍帶血單核球的 TLR4 表現低於成人周邊血單核球。
M-CSF
- 巨噬細胞群落刺激因子(macrophage colony-stimulating factor, M-CSF)是調節單核球增殖、分化與功能活化的造血生長因子,在血清中正常可測得,對增強單核球與巨噬細胞的效應功能很重要。
- 臍帶血 M-CSF 升高,在新生兒期進一步上升。
循環單核球 Circulating Monocytes
- 足月兒有相對單核球增多,持續整個新生兒期。
- 新生兒正常血中單核球數仍有些爭議。作者以超過 62,000 筆血球計數描述絕對單核球數(absolute monocyte count, AMC)的正常範圍:血中單核球濃度在妊娠 22 至 42 週間幾乎呈線性上升,生後前 2 週也持續上升;與先前人類胎兒動力學研究中單核球前驅的成熟性增加一致。
- 單核球增多(monocytosis)相關情境:早產、輸血、白蛋白輸注、theophylline 治療;先天感染(如念珠菌症、梅毒);免疫媒介性嗜中性球低下。
- 單核球低下(monocytopenia):新生兒不常見,但生長遲滯的早產兒可能出現,是所有白血球系列整體受抑制的一部分。
- 研究設計:比較餵食不耐開始時的血球計數,與症狀出現前最後一次的血球計數。
- 餵食不耐嬰兒若 AMC 下降超過 20%:診斷 NEC 的敏感度 0.70(95% CI 0.57 至 0.81),特異度 0.71(95% CI 0.64 至 0.77)。
- 陰性預測值 88%,因此可能有助於在其他原因造成的餵食不耐中排除 NEC。
- 診斷準確度雖屬中等,但 AMC 方便,自動血液分析儀的全血球計數本來就有這項資料,不增加成本。
單核球亞群 Monocyte Subsets
周邊血單核球是異質族群,由兩大亞群組成:
| 亞群 | 比例/標記 | 功能特徵 |
|---|---|---|
| 「典型(classic)」CD14+CD16– | 佔全部血中單核球近 80% 至 90%;表現 CCR2、CD64、CD62L | 原文此處未另述功能 |
| 「非典型(nonclassic)」CD14lowCD16+ | 其餘部分;缺 CCR2;CX3CR1(fractalkine 受體)表現量較高(兩亞群皆有表現) | CD16+ 至少含下列兩群 |
| └ CD14+CD16+ | 也表現 Fcγ 受體 CD64、CD32 | 具吞噬活性;受脂多醣(lipopolysaccharide, LPS)刺激產生 TNF 與 IL-1β |
| └ CD14dimCD16+ | 缺其他 Fc 受體 | 吞噬力差,LPS 刺激不產生 TNF 或 IL-1β;屬「駐留型(resident)」單核球,穩定狀態時巡邏血管,在 Listeria monocytogenes 感染或組織癒合時穿出血管 |
單核球功能 Monocyte Function
- 趨化(chemotaxis):單核球會循細菌或損傷、侵襲部位宿主細胞所產生的趨化物質定向移動;新生兒的趨化作用不如成人明顯。
- 移行與黏附:急性感染時,循環單核球活化後移入組織。單核球膜上的整合素(CD11a、CD11b、CD11c、CD18)與內皮上的 ICAM-1 或 ICAM-2 作用而黏附,再穿過內皮到達發炎或感染處。初步研究顯示新生兒與成人周邊血的黏附分子表現量相當。
- CD11b–CD18 複合體(macrophage one antigen/complement receptor 3):結合 ICAM-1 促進單核球前往感染處,也參與辨識已被調理(opsonized)的微生物。
- 殺菌:包含氧依賴機制,如呼吸爆發(respiratory burst),經一連串反應形成高反應性氫氧自由基,傷害宿主與微生物的膜。胎兒與新生兒單核球殺死 S. aureus、S. epidermidis、Escherichia coli、Candida albicans 的能力,大致與成人周邊血單核球相當;不過分離出的早產兒單核球在體外的超氧化物生成與去顆粒可能弱於足月兒。
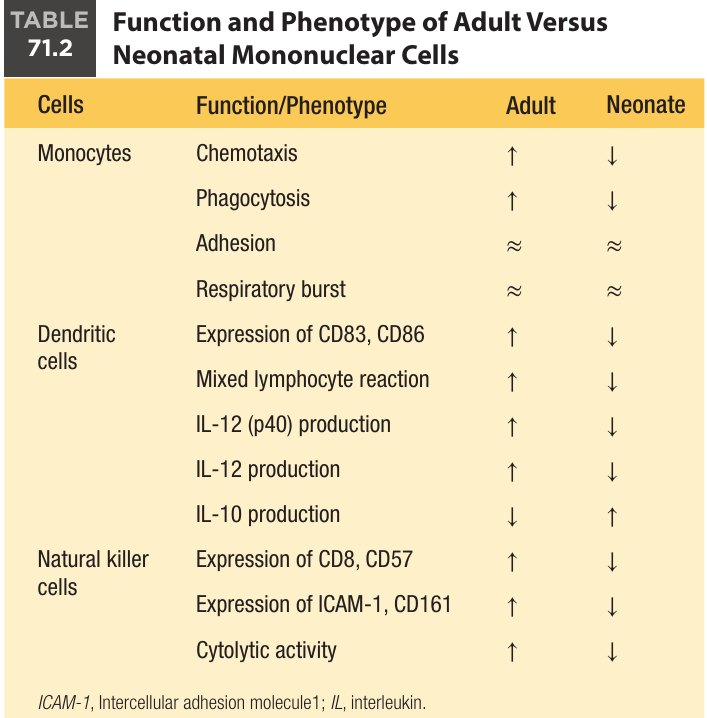
| 細胞 | 較低 | 相當 | 較高 |
|---|---|---|---|
| 單核球 | 趨化、吞噬 | 黏附、呼吸爆發 | — |
| 樹突細胞 | CD83、CD86 表現;混合淋巴球反應;IL-12(p40)與 IL-12 生成 | — | IL-10 生成 |
| 自然殺手細胞 | CD8、CD57 表現;ICAM-1、CD161 表現;細胞溶解活性 | — | — |
細胞激素反應
- 接觸微生物抗原後,單核球與巨噬細胞經 CD14、TLR 等可溶性辨識蛋白的協同作用活化,產生多種細胞激素與趨化激素,參與發炎過程。
- IL-1β、干擾素(interferon, IFN)-α、TNF 在成人與新生兒的合成量相近。
- Kaufman 等:LPS 刺激後,早產兒貼附單核球的 TNF 生成低於足月兒,IL-1β、IL-6 則無差異;早產兒單核球的 CD11b、CD18 黏附受體次單元表現也較低。
- 足月兒單核球的 TLR 表現雖與成人相似,但功能有重要差異。Levy 等:就 TNF 誘導而言,臍帶血單核球對 TLR 配體的敏感度低於成人單核球。
- 新生兒單核球對 TLR 促效劑的先天反應,在體外可能偏向高 IL-6、低 TNF,源於新生兒特有的細胞(單核球)與體液(血清)因素;體內也可見此型態。
新生兒吞噬免疫系統的發育缺陷 Developmental Defects in the Phagocytic Immune System in Neonates
吞噬免疫系統不成熟,使新生兒在細菌性敗血症時的罹病率與死亡率上升;這種損害歸因於先天與後天免疫系統兩者的發育不足。本節「吞噬細胞(phagocyte)」主要指嗜中性球與單核球/巨噬細胞系;未成熟 DC 雖有吞噬活性,但新生兒資料有限。
- 循環中有足夠數量的吞噬細胞
- 能回應發炎部位發出的訊號
- 能移行到這些部位
- 能吞入並殺死入侵微生物
TLR 表現與訊息傳遞 TLR Expression and Signaling
- 健康成人與足月新生兒的嗜中性球、單核球,TLR2、TLR4 基礎表現相近。
- 敗血症時,新生兒單核球(而非嗜中性球)的 TLR2 持續上調;單核球或嗜中性球的 TLR4 表現則無變化。
- VLBW 嬰兒單核球的 TLR4 表現遠低於較成熟嬰兒與成人,LPS 刺激後體外 IL-1β、IL-6、TNF 釋放也顯著較低。
- CD14 與 MD-2 分別伴隨 TLR2、TLR4,是革蘭氏陰性與陽性菌細胞壁成分的共受體;早產兒單核球上表現也較低。
- LPS 刺激新生兒單核球後 MyD88 表現明顯下降,支持 TLR4 媒介的訊息傳遞受損。
- Belderbos 等比較健康足月兒臍帶血、生後 1 個月靜脈血與成人靜脈血的全血白血球:TLR4 活化時,新生兒白血球(出生時與 1 個月大皆然)細胞激素型態偏斜,第 1 型輔助 T 細胞極化激素(IL12p70、IFN-α)少,抗發炎的 IL-10 多。相反地,對 TLR3、TLR7、TLR9 的反應在 1 個月大時已成熟。
表觀遺傳成熟 Epigenetic Maturation
- 近期研究指出,發育過程的表觀遺傳變化可能是單核球功能隨妊娠週數成熟的基礎。
- 組蛋白修飾 H3K4me3 與 H3K4me1 影響單核球免疫基因(IL1B、IL6、TNF)的啟動子。
- 隨妊娠週數增加,這些啟動子上的 H3K4me3 活化增加(H3K4me3/H3K4me1 比值上升),被認為使單核球的表觀遺傳地景轉向較成熟、較具功能的狀態。
嗜中性球的質性缺陷 Qualitative Phagocyte Defects
- 新生兒宿主防禦的不成熟,也表現在吞噬效應細胞量與質的明顯不足,尤其在壓力或細菌性敗血症時。
- 防禦的第一步是活化吞噬細胞朝微生物入侵處定向移動(趨化),順著趨化物濃度梯度前進;趨化物可為細菌產物(如 N-formyl-L-methionyl-L-leucylphenylalanine, f-MLP)、白三烯 B4(leukotriene B4)、補體產物(如 C5a)或趨化激素。
- 到達發炎處後,吞噬細胞經氧依賴與非氧依賴機制吞入並殺死病原。
- 早產與足月新生兒的嗜中性球都有多項質性異常:變形能力下降,趨化、吞噬、黏附、殺菌、聚集與氧化代謝受損。
- 相較之下,新生兒單核球的功能較接近成人。
細胞激素對嗜中性球功能的調節 Cytokine Modulation of Neutrophil Function
- GM-CSF 對成人嗜中性球:增加超氧陰離子生成以增強氧化代謝;增加趨化;促進對 S. aureus 的吞噬;經由增加表面黏附分子表現來增強聚集。
- GM-CSF 對新生兒嗜中性球:不是直接刺激物;但臍帶血白血球先以 GM-CSF 致敏,再暴露於 f-MLP 或調理過的 zymosan 顆粒時,超氧化物生成增加。
- C3bi:新生兒嗜中性球發炎反應減弱,導致微生物入侵發生率高。表面活性醣蛋白受體(C3bi)上調的明顯缺陷與聚集下降,也使新生兒對細菌感染反應受損。以 f-MLP 或 zymosan 活化血清刺激時,新生兒嗜中性球的 C3bi 表現明顯少於成人。
- GM-CSF 可改善 C3bi:臍帶血嗜中性球與 GM-CSF 共培養後 C3bi 明顯誘導;先以 GM-CSF 處理、再以鈣離子載體 A23187 刺激時,C3bi 表現也明顯增加。GM-CSF 上調 C3bi 似與聚集增強相關,並致敏嗜中性球,使其在 f-MLP 刺激後聚集增加。
- G-CSF 與 TNF:據報對成人與新生兒嗜中性球的調節方式與 GM-CSF 相似。以 G-CSF 或 TNF 致敏臍帶血嗜中性球後再用 f-MLP 刺激,可誘導 C3bi 受體表現,增強細菌相關活性與吞噬活性及超氧化物生成。
參與後天免疫的淋巴球 Lymphocyte Contributing to Acquired Immunity
淋巴球是後天免疫的關鍵組成,佔血中白血球的 20%,分為兩大類:
- T 淋巴球:在胸腺成熟,隨後分布到脾臟、淋巴結等周邊淋巴器官。
- B 淋巴球:在骨髓產生,在次級淋巴器官成熟,之後分化為分泌抗體的漿細胞(plasma cells)。
T 淋巴球生理與功能 T-Lymphocyte Physiology and Function
個體發生 Ontogeny
- 胸腺約在妊娠 6 週由第三鰓弓(third branchial arch)發生。
- 將成為 T 細胞前驅的造血幹細胞在妊娠 9 週前移到胸腺,先進入被膜下皮質區,再由皮質往髓質移動並分化。
- 雙陰性(double-negative)進入皮質的淋巴前驅不表現 T 細胞受體(T-cell receptor, TCR)及共受體 CD4、CD8;此時基因重排 α、β 基因,產生具獨特抗原特異性的 TCR。
- 雙陽性(double positive)重排好的 TCR 與 CD4、CD8 同時表現於細胞表面;能辨識「MHC 結合微生物胜肽」的 T 細胞被正向選擇(positively selected)。
- 單陽性(single positive)失去 CD4 或 CD8 其中之一;辨識「自體胜肽」者被負向選擇(negatively selected)而凋亡。
- 成熟進入髓質成熟 T 細胞為 CD4+ 或 CD8+,能結合宿主 MHC,但僅限 MHC 未結合自體抗原時。約 98% 胸腺細胞在此過程中被淘汰。
T 細胞受體多樣性 T-Cell Receptor Repertoire
- TCR 由兩條不同蛋白鏈組成,並與負責訊息傳遞的 CD3 相連。
- 多數 T 細胞的 TCR 為 α、β 鏈;約 5% 的 T 細胞改由 γ、δ 鏈組成。
- 每條鏈的胞外區類似免疫球蛋白,N 端為變異區(variable, V),C 端為恆定區(constant, C)。變異區含高變異的互補決定區(complementary-determining regions, CDRs),其中第三區(CDR3)賦予對特定處理後抗原的親和力。
- 多樣性來自各 T 細胞中 V、多樣(diversity, D)、接合(joining, J)基因片段的基因重組,由重組活化基因(recombination activating gene, RAG)1、RAG2 重組酶完成,或利用胞苷去胺酶(cytidine deaminases)進行基因轉換(gene conversion),因而形成抗原特異性廣泛的 T 細胞庫。
T 細胞亞型 T-Cell Subtypes
T 細胞大致分為 CD4+、CD8+,以及 CD4、CD8 皆非者。CD4+ T 細胞辨識結合於第二類 MHC 的抗原,再分為輔助 T 細胞(T-helper, Th)與調節 T 細胞(T-regulatory cells, Tregs)。
輔助 T 細胞 T-Helper Cells
| 亞群 | 主要角色 | 原文列出的細胞激素 |
|---|---|---|
| Th1 | 發炎性細胞;與單核吞噬細胞互動,提供對細胞內病原及受病毒感染細胞的細胞性免疫 | IL-2、IFN-γ、TNF、IL-13、GM-CSF |
| Th2 | 與 B 細胞合作,對抗蠕蟲;經調節抗體同型轉換參與過敏反應 | IL-4、IL-5、IL-9、IL-10、IL-12、IL-13 |
| Th17 | 抗感染時發揮類 Th1 效應,增加嗜中性球往感染處募集並活化巨噬細胞以清除病原;也可能在過敏、自體免疫及其他慢性發炎疾病中致病 | IL-17A、IL-17F、IL-21、IL-22、IL-26 |
調節 T 細胞 Regulatory T Cells
- Tregs 源自未活化 T 細胞(naïve T cells)。轉錄調節因子 forkhead box P3(FoxP3)對其發育至關重要,常作為生物標記。
- 下調免疫反應的方式:表現抑制性細胞激素(IL-10、transforming growth factor β)、細胞毒性分子、cyclic AMP 調節物,以及細胞激素競爭,以限制效應細胞及/或抗原呈現細胞的功能。
- 兩個族群:胸腺來源 Tregs(tTregs)在胸腺發育;周邊來源 Tregs(pTregs)在周邊由未活化 T 細胞發育而來。
- CD4+CD25+FoxP3+ Tregs 是胎兒/新生兒控制免疫反應的重要角色。胎兒 CD4+ T 細胞傾向分化為促進自體耐受的致耐受性 Tregs。
- 妊娠中期 Tregs 可佔淋巴組織全部 CD4+ 細胞的 15% 至 20%;足月兒臍帶血與成人周邊血則都低於 5%。
- CD4+CD25+ Tregs 數量減少及/或功能受損,被認為在 NEC 的致病機轉中很重要。
細胞毒性 T 淋巴球 Cytotoxic T Lymphocytes
- CD8+ T 細胞經抗原呈現與活化後,可分化為細胞毒性 T 淋巴球(cytotoxic T lymphocytes, CTLs)。
- 角色:防禦細胞內病原,並參與移植排斥與腫瘤監測。
- 殺傷機制:釋放成孔介質(perforin/granzyme 系統),或活化 Fas/Fas ligand 依賴的凋亡路徑。
γδ T 細胞 Gamma-Delta (γδ) T Cells
- 妊娠 6 至 8 週即可在胎兒胸腺與肝臟偵測到。
- 妊娠 16 週佔循環 T 細胞 10%,逐漸下降至足月約 3%;出生後主要存在於皮膚與黏膜表面。
- 獨特之處是 TCR 由 γ 鏈與 δ 鏈組成,其基因在胸腺成熟過程中重排。
- 角色仍不清楚,但會對非胜肽微生物代謝物起反應、具細胞毒性,並產生 IFN-γ、TNF 等細胞激素。
- 近期研究:產生 IL-17A 的 γδ T 細胞對新生兒期流感的保護性免疫反應很重要。
- 新生兒 γδ T 細胞的細胞毒性明顯低於成人;近期研究顯示到 2 歲時功能已成熟到類似成人。
自然殺手 T 細胞 Natural Killer T Cells
- NK T 細胞是 T 細胞的一個亞群,表現 TCR αβ 鏈及多種 NK 細胞標記。
- 在類 MHC 分子 CD1d 的呈現下辨識外源與內源脂質抗原。
- 第 I 型(不變型,invariant):表現保守的 αβ TCR,佔臍帶血 T 細胞不到 1%;已在人類胎兒小腸中發現。
- 第 II 型(多樣型,diverse):人類中數量多於第 I 型,表現相對多樣的 TCR α、β 鏈。
循環 T 細胞 Circulating T Cells
- 足月新生兒周邊血 CD4+ T 細胞數高於成人。
- CD4/CD8 比值在新生兒偏高(最高 4.9:1),4 歲時降至成人值(2:1)。
- 臍帶血 85% 的 T 細胞表現 CD38(成人低於 5%),但缺乏其他活化標記。
- 臍帶血近 80% 的 T 細胞為未活化 CD45RA 表型,成人循環 T 細胞則不到一半。
- 記憶型 CD45RO T 細胞比例到人生第二個十年才達成人水準。
新生兒 T 淋巴球功能 Neonatal T-Lymphocyte Function
- 數量:足月兒周邊血 T 細胞數高於成人;早產兒的 CD4+、CD8+ 淋巴球數則傾向低於足月兒,可能至少部分增加感染風險。相對地,早產兒臍帶血 Tregs 多於足月兒臍帶血或成人周邊血。
- CD4+ 功能:部分研究指出與成人不同。人類新生兒 Th1 功能下降;CD4+ T 細胞分泌較少 IL-12、IFN-γ,表面 CD154(CD40 ligand)也較少。臍帶血淋巴球產生 IL-17 的能力有限。
- Tregs:早產與足月新生兒的 Tregs 功能似都不如成人。原文描述新生兒 Tregs 限制 DC 與傳統 T 細胞接觸、下調 DC 共刺激分子,導致 DC 免疫原性下降與 T 細胞活化受損(語意見章末留意事項)。
- CTL:功能效率低於成人,穿孔素(perforin)表現較少。循環抑制物(如甲型胎兒蛋白 alpha-fetoprotein、前列腺素 prostaglandins)被認為與新生兒 CTL 活性受損有關。
- 另一些研究認為,新生兒 T 細胞也許不是成人 T 細胞「缺陷或不成熟」的版本,而是很適合周產期適應的獨特族群。
- 胎兒與新生兒期產生的 CD4+、CD8+ T 細胞,其特性與轉錄體和成人來源者不同,會持續存在到成年,與成年期產生的 T 細胞並存,並維持細胞固有行為。
- 可能區分新生兒與成人 T 細胞的關鍵特徵:來自胎兒造血幹細胞、快速增殖與分化的能力、TCR 多樣性低、TLR 表現增加、對發炎與危險訊號反應增強,以及形成記憶 T 細胞的能力受損。
T 細胞與 B 細胞的交互作用
- B 細胞的增殖、分化與存活需要抗原呈現帶來的 T 細胞訊號,以及 T 細胞來源的細胞激素(IL-2、IL-4、IL-5、IL-6、IL-10、IL-13、IFN-γ)。
- 受體-配體對包括:CD40(B 細胞)–CD40 ligand(T 細胞),在免疫球蛋白同型轉換時至關重要;以及 B7–CD28、CD11a(lymphocyte function-associated antigen–1)–ICAM-1、CD58–CD2。
- 新生兒 T 細胞的 CD40 ligand 表現低於成人,提供 B 細胞體液性與 CD40 依賴活化訊號的效率也較差。
B 淋巴球生理與功能 B-Lymphocyte Physiology and Function
個體發生 Ontogeny
B 細胞前驅來自骨髓的多能造血細胞。最早可辨識的是大型前 B 細胞(large pre-B cell),特徵為胞質內有 μ 重鏈。未成熟 B 細胞經歷類似 T 細胞的選擇,以淘汰辨識自體的細胞株;開始表現表面 IgM(sIgM)後,即可離開骨髓進入周邊循環。
- 7 週胎肝最早可見前 B 細胞。
- 9 週胎肝可見 sIgM+ B 細胞。
- 10–12 週出現帶表面 IgA、表面 IgG、表面 IgD(sIgD)同型的 B 細胞。
- 12 週骨髓可見前 B 細胞;骨髓、周邊血、脾臟可見 sIgM+ B 細胞。
- 16 週IgM/IgD+ B 細胞進駐淋巴結。
- 約 20 週首度出現漿細胞。
- 22 週脾臟、周邊血與骨髓中的 B 細胞比例與成人相近。
- 30 週骨髓成為 B 細胞成熟的唯一部位。
B 細胞亞型 B-Cell Subtypes
| 項目 | B1 細胞(CD5+) | B2 細胞(傳統型) |
|---|---|---|
| 時期 | 胎兒期的主要 B 細胞型;胎兒與新生兒多數 B 細胞表現 CD5(一種 T 細胞抗原) | 見於成人的傳統 B 細胞 |
| 特性 | 不依賴骨髓自我更新的能力較強;CD11b+ sIgMhigh sIgDlow 表型;持續表現 signal transducer and activator of transcription 3;分布於脾臟與腹腔 | 濾泡型 |
| 抗原反應 | 主要回應不依賴 T 細胞的碳水化合物抗原 | 回應蛋白質抗原,有重鏈類別轉換與親和力成熟 |
- CD5+ B 細胞比例:臍帶血佔全部 B 細胞 90%,嬰兒期降到 75% 至 80%,到青春期後期才接近成人;成人佔全部 B 細胞約 25% 至 35%,佔周邊血單核細胞不到 5%。
- B1 細胞在胎兒的角色:仍不清楚。其特殊分布、廣泛的多特異性與受限的免疫球蛋白庫,提示角色偏向先天而非後天免疫。
- 調節 B 細胞(regulatory B cells, Bregs):罕見亞群,CD19+CD24hiCD38hi,促進耐受並防止不必要的免疫反應。以佔全部 B 細胞的比例計,臍帶血多於成人周邊血;功能上也較具免疫耐受性,產生較多 IL-10,並抑制共培養 T 細胞產生 IFN-γ、IL-4。被認為有助於胎兒對半相合(haploidentical)母體的免疫耐受,使妊娠得以正常持續。
循環 B 細胞 Circulating B Cells
- 臍帶血 B 細胞多於成人周邊血,但 B 細胞與循環 T 細胞的比值相近。
- B 細胞數在 3 至 4 個月達高峰,然後逐漸下降,到 6 歲達成人水準。
- 早產兒 B 細胞數與足月兒相當,但生長遲滯嬰兒可能較少。
- 與成人不同,臍帶血多數 B 細胞表現活化標記(CD25、CD23、運鐵蛋白受體)。
新生兒 B 淋巴球功能:免疫球蛋白生成 Neonatal B-Lymphocyte Function: Immunoglobulin Production
- 胎兒與新生兒能對抗原挑戰產生抗體,但可能無法回應疫苗中所有抗原,或有其他不足,如同型轉換延遲。
- 整體而言,出生後年齡似比妊娠週數更能預測抗體反應。
- 白喉類毒素(diphtheria toxoid):早產與足月兒在生後 10 天內接種,反應弱於同樣接種的成人;於 1 至 2 個月大接種則反應較強。
- B 型肝炎疫苗:早產兒在嬰兒早期反應差,到嬰兒後期則與足月兒相當。
免疫球蛋白庫 Immunoglobulin Repertoire
- 多樣性來自 V、D、J 基因片段的 DNA 重組;不精確接合、在 VDJ 接合處加入額外核苷酸,以及體細胞突變再增加多樣性。
- 胎兒與新生兒的免疫球蛋白庫相對有限。妊娠早期至中期優先使用最靠近 J 片段的重鏈 V(VH)片段,因此 CDR3 區比成人短。
- 這種抗原結合位結構的改變,據推測可增加抗原結合的多特異性,但代價是抗體親和力較低。
- VH 片段的使用隨妊娠週數趨於平均,但未達成人水準。
- 新生兒抗體反應一般親和力低,且侷限於 IgM 同型。
- 重鏈與輕鏈變異區基因的體細胞突變,以及高親和力抗體 B 細胞的選擇,在出生時也有限,生後 10 天起緩慢增加。
血清免疫球蛋白濃度 Serum Immunoglobulin Levels
- 出生時血清中的免疫球蛋白多來自第三孕期經胎盤傳送的母體 IgG(尤其 IgG1、IgG3)。
- 足月新生兒血清 IgG(最高 1000 mg/dL)可與母體相近或更高;早產兒未接受到這些母體抗體,IgG 較低。
- 嬰兒早期因正常代謝而下降,在 3 至 5 個月大達最低點 300 至 500 mg/dL,此時嬰兒自身產量逐漸增加。
- 早產兒較早到達最低點,數值通常也較低。
樹突細胞生理與功能 Dendritic Cell Physiology and Function
- DC 是抗原呈現能力高度發展的特化單核細胞,負責啟動 T 細胞反應,在體液與細胞免疫中居於樞紐地位。
- 形態獨特:形狀不規則,具面紗狀皺褶細胞膜(lamellipodia)、許多偽足與大量膜突起。
- 顯微鏡下胞質內有明顯的粒線體、內體與溶酶體,是處理抗原所必需。
- 臍帶血與成人周邊血 DC 形態相同,但臍帶血比例較低(0.5%,成人 1%)。
個體發生 Ontogeny
多數 DC 來自多能造血幹細胞,沿骨髓系或淋巴系分化。例外可能是濾泡樹突細胞(follicular DCs):這是位於脾臟與淋巴結副皮質區、不移動的族群,可能源自間質(mesenchymal origin)。
樹突細胞亞型 Dendritic Cell Subtypes
| 亞群 | 標記與分布 | 功能特徵 |
|---|---|---|
| 1. 骨髓系 DC(myeloid DCs, mDCs)/傳統 DC(conventional DCs, cDCs) | 表現 CD11c、CD13、CD33、CD11b,相當於小鼠 CD11c+「典型」DC;人類可分 CD1c+ 與 CD141+ 兩部分 | 見下方條列 |
| 2. 漿細胞樣 DC(plasmacytoid DCs, pDCs) | 通常缺骨髓系抗原;以 CD123(IL-3 受體)、CD303(C-type lectin domain family 4, member C)、CD304(neuropilin)區分。靜止組織中很少,但可佔淋巴結 MHC class II 陽性細胞達 20%,發炎時迅速募集到這兩處 | 高量表現 TLR7、TLR9,遇病毒釋出第 1 型 IFN。與漿細胞無關;名稱反映細微的類淋巴特徵與豐富的分泌能力 |
| 3. CD14+ DC | 第三個 CD11c+ 亞群,見於組織與淋巴結;最初稱「間質 DC(interstitial DCs)」 | 比其他 mDC 更像單核球,可能源自典型 CD14+ 單核球 |
| 4. 蘭格罕細胞(Langerhans cells)與微膠細胞(microglia) | 分別位於複層鱗狀上皮與腦實質 | 兩種特化、可自我更新的 DC 族群 |
- CD1c+ mDC:人類 mDC 在血液(周邊血單核細胞的 1%)、組織與淋巴器官中的主要族群;在淋巴結內是 T 細胞區的「指狀交錯細胞(interdigitating cells)」。
- CD141+ mDC:CD141(thrombomodulin)見於較少比例的 mDC(周邊血單核細胞的 0.03%);攝取壞死細胞能力較強,以 TLR3、TLR8 感應病毒核酸,並將抗原交叉呈現給 CD8+ T 細胞。
- pDC 的兩個族群:依 CD2 表現推測有兩群,都表現 CD123、CD303,但 CD2+ DC 缺乏 CD2- DC 所具有的高 IRF7 與 IFN-I 生成能力。
- 血中 DC:包括 pDC、CD1c+ 與 CD141+ mDC,是組織與淋巴結 DC 的未成熟型。
- 組織 DC:多數上皮組織含「移行型」DC,取得抗原後經輸入淋巴管到淋巴結,呈現給 T 細胞。穩定狀態下組織含 CD1c+ mDC、CD141+ mDC 與 CD14+ DC,pDC 很少。
- 淋巴組織 DC:含血液來源、不移行的「淋巴型」或「駐留型」DC,以及部分來自組織的移行型 DC。
形態與表面標記 Morphology
- DC 表現許多單核細胞常見的表面分子:MHC 分子、CD4、CD45 異構型、黏附分子(ICAM-1、ICAM-2、ICAM-3、leukocyte function-associated antigen 1)與 Fc 受體(FcγRI[CD64]、FcγRII[CD32])。
- DC 成熟通常伴隨 CD80、CD83 高表現;受刺激時上調共刺激分子 CD40、CD80、CD86。
- 臍帶血 DC 的 ICAM-1(CD54)、MHC class I(HLA-ABC)、MHC class II(HLA-DR)、CD80、CD40 表現低於成人周邊血 DC。
- Liu 等比較臍帶血與成人周邊血單核球生成 DC 的能力:臍帶血單核球生成的 DC 較少,MHC class II 表現也較低;胞吞能力及刺激 CD3+ T 細胞的能力同樣下降。
功能 Function
- TLR 路徑活化可媒介 DC 成熟。Krutzik 等發現,TLR 活化單核球會誘導其快速分化為 DC,並可藉 TLR 媒介的 GM-CSF 上調而擴增。
- 成熟 DC 的細胞膜高量表現 CD80、CD83。可增加其表現的因子包括 TNF、細菌內毒素與單核球來源的發炎訊號;與其他細胞互動也能誘導 DC 成熟,例如 T 細胞媒介的 CD40 交聯。
- 臍帶血單核球來源 DC 的成熟標記 CD83、CD86 表現較低,IL-12(p40、p70)產量也少於成人 DC。
- 與成人 CD4+ T 細胞的混合白血球培養中,新生兒 DC 誘導的 IFN-γ 明顯較少,IL-10 較多(見 Table 71.2)。
- 新生兒 DC 作為 T 細胞促有絲分裂反應的輔助細胞,表現也較差。
先天淋巴細胞生理與功能 Innate Lymphoid Cell Physiology and Function
ILC 包含典型細胞毒性的自然殺手(natural killer, NK)細胞,以及近年描述的非細胞毒性 ILC 族群。它們有典型淋巴細胞形態,但不同於後天的 T、B 細胞,不具抗原特異性,屬先天免疫系統。
自然殺手細胞生理與功能 Natural Killer Cell Physiology and Function
NK 細胞能溶解標的細胞並分泌免疫調節細胞激素,佔周邊血淋巴球的 10%,特徵是缺淋巴球標記 CD3、表現 CD56。
個體發生 Ontogeny
- NK 細胞由主動脈-性腺-中腎區(aortogonadomesonephron)的定向淋巴前驅發育,之後在胎肝發育。
- 系別特異的 NK 前驅最早見於胎兒胸腺,之後見於骨髓。
- 人類 NK 發育早期需要 FMS-like tyrosine kinase(Flt)-3 ligand 或 Kit ligand,後期需要 IL-15。
- 近期依表面標記與功能成熟度,描述了不同的 NK 成熟階段。
自然殺手細胞亞型 Natural Killer Cell Subtypes
- 依表面 CD56 密度分為 CD56bright 與 CD56dim;早期 NK 細胞為 CD56bright,再進一步分化為 CD56dim。
- CD56dim 細胞毒性較強,佔 NK 族群 90%,也是周邊血的主要族群,表現 CD16(FcγRIII),具抗體依賴性細胞毒性。
功能 Function
- NK 細胞以細胞毒性及/或表現大量促發炎細胞激素來發揮效應。
- NK 細胞表現多類結合 MHC class I 或類 MHC class I 分子的受體,決定其被活化或被抑制。
- 未能與 MHC class I 互動且活化受體被活化時,便發生 NK 媒介的細胞溶解,如感染時的情形。
- 活化後朝標的細胞分泌含穿孔素、絲胺酸酯酶(serine esterases)與硫酸化蛋白聚醣(sulfated proteoglycans)的類溶酶體囊泡。穿孔素在標的細胞形成孔洞造成滲透性溶解;絲胺酸酯酶(包括顆粒酶 granzymes)誘導凋亡。
- CD56bright NK 細胞受細胞激素刺激後分泌 IFN-γ、TNF、GM-CSF,形成正回饋;也產生趨化激素,募集巨噬細胞與其他抗原呈現細胞,以更有效控制感染。
新生兒 NK 細胞的不成熟
- 新生兒 NK 細胞功能不成熟,導致免疫受損。
- 臍帶血 NK 細胞:成熟標記 CD8、CD57 較低(見 Table 71.2),不成熟標記 NKG2A 較高。
- 參與內皮黏附的 ICAM-1 與參與活化的 CD161 也低於成人 NK 細胞。
- 面對缺 MHC class I 的細胞時,臍帶血 NK 細胞去顆粒較少,IFN-γ、TNFα 產量也低於成人。
- 新生兒 NK 細胞的細胞溶解活性較低,使細胞內病原的清除受損。
非細胞毒性先天淋巴細胞生理與功能 Noncytotoxic Innate Lymphoid Cell Physiology and Function
個體發生 Ontogeny
與 NK 細胞相同,非細胞毒性 ILC 也源自共同淋巴前驅(common lymphoid progenitor),再分化為走向各亞群的前驅。近期研究確認 NK 細胞與非細胞毒性輔助型 ILC 屬於不同細胞系。
先天淋巴細胞亞型 Innate Lymphoid Cell Subtypes
- 具典型淋巴細胞形態,表現 IL-2 受體 α 與 IL-7 受體 α,但不具抗原特異性;大多駐留於組織。
- 亞群依發育所需轉錄因子、效應細胞激素表現及其他獨特效應功能來定義。
- 除直接媒介先天免疫反應外,也與組織微環境中的非造血細胞密切互動,並參與代謝恆定、組織修復與重塑。
- 三個亞群在細胞激素表現與效應功能上分別與 Th1、Th2、Th17 極為相似,因此被視為 T 淋巴球的先天對應物。
| 亞群 | 對應 Th | 轉錄因子 | 效應分子 | 角色 |
|---|---|---|---|---|
| ILC1 | Th1 | T-bet | IFN-γ、TNF | 防禦細胞內細菌與寄生蟲 |
| ILC2 | Th2 | GATA-binding protein three | IL-4、IL-5、IL-9、IL-13,及/或表皮生長因子受體配體 amphiregulin | 受上皮細胞來源的 IL-33、IL-25、TSLP 活化;促進組織修復、過敏疾病與抗蠕蟲免疫中的第 2 型發炎;近期發現也與氣喘等發炎性肺病的發生有關 |
| ILC3 | Th17 | RAR-related orphan receptor γT | IL-17A、IL-17F、IL-22、GM-CSF、TNF | 促進抗菌免疫、慢性發炎或組織修復 |
- ILC3 是異質族群,包含 CCR6+ ILC 及另外兩個依有無 NK 細胞受體(NCR)區分的亞群。CCR6+ ILC3 涵蓋 CD4+ 與 CD4− 的淋巴組織誘導(lymphoid tissue inducer, LTi)細胞。
- LTi 細胞是胚胎發育時形成淋巴結與腸道 Peyer 斑所必需。
- 近期發現:依特定病原訊號,ILC 亞群保有改變表型與功能的能力,具有一定可塑性(plasticity)。
功能 Function
胎兒與新生兒 ILC 的資料有限。
- ILC2:可在臍帶血偵測到,男嬰比例可能高於女嬰。ILC2 影響脂肪前驅細胞分化為白色或米色脂肪,因此可影響體溫恆定。
- 腹裂(gastroschisis)小鼠模型:暴露於羊水的器官含大量 ILC2、ILC3 及嗜酸性球增多,可被抗 IL-5 抗體逆轉。
- 妊娠相關疾病:另一研究認為 ILC3 是子癇前症(preeclampsia)病人 IL-17 升高的來源;妊娠/慢性糖尿病也與 ILC3 有關。
- 腸道 ILC3:在黏膜表面尤其是胃腸道含量豐富。有證據顯示部分 ILC3 亞群的發育與功能由微生物定殖所誘導,並參與增強 B 細胞 IgA 生成。ILC 產生的 IL-22 對局限及塑造腸道微生物叢很重要;在某些條件下 ILC3 也促進腸道幹細胞增殖。
- 雙面性:NCR- ILC3 也可能在大腸炎中致病,因此 ILC3 功能的精細平衡可能對腸道恆定很重要。
總結 Summary
- 新生兒嗜中性球、單核球、淋巴球、DC 與 ILC 的不成熟,使新生兒更易發生感染併發症,及/或感染更嚴重。
- 進一步了解這些缺陷背後的遺傳機制,將有助於發展未來預防及/或治療新生兒嚴重或猛爆性感染的策略。
臨床反思:NICU 視角 Clinical Reflection—NICU Perspective
- 判讀 ANC 要看出生後年齡與妊娠週數;Table 71.1 僅適用於生後 72 至 240 小時,生後早期的高峰時間也因週數而異(28 週以上 6 至 8 小時,未滿 28 週 24 小時)。
- 新生兒前驅細胞少、NSP 小,壓力下容易耗竭;嚴重敗血症的新生兒常出現嗜中性球低下。
- 持續性嗜中性球低下要想到免疫媒介;母親嗜中性球數正常並不排除同種免疫性,重度者應密切監測感染。
- 母親高血壓相關者多在 72 小時內緩解,幾乎都在 5 至 7 天內恢復;早產兒特發性者於第 4 至 10 週出現,即使 ANC <500/μL 仍會自行緩解。
- G-CSF/GM-CSF 用於疑似敗血症的早產兒,14 天死亡率未下降;獲益見於 ANC <1700/μL 的次族群。G-CSF 在免疫媒介性與許多先天性嗜中性球低下效果明確。
- 餵食不耐的 VLBW 嬰兒,AMC 下降超過 20% 可作為 NEC 線索;其陰性預測值 88%,診斷準確度則屬中等。
- 新生兒抗體反應以 IgM、低親和力為主,出生後年齡比妊娠週數更能預測抗體反應。
- 足月兒 IgG 主要來自母體,在 3 至 5 個月大達最低點;早產兒 IgG 較低,最低點更早也通常更低。
閱讀時請留意 Points to Verify
- 單核球比例:原文寫 4.5 週約 70% 後「falls from 1% to 2%」,語意不通,疑為降至 1% 至 2%。筆記未寫入確定數字。
- 循環單核球出現時間:同段先寫第 5 個月前未觀察到血管內單核球,又寫循環單核球在第 10 週後骨髓造血建立時才規律出現,兩者時間不一致。
- 前驅細胞池名稱:討論嗜中性球時,原文以「colony-forming unit–megakaryocyte」標示前驅細胞池;megakaryocyte 與嗜中性球系別不符,而同段所引文獻標題為 CFUc,疑為誤植。筆記改稱「前驅細胞池」,未引用此名稱。
- 「as discussed previously」:原文說新生鼠骨髓系增殖速率已接近最大值「如前所述」,但本章前文並未討論此點。
- 脾臟嗜中性球標記:原文寫 CD26Llow,而本章單核球段落使用 CD62L,疑為誤植;筆記照原文保留。
- TNF 生成:單核球功能段先說 IL-1β、IFN-α、TNF 在成人與新生兒合成量相近,後文與個體發生段卻說新生兒單核球 TNF 釋放減少、對 TLR 配體較不敏感。
- 單核球吞噬:Table 71.2 標示新生兒單核球吞噬作用低於成人,但內文未討論吞噬作用;Key Points 僅泛稱「除少數缺陷外可與成人相比」。
- Th 細胞激素:原文將 IL-12 列為 Th2 細胞激素,而後文新生兒 Th1 功能下降時又以 CD4+ T 細胞分泌較少 IL-12 為例;IL-13 同時列於 Th1 與 Th2,而 ILC2 段落將 IL-13 歸為 Th2 相關。筆記照原文列出,請查核。
- 新生兒 Tregs:原文先說新生兒 Tregs 功能不如成人,接著描述它們限制 DC 與 T 細胞接觸、造成 DC 免疫原性下降與 T 細胞活化受損,這是抑制作用有效的描述;該處引用文獻標題卻是新生兒 Tregs 抑制 DC 功能的能力下降。語意疑有誤。
- B 細胞成熟部位:章節開頭寫 B 細胞在次級淋巴器官成熟,個體發生段則寫骨髓在 30 週成為 B 細胞成熟的唯一部位。
- AMC 資料筆數:內文為超過 62,000 筆,所引文獻標題為 over 63 000 records。
- ANC 定義:原文把「低於平均值兩個標準差」與「低於第 5 百分位」並列為同一定義,兩者不完全等值。
- Table 71.1 百分位:第 5 百分位在 28–36 週(1000/μL)低於 <28 週(1300/μL),未隨週數單調變化;圖表與內文 OCR 一致,非抽字錯誤,惟原文未解釋。
- 同種免疫性分類:Fig. 71.2 將同種免疫性嗜中性球低下(HNA-1b)列於生成減少,同時也將同種免疫列於周邊消耗,原文未說明差異。
- 本章範圍:開頭提及新生兒造血與新治療方向,但全章沒有獨立的新生兒造血小節,新治療也僅散見於 G-CSF/GM-CSF 等討論。