PART II · FETAL GROWTH AND DEVELOPMENT · CHAPTER 3
胎盤的發育、功能與病理Development, Function, and Pathology of the Placenta
本章重點 Key Points
- 胎盤是哺乳類最早形成的器官,因為要先建立母胎血管介面(maternal–fetal vascular interface),才能供應發育中孕體(conceptus)的能量需求。
- 胎盤由多種細胞組成,功能涵蓋附著、侵入、血管重塑、細胞融合、激素製造與營養運輸。
- 廢物與營養跨胎盤運送有多種機制:擴散(diffusion)、運輸蛋白媒介(促進性擴散與主動運輸)、受體媒介(receptor-mediated)。
- 胎盤不是被動的運輸介面:足月時它消耗子宮所獲氧氣與葡萄糖的 40%–60%。因此改變胎盤代謝的狀況,可間接影響對胎兒的營養運送。
- 在美國,妊娠 28–37 週之間的出生,將近一半是醫源性分娩(iatrogenic delivery),主因是子癇前症(preeclampsia)或子宮內生長遲滯(intrauterine growth restriction)等胎盤病變。
- 產後胎盤檢查的標準化正在推動,以便更清楚界定特定胎盤問題與不良結局的關聯;同時也在開發新的進階影像技術與胎盤功能生物標記。
導論:為何新生兒科要懂胎盤 Introduction
- 胎盤的角色:生命短暫,卻讓哺乳類胎兒能在原本不宜生存的子宮內環境存活與成長;任務從固定孕體、避免被母體免疫系統排斥,到運送母體與胚胎/胎兒之間的營養與廢物。
- 如同其他器官,這些功能由系譜已決定(lineage-committed)的前驅細胞分化出的多種專職細胞負責;遺傳、表觀遺傳(epigenetic)與生理訊號共同引導各孕期的胎盤發育。
- 胎兒程式化(fetal programming):內在或外在傷害使上述過程受損,可造成胎盤功能不良,並導致疾病易感性長期升高。
- 早產兒與足月兒都會受胎盤功能不佳所害,尤其是極低出生體重(extremely low birth weight,<1 kg)者。早產兒可能先在子宮內經歷胎盤功能不良,出生後又過早失去胎盤支持,包括營養、激素與免疫保護。
- 族群趨勢:早產率持續上升,而醫療處置與科技進步提高了早產兒存活率,兩者匯合使得住進並離開加護嬰兒室的病人族群擴大。
- 長期風險:這些嬰兒不僅較易出現支氣管肺發育不良(bronchopulmonary dysplasia)、生長遲滯(failure to thrive)、肺高壓(pulmonary hypertension)、腦性麻痺(cerebral palsy)與失明,也較易發生成人慢性病,如糖尿病與心臟病。
- 改善新生兒照護對減輕早產的長期後果固然重要,但預防或延後早產才會帶來最大的健康照護效益。因此,更了解最常見的胎盤病變,對母體、胎兒與成人醫學都至關重要。
胎盤的發育 Development of the Placenta
滋養層系譜分配 Trophoblast Lineage Allocation
從受精卵到囊胚
- 胎盤最先形成,原因是必須先有可運作的母胎血管介面,才能滿足孕體的能量需求。
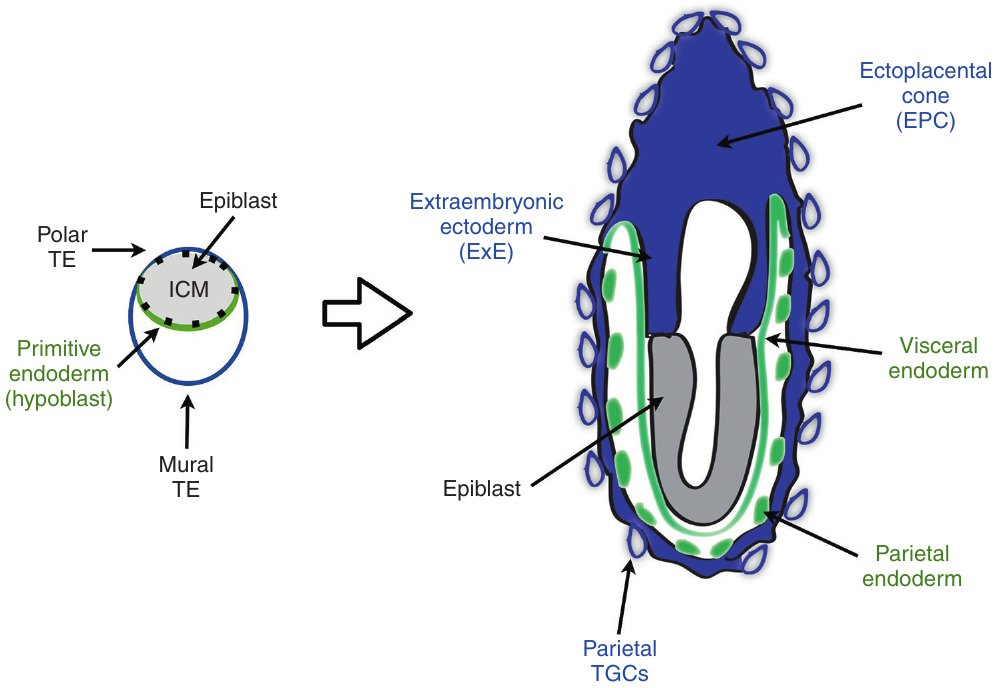
- 受精胚胎在著床前分裂,產生最多 8 個外觀相同的卵裂球(blastomere);再經三輪分裂形成囊胚(blastocyst),內含兩群不同細胞:
- 滋養外胚層(trophectoderm, TE):包圍囊胚外圍,日後形成胎盤。
- 內細胞團(inner cell mass, ICM):位於囊胚內部,形成胚胎與臟層內胚層(visceral endoderm)。
- 全能性(totipotent):小鼠每個卵裂球都可生成 ICM 或 TE 的衍生細胞,人類亦然。一旦決定走向 TE 或 ICM,一般認為大致不可逆。
- 不過,早在四細胞期,個別卵裂球對走向哪一系譜就已帶有內在偏向,這似乎取決於位置訊號(positional cues)。
決定系譜的分子機制
- Hippo 訊號路徑:囊胚內、外層細胞在極性與黏附上的差異,是主要決定因素之一,並與 Hippo 訊號的活化程度不同相關。
- Hippo 協助限制關鍵系譜調控基因(如 Cdx2)的表現。小鼠 Cdx2 早在八細胞期就隨機表現,之後才侷限於 TE。
- Notch 訊號:與 Hippo 平行作用,促進 Cdx2 表現。
- E-cadherin:其表現所主導的位置訊號協助調控 Hippo。ICM 內側細胞的細胞間接觸會活化 Hippo,並抑制細胞核內的 YAP 活性。
- CDX2 的作用(小鼠):
- 抑制 ICM 身分的關鍵基因,如 Oct4 與 Nanog。
- 小鼠胚胎缺少 CDX2 時無法分化出 TE,囊胚期全部細胞都表現原本侷限於 ICM 的 OCT4 蛋白。
- 僅表現 CDX2 就足以把胚胎幹細胞(embryonic stem cells, ESCs)轉變成滋養層幹細胞(trophoblast stem cells, TSCs),後者可貢獻胎盤內所有系譜。
- 正回饋維持 TE(小鼠):Eomesodermin(EOMES)、ETS-related transcription factor 5(ELF5)、ETS proto-oncogene 2(ETS2)、transcription factor AP-2 gamma(TCFAP2c)合併作用,維持 Cdx2 表現與 TE 系譜。
- 內源性反轉錄病毒序列:ELF5、CDX2、EOMES 可共同結合帶有內源性反轉錄病毒序列的強化子(enhancer),調控數百個 TSC 基因,顯示這些序列是小鼠滋養層專一的強化子。
演化觀點
- 不同胎盤哺乳類嵌入這些外來病毒元件的差異,可能促成動物界胎盤結構的多樣性。
- 真獸類(eutherian)子宮與胎盤平行演化:近期發現這牽涉由古老轉位元件(transposable elements)媒介的子宮內膜基因調控網路大規模快速改變,以調節對妊娠激素及其他路徑的反應,確保妊娠成功。
- 這些遺傳機制加上宿主與病毒的交互作用,使胎盤—子宮軸快速演化,並促成今日哺乳類生命型態與生殖方式的多樣性。
滋養層分化 Trophoblast Differentiation
- 胎盤細胞種類多、功能差異大,滋養層專屬前驅細胞必須完成一連串複雜的系譜限制決定,才能形成有功能的胎盤。
- 小鼠的兩個來源:
- 胚外外胚層(extraembryonic ectoderm):分化為絨毛膜(chorion)與迷路層(labyrinth),負責胎盤運輸。
- 外胎盤錐(ectoplacental cone):較靠近子宮著床處,分化為海綿滋養層(spongiotrophoblast layer)、肝醣滋養層細胞(glycogen trophoblasts)與滋養層巨細胞(trophoblast giant cells, TGCs)。
- 血絨毛膜胎盤(hemochorial placenta):人類與囓齒類皆屬此型,母體血管空間直接接觸已分化的滋養層細胞,而非內皮細胞。胎盤要發揮運輸器官的作用,必須在母胎循環之間建立廣大的血管介面。
- 人類襯於母體小動脈空間的滋養層細胞已有相當了解,但對引流血管床相關的細胞所知甚少。
- 小鼠 TGC:至少似有 5 群,位於母體血管空間的不同位置,依位置與系譜特異基因表現界定,來源各異。
- 「巨大」的由來:部分反映其 DNA 含量;DNA 持續複製但不進行細胞分裂,稱為核內複製(endoreplication)。一般認為需要體積很大或代謝很活躍的細胞會採用這種內週期(endocycle)。
- 激素來源的物種差異:小鼠胎盤激素大多由 TGC 製造;人類則由融合滋養層細胞(syncytiotrophoblast, SynT)層製造。這可能解釋為何人類侵入型滋養層亞型的倍體數低於囓齒類,但它們似乎仍有相當程度的非整倍性(aneuploidy)。
滋養層侵入 Trophoblast Invasion
最初的侵入波
- 小鼠:初級 TGC(primary TGCs)由壁端 TE 分化而來,是第一種協助著床的終末分化細胞。
- 人類:一般認為著床後第一波侵入是先形成原始融合體(primitive syncytium),細胞滋養層細胞(cytotrophoblasts, CTBs)約於妊娠第 13–14 天後穿過它。囓齒類沒有這波早期融合。
- 小鼠次級 TGC(secondary TGCs)的來源:Tpbpa/4311 陽性的外胎盤錐外層細胞,或 Tpbpa/4311 陰性的絨毛膜前驅細胞。
| 亞型 | 位置與功能 |
|---|---|
| 螺旋動脈 TGC Spiral artery (SpA) TGC | 侵入螺旋動脈,取代平滑肌與內皮細胞以重塑血管 |
| 管道 TGC Canal TGC | 襯於將母血送往迷路層基部的大血管空間 |
| 竇狀 TGC Sinusoidal TGC | 位於迷路層的小血管空間內 |
| 壁層 TGC Parietal TGC | 環繞大片缺氧血池,這些血最終引流至母體子宮靜脈 |
滋養層襯覆血管的兩種機制
- 血管侵入合併內皮模擬(vascular invasion with endothelial mimicry):滋養層侵入並取代母體小動脈內的內皮細胞。包括小鼠的 SpA-TGC,及人類的血管內滋養層細胞(endovascular trophoblasts, EVTs,亦稱絨毛外滋養層細胞 extravillous trophoblasts)。
- 血管生成模擬(vasculogenic mimicry):滋養層經形態發生,從頭(de novo)建立血管管腔。小鼠由竇狀 TGC 執行;人類胎盤是否也有此現象並不清楚。
- 把滋養層細胞移植到小鼠皮下,或在體外培養成三維滋養球(trophospheres),可觀察到從頭形成的血管空間:產生含大血竇的腫瘤,血竇由滋養層而非宿主內皮包圍。
- 許多已知調控內皮發育的路徑,也驅動滋養層分化與母胎血管介面形成。
滋養層接手內皮的止血功能
- 內皮與滋養層都是成人與胎兒循環止血的主要調節者。
- 滋養層能像內皮細胞一樣調控凝血級聯,製造血栓調節素(thrombomodulin)、組織因子(tissue factor)、組織因子路徑抑制物(tissue factor pathway inhibitor)、annexin V 與內皮蛋白 C 受體(endothelial protein C receptor)。
- 這些因子對防止發育中胎盤發生血栓或出血事件至關重要。換言之,哺乳類胎盤靠滋養層接手內皮的職責,解決了血絨毛膜胎盤的難題。
人類子宮血管重塑
- 子宮血管重塑對人類與小鼠的妊娠成功都很關鍵。
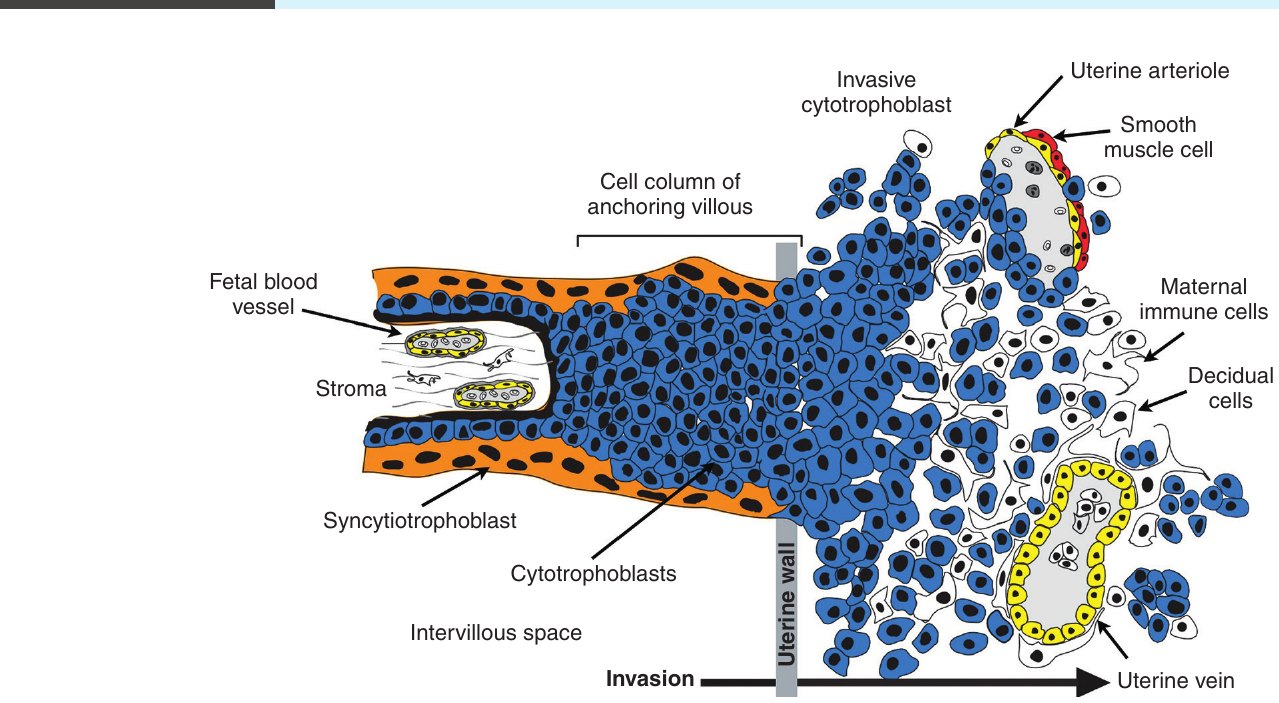
- 人類的侵入型 EVT 相當於 TGC,源自錨定絨毛(anchoring villi)尖端的細胞柱 CTB 前驅細胞。
- 間質侵入(interstitial invasion):EVT 穿越子宮實質,尋找母體螺旋小動脈與靜脈;此侵入在妊娠早期達高峰,約 9–12 週。
- 血管內侵入(endovascular invasion):EVT 突破螺旋小動脈,取代原有內皮與平滑肌細胞,將高阻力血管重塑為低阻力、高容量的通道,這是胎兒充分灌流與調節母體血行動力所必需。
- EVT 與靜脈的互動大多限於子宮內表面,但會沿著母體小動脈在子宮內的大部分行程移動。
- 早期起血管內侵入很早就開始,通常始於胎盤床中央。
- 第一孕期EVT 反而堵住血管,阻止血流進入胎盤。因此第一孕期的胎盤發育全程處於高度缺氧環境,養分主要來自子宮內膜分泌物,即組織營養(histiotrophic nutrition)。
- 第一孕期末子宮動脈血才開始流入絨毛間隙(intervillous space)。
- 18 週實際被侵入的子宮螺旋動脈僅約三分之一。
- 第二、三孕期較外側的動脈才逐步被侵入。
- 足月產後檢視時大部分螺旋動脈已完全重塑。
絨毛的融合滋養層 Syncytiotrophoblast formation
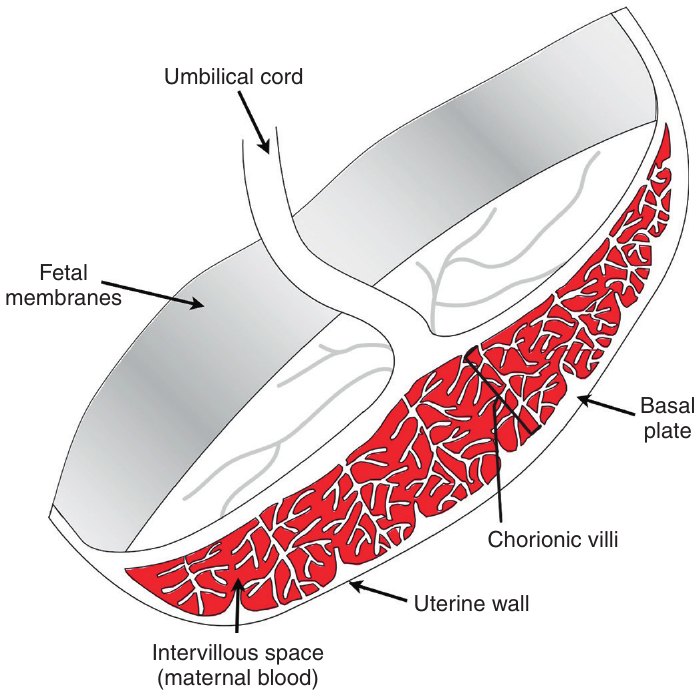
- 血管解除堵塞後,母血開始浸泡漂浮絨毛(floating chorionic villi),其表面覆蓋一層多核 SynT。
- SynT 由系譜已決定的前驅細胞融合而成。為何需要多核融合體尚不清楚,演化上可能源於對病毒感染的反應,有助減少病原傳給胎兒。
- 融合所需條件:融合蛋白(fusogenic protein,尤其是 syncytins)表現,加上劇烈的細胞骨架重組,似乎是必要的。
- 凋亡相關機制的挪用:
- 常與凋亡相關的 caspase 8 活性,有助人類 SynT 形成。
- 細胞骨架變化常伴隨磷脂醯絲胺酸(phosphatidylserine)外翻到細胞膜外葉;它通常是凋亡細胞的「吃我」訊號,此處則與 SynT 融合相關。
- SynT 形成時凋亡並未完成,融合體維持在這種「凋亡前」(preapoptotic)狀態,直到脫落進入母體循環。
- 融合所需的細胞骨架劇變加上膜脂質雙層組成改變,使 SynT 的生物物理性質變得硬得多,可能有助胎盤的感染屏障特性。
胎盤的功能 Placental Functions
運輸 Transport
胎盤運輸由位於母胎介面的多核 SynT 執行,廢物與營養的跨胎盤運送有多種機制。
| 機制 | 對象/例子 | 重點 |
|---|---|---|
| 擴散 Diffusion | 氧氣(被動擴散) | 最簡單的機制;速率取決於溶質的分子性質與濃度,以及交換屏障的組成 |
| 促進性擴散運輸蛋白 Facilitated diffusion transporters | 葡萄糖運輸蛋白(GLUT)家族;GLUT1 媒介葡萄糖運輸 | 親水性分子不易穿過細胞膜,需運輸蛋白;順濃度梯度 |
| 主動運輸蛋白 Active transporters | 鈣、胺基酸 | 逆濃度梯度 |
| 受體媒介 Receptor-mediated | 母體抗體(IgG) | 抗體媒介免疫由母傳胎 |
擴散與屏障結構
- 運輸介面的高表面積,加上囓齒類與人類胎盤的血絨毛膜特性,使跨胎盤擴散很有效率。
- 屏障層數:足月人類胎盤僅一層 SynT 隔開母血與胎兒微血管內皮;小鼠則令人意外地有兩層 SynT 加一層竇狀 TGC(S-TGC)。這些層會逐漸變薄,以降低屏障作用並增加交換面積。
- 氧氣:以被動擴散通過胎盤,並受胎兒血紅素的高親和力及母胎血管床間的濃度差所助。
- 血流方向:小鼠的母胎血管空間排列形成逆流交換(countercurrent exchange),使運輸效率最大化;人類則是效率較低的多絨毛排列,因此相對於小鼠需要較大的胎盤。
胺基酸與胎兒—胎盤代謝互動
- 胎兒循環中幾乎所有胺基酸濃度都高於母體,顯示胎盤或胎兒會主動攝取和/或合成這些營養素。
- 胎兒—胎盤單位彼此以及與母體循環在物理與代謝上相連。最終,全部胎兒—胎盤代謝都受限於母體循環送來的養分。
- 但胎盤與胎兒肝臟都能製造及代謝多種營養素,影響其在胎兒—胎盤循環的濃度,且大致獨立於胎盤運輸機制。
- 綿羊的例子:子宮內胎羊肝臟主動製造大量絲胺酸(serine)與麩胺酸(glutamate),供其胎盤消耗。
- 胎盤中絲胺酸轉為甘胺酸(glycine),此過程參與依賴單碳代謝(one-carbon metabolism)的 DNA 甲基化路徑,而後者在細胞命運調控與生長機制中很重要。
- 非葡萄糖碳水化合物:果糖、甘露糖、肌醇、山梨醇由胎盤運輸或合成,對調節胎兒生長及氧化還原(redox)很重要。
IgG 傳遞
- IgG 跨人類胎盤運輸約從妊娠 16 週開始;胎兒血清 IgG 在 26 週達到母體濃度。
- 此過程效率極高,足月時胎兒濃度可超過母體。
代謝 Metabolism
胎盤本身的高代謝
- 足月時,胎盤僅占子宮總質量約 10%–20%,卻消耗送達子宮之氧氣與葡萄糖的 40%–60%。
- 粒線體融合(mitochondrial fusion):可提升粒線體生物能量容量,是小鼠形成侵入型 TGC 的關鍵,受損時引發胎盤衰竭。粒線體融合也能促進心肌細胞分化,凸顯細胞代謝與細胞命運決定之間的保守機制。
- 因此,胎盤代謝功能改變可從兩方面影響氧氣與養分送達胎兒:改變胎盤本身的代謝需求,以及影響細胞命運調控路徑。
- 有氧糖解:初代培養的人類 CTB 相較其他終末分化成人細胞,有氧糖解(aerobic glycolysis)速率很高,類似靠高糖解通量增加生合成前驅物的快速增生癌細胞。
- 乳酸:有氧乳酸生成(Warburg effect)也使胎盤能製造並輸送大量乳酸給胎兒,而胎兒可輕易氧化乳酸。胎盤在妊娠中期似乎也能代謝乳酸,但到足月失去此能力。
- 肝醣:上述研究亦顯示,滋養層在分化成終末 SynT 之前,肝醣分解(glycogenolysis)有助供應增生期的高葡萄糖消耗。部分人類子癇前症(preeclampsia, PE)胎盤的 SynT 層有過量肝醣堆積,符合其周轉改變,也暗示此妊娠併發症可能與葡萄糖代謝改變有關。
代謝異常與妊娠併發症
- 流行病學研究證實,葡萄糖與脂肪酸代謝紊亂可能驅動妊娠併發症。例如,母體妊娠糖尿病(gestational diabetes mellitus, GDM)與肥胖,各自且相加地與 PE 及自發性早產的比率升高相關。
- PE 與早產(preterm labor, PTL)的致病機轉可能共享滋養層侵入受損這一機制:至多 30% 的自發性 PTL 病人,其胎盤病變符合 PE 常見的螺旋動脈重塑受損。
- 因此,更了解胎盤代謝與胎盤發育的關聯,可能有助理解日益嚴重的早產問題。
代謝壓力下的不同適應
| 單純缺氧(高海拔) | 母體營養不足 | |
|---|---|---|
| 胎盤代謝 | 似乎減少氧氣消耗、轉向糖解以維持能量需求 | 未詳述;小鼠熱量限制時流失肝醣滋養層細胞 |
| 胎盤生長 | 保留 | 受限 |
| 氧氣送達 | 保留對胎兒的氧氣供應 | 子宮氧氣供應相對保留 |
| 葡萄糖送達 | 以犧牲葡萄糖為代價 | 對胎兒的葡萄糖供應受損 |
| 胎兒生長 | 受限(胎兒低血糖與胎兒生長受限強烈相關) | 文中僅述與胎盤生長受限相關 |
- 胎盤因 IUGR 等造成灌流不足時,同樣以特定方式改變代謝。
- 胎盤細胞種類多,細胞命運調控路徑改變所造成的細胞組成變化,很可能在代謝通量重新分配中扮演重要角色。
- 缺氧誘導因子(hypoxia-inducible factor-1, HIF-1):單純缺氧使人類胎盤 HIF-1 濃度及目標基因表現上升,而 HIF 活性調控滋養層細胞命運,暗示它可能參與這些病理變化。
- HIF 可透過多種方式媒介對缺氧的代謝適應:抑制粒線體氧氣消耗、增加糖解、調節葡萄糖運輸與胺基酸代謝。
內分泌功能總論 Endocrine Function
- 人類 SynT 除運輸外,也分泌大量妊娠相關激素。哺乳類胎盤製造的激素種類之多、數量之大,超過任何單一內分泌組織。
- 接近足月的產量:類固醇激素(主要是雌激素與黃體素類)約 0.5 g/day;蛋白質激素(泌乳素類、生長因子及類似下視丘—腦垂體—腎上腺軸〔hypothalamic–pituitary–adrenal, HPA〕的激素)超過此速率的兩倍。
- 許多激素有物種特異性,但激素類別(類固醇、類腦垂體、類下視丘等)及其內分泌、旁分泌、自分泌功能常見保守。
類固醇激素 Steroid Hormones
- 胎盤是「不完整」的類固醇生成器官,沒有從頭製造雌激素與黃體素類的完整酵素組。其合成依賴來自母體與胎兒的前驅物,因此有母—胎—胎盤整合單位(maternal–fetal–placental unit)的概念。
- 母體循環中的類固醇激素濃度隨妊娠大幅上升。
| 黃體素 Progesterone | 雌激素 Estrogens | |
|---|---|---|
| 主要前驅物來源 | 母體(低密度脂蛋白來源的膽固醇) | 胎兒(胎兒腎上腺的 DHEA-S) |
| 胎盤關鍵酵素 | cytochrome P450 側鏈切割酶;type-1 3β-HSD | 胎盤硫酸酯酶(sulfatases)、3β-HSD、芳香化(aromatization)、17β-hydroxylation |
| 主要去向 | >90% 到母體,其餘到胎兒 | E3 大部分分泌到母體;E1 是唯一優先分泌到胎兒的雌激素 |
| 反映什麼 | 胎盤功能,非胎兒安好 | E3、E4 是胎兒功能的指標,但都不是臨床實用標記 |
黃體素 Progesterone
- 膽固醇進入:源自低密度脂蛋白(low-density lipoprotein)的母體膽固醇被送到胎盤,與 SynT 上的 LDL 受體結合,經胞吞進入,在溶酶體水解為游離膽固醇。
- 人類胎盤沒有明顯的 3-hydroxy-3-methylglutaryl coenzyme A 活性,因此必須用母體膽固醇製造孕烯醇酮(pregnenolone),這是類固醇合成的第一步。
- 合成路徑:膽固醇在粒線體內由 cytochrome P450 cholesterol side-chain cleavage enzyme 轉為孕烯醇酮;移至細胞質後,由 type-1 3β-hydroxysteroid dehydrogenase 轉為黃體素。
- 卵巢—胎盤轉換(ovarian–placental shift):轉換前,妊娠黃體(corpus luteum)是黃體素主要來源;排卵後 35–47 天,胎盤製造的黃體素已足以維持妊娠。
- 分布:大部分(>90%)到母體,其餘到胎兒;也有少量孕烯醇酮釋入循環。
- 胎兒有合成孕烯醇酮的酵素活性,但製造黃體素的能力極小。胎兒循環中高濃度黃體素來自胎盤,所以循環黃體素濃度反映的是胎盤功能,而非胎兒安好。
- 代謝物:
- 黃體素可代謝為 17-hydroxyprogesterone(17-OHP),但酵素相對效率偏向製造黃體素。第三孕期黃體素達高峰時,17-OHP 確實上升。
- 5-dihydroprogesterone(5-DHP)及其代謝物 allopregnanolone 也由 SynT 製造,隨妊娠增加。假說認為這些類固醇在胎兒腦部發育中有內分泌作用,並在缺氧時提供神經保護。
- 治療用途:黃體素或 17-OHP 合成型,用於試管嬰兒(in vitro fertilization)後輔助維持妊娠,或在妊娠後半用於預防有早產史婦女的早產。
- 維持妊娠的機轉:部分靠抑制子宮收縮。黃體素抑制促進收縮的基因,並具免疫抑制活性,可能促進子宮靜止(uterine quiescence);它也對抗子宮內的雌激素作用。
- 與分娩的關係:多數哺乳類在分娩前黃體素濃度下降;人類分娩前則沒有黃體素撤退本身。一般推測黃體素受體表現的調節,加上黃體素與雌激素平衡的轉移,扮演相同的生物學角色。
- 治療反應與母—胎—胎盤單位正常生理機制的關係目前尚不清楚。
雌激素 Estrogens
- 不同於黃體素需要母體前驅物,雌激素生成依賴胎兒前驅物。妊娠期雌激素由 C19 類固醇合成,主要是胎兒腎上腺製造的硫酸脫氫表雄酮(dehydroepiandrosterone sulfate, DHEA-S)。
- 胎兒腎上腺以硫酸化快速使類固醇失活:孕烯醇酮被硫酸化並轉為 DHEA-S,之後可能在胎兒肝臟羥基化。
- 這些無生物活性的雄性素回到胎盤,胎盤硫酸酯酶快速切除硫酸基。
- 胎盤 3β-hydroxysteroid dehydrogenase 把 DHEA 或羥基化 DHEA 分別轉為雄烯二酮(androstenedione)或羥基化雄烯二酮。
- 這些雄性素經芳香化成為雌酮(estrone, E1)、16α-OH estrone 或 15α-OH estrone。
- 再經胎盤 17β-hydroxylation 分別轉為雌二醇(estradiol, E2)、雌三醇(estriol, E3)或 estetrol(E4)。
- E3 是妊娠的主要雌激素,大部分分泌到母體;E1 是唯一優先分泌到胎兒的雌激素。
- 母體 DHEA-S 占 E2 合成前驅物的 40%;E3、E4 則主要來自胎兒前驅物,因母體肝臟的 5α-hydroxylation 或 16α-hydroxylation 能力有限。
- E3、E4 因此是胎兒功能指標,但循環濃度變動快速,都不是臨床實用標記。高濃度 E3 的主要功能仍不清楚,但確實增加子宮胎盤血流。
- 作用:影響子宮生長、血流、收縮、代謝與乳房發育。
- 高濃度並非必需:缺乏胎兒與胎盤硫酸酯酶或芳香酶時,分娩仍可進行,但後者胎兒與母親都會男性化。這類妊娠仍有循環雌二醇;至今沒有雌激素完全測不到的妊娠報告,暗示基礎濃度的雌激素很可能是必需的。
- 分娩前:子宮內組織的雌激素/黃體素比上升,可能增加前列腺素(prostaglandin, PG)與催產素(oxytocin, OT)活性。
- 交互調控:類固醇生成受促激素及其他因子(包括類下視丘釋放或抑制激素)影響;雌激素又影響其他內分泌系統(如腎素—血管張力素系統),並支持器官成熟,如肺部表面張力素(surfactant)生成。
糖皮質素 Glucocorticoids
- 除性類固醇外,妊娠期循環糖皮質素與礦物性皮質素也上升。
- 胎盤能製造皮質醇(cortisol),並經 11β-hydroxysteroid dehydrogenase type 2 轉為無活性的可體松(cortisone);此酵素也在胎盤介面轉化母體皮質醇。
- 此系統的主要作用似乎是保護胎兒免於高皮質醇暴露,而這種暴露可能參與胎兒 HPA 軸的長期再程式化。
- 氧化與還原雙向酵素活性調節皮質醇與可體松的平衡:胎盤以皮質醇氧化為可體松為主;蛻膜(decidua)則以逆反應為主,可能提供局部激素暴露。
類腦垂體激素 Pituitary-Like Hormones
胎盤需要一組類腦垂體的生長激素共同運作,才能在支持胎兒生長的同時,維持母體代謝恆定。
| hCG | hCS(人類胎盤泌乳素) | hGH-V | |
|---|---|---|---|
| 結構 | 醣蛋白異二聚體,36–40 kDa;α、β 次單元 | 單鏈非醣化胜肽,191 個胺基酸 | 22 kD 非醣化型(高活性)為主,25 kD 醣化型較少 |
| 基因 | α 在第 6 對、β 在第 19 對染色體 | 第 17 對染色體基因簇 | 第 17 對染色體同一基因簇 |
| 來源 | 胎盤形成前由滋養層製造;之後主要是 SynT | SynT,全孕期恆定速率 | 胎盤;15–20 週至足月分泌增加 |
| 時序 | 受孕一週內可測得;9–10 週達高峰約 50 IU/mL;妊娠中期降至 1 IU/mL | 受孕 10 天內見於胚外組織;第 3–4 週見於母血;足月 1 g/day | 足月分娩前約一個月達高峰;產後立即消失 |
| 分布 | 經分泌進入母體循環 | 幾乎只在母體循環 | 母體循環;胎兒循環測不到 |
| 主要作用 | 維持黃體製造黃體素,並調控胎盤結構與功能 | 確保胎兒營養;生長激素樣與泌乳活性 | 調節母體代謝與 IGF-1 製造;促成妊娠胰島素阻抗 |
人類絨毛膜促性腺激素 Human Chorionic Gonadotropin, hCG
- 來源:最早的妊娠激素之一,胎盤形成前就由滋養層製造,且為人類妊娠所特有。胎盤形成後主要由 SynT 合成,分泌至絨毛內空間(原文 intravillous space)後進入母體循環。
- 結構:醣蛋白異二聚體(36–40 kDa),α、β 次單元分別由第 6、19 對染色體基因編碼。α 次單元與腦垂體 TSH、LH、FSH 同源;β 次單元與 LH 同源。只有完整 hCG(同時具 α、β)才有內分泌活性。
- 受體:與 LH 共用 LH chorionic gonadotrophin receptor(LHCGR),故能模擬 LH;但 hCG 半衰期較長、較穩定,而腦垂體 LH 為脈衝式釋放,兩者功能在量上不同。
- 維持黃體:hCG 維持黃體製造黃體素,直到此功能轉給成熟中的胎盤。hCG 在黃體素製造由卵巢轉到胎盤後約 2 週達高峰,可能藉此將失去黃體素環境的機會降到最低。
- 臨床檢測:
- 受孕後一週內即可在血清或尿液測得,是最常用的妊娠生化標記。
- 早期妊娠可用倍增時間預測整體妊娠結局:首次測得後,平均倍增時間 2.11 天。
- 約於末次月經起算 9–10 週達高峰(約 50 IU/mL),到妊娠中期降至 1 IU/mL。
- 倍增異常緩慢,視為妊娠預後不良的徵象;hCG 上升但未見子宮內胚胎,提示子宮外孕(ectopic pregnancy)。
- 胎盤內作用:對表現 LHCGR 的滋養層為自分泌訊號,促進 SynT 分化;因 hCG 主要由 SynT 製造,形同放大自身產量。此路徑造成的受體磷酸化,也降低分化中 SynT 的 LHCGR 表現,完成回饋迴路。
- 其他可能作用:可能參與子宮內膜血管新生、子宮靜止與對胎兒的免疫耐受。hCG 可改變母體 TSH、提高游離甲狀腺素(free thyroxine, T4),但此上升似乎不會造成母體甲狀腺亢進。
- 醣化與次單元調控活性:
- 高醣化型(hCG-H)見於早期妊娠及絨毛膜癌(choriocarcinoma)細胞,似可增強滋養層侵入,因而可能是胎盤侵入子宮內膜的極早期生物標記。
- 極早期妊娠 hCG 醣化程度下降,與早期流產相關。
- 早期 β 次單元產量超過 α,但比例很快轉為 α 過量,且隨妊娠增加;循環 hCG 多為完整 hCG 或游離 α-hCG。
- 有人提出,母血與尿液中各 hCG 異構型(完整 hCG、獨立次單元、切口分解產物)的比例,可能有助偵測妊娠相關疾病,因為只有完整 hCG 具完全活性。
- 產量調控:局部受釋放因子 GnRH 1、2 調控;神經傳導物質、環磷酸腺苷(cyclic adenosine monophosphate)、表皮生長因子(epidermal growth factor, EGF)、活化素(activin)、細胞激素、PG 及 hCG 本身也參與。這些因子都由胎盤及其他胚外組織製造。
- 與類固醇的回饋:hCG 刺激黃體素與雌激素生成;雌激素抑制 GnRH 對 hCG 的刺激,於胎盤內完成回饋軸。
人類絨毛膜體乳促素 Human Chorionic Somatomammotropin, hCS
- 原稱人類胎盤泌乳素(human placental lactogen),兼具生長激素樣與泌乳活性。
- 時序與結構:受孕 10 天內見於胚外組織,妊娠第 3–4 週見於母血。為 191 個胺基酸的非醣化單鏈,與生長激素(growth hormone, GH)同源 96%、與泌乳素(prolactin, PRL)同源 67%。
- 基因:第 17 對染色體基因簇,含兩個 hCS 基因、一個 hCS 偽基因與兩個 GH 基因。
- 反映胎盤量:SynT 全孕期以恆定速率製造,故 hCS 濃度反映胎盤總質量與粗略胎盤功能。足月達 1 g/day,占胎盤總蛋白質合成的 10%。
- 致糖尿病作用:與胎盤類固醇、胎盤生長激素變異體(hGH-V)及母體皮質醇,同列妊娠主要致糖尿病因子。
- 假說:hCS 幾乎只見於母體循環,因此推測其主要角色是確保胎兒營養。它在母體引起脂肪酸動員、胰島素阻抗、葡萄糖利用下降,並因母體減少使用蛋白質而增加胺基酸可得性,使母體循環葡萄糖與游離脂肪酸上升。
- 葡萄糖偏向胎兒:葡萄糖易通過胎盤,脂肪酸通過緩慢,因而使葡萄糖偏向送給胎兒,脂肪酸留作母體能量,禁食時尤然。
- 胎盤內與其他作用:可能調節 IGF-1,並直接作用於胎盤營養運輸系統以改變胎兒生長;泌乳活性可能與 PRL、類固醇協同,為乳房泌乳作準備;最近有人提出它可作為胎盤血管新生因子。
胎盤生長激素變異體 Placental Growth Hormone Variant, hGH-V
- 基因與形式:與 hCS、腦垂體 GH 同屬第 17 對染色體基因簇。hGH-V 基因產生兩種轉錄本:主要型與選擇性剪接型。分泌型 hGH-V 由主要型轉譯,以高生物活性的 22 kD 非醣化型為主,25 kD 醣化型較少。
- 與母體 GH 的交棒:妊娠早期製造母體腦垂體 GH;自 15–20 週至足月 hGH-V 分泌增加,並抑制母體 GH。
- 時序:足月分娩前約一個月達高峰,分娩後立即從母體循環消失;胎兒循環測不到。
- 功能:與 hCS 相似,調整母體代謝以滿足胎兒需要;主要似乎控制母體 IGF-1 製造。
- 胰島素阻抗:過度表現 hGH-V 的小鼠(囓齒類通常沒有)體重增加、IGF-1 上升並出現胰島素阻抗,暗示 hGH-V 大幅促成妊娠胰島素阻抗,並增加妊娠糖尿病及其他妊娠病理的風險。
- 平衡機制:胎盤泌乳素類的 hCS 與 PRL 誘發胰臟 β 細胞擴增、增加胰島素分泌,抵銷上述風險。
- 分泌調控:持續型(tonic)分泌,不同於脈衝式腦垂體 GH,也不受下視丘釋放因子調控。高血糖抑制分泌,低血糖輕度增加分泌,形成可能確保養分持續送達胎兒的回饋迴路。
類胰島素生長因子 Insulin-Like Growth Factors
- IGF1 與 IGF2 是妊娠期主要的促生長因子(somatotrophs),為高度同源的單鏈多肽,與胰島素原(pro-insulin)相似,於人類胎盤組織製造。
- 胰島素/IGF 系統多數成分都存在胎盤(IGF1、IGF2、IGF 結合蛋白〔IGFBP〕1–6),唯獨胰島素本身沒有;但母體胰島素對胎兒生長與健康有深遠的間接影響。
- hGH-V 濃度調節胎盤 IGF 濃度。IGFBP 是人類胎盤表現的載體蛋白,防止 IGF 被分解,同時阻斷其生物活性;IGFBP1 也由蛻膜大量製造。IGFBP 本身又受蛋白酶活性與轉譯後修飾調節,增添一層複雜性。
| IGF1 | IGF2 | |
|---|---|---|
| 胎盤表現位置 | 全孕期以 SynT 為主,部分 CTB | 僅 CTB,隨妊娠下降 |
| 受體 | 生理濃度下兩者都結合 IGF1R | |
| SynT 分化 | 可促進 | 雖在胎盤很早表現,但似乎沒有此功能 |
| 體內缺失的影響 | 對胎盤交換面積的影響較小 | 比缺 IGF1 更減少氣體與養分交換的胎盤面積 |
| 人類遺傳 | IGF1、IGF1R 突變極罕見 | 未有基因缺失報告;印記基因,正常僅由父系等位基因表現 |
- 受體定位轉移:IGF1R 初期主要在 SynT(較近母體循環),足月主要在胎兒側 CTB,反映活性由母體轉向胎兒的生長控制。
- IGF2R:又稱 cation-independent mannose-6-phosphate receptor,以胞吞並分解 IGF2 來控制細胞外濃度,而非直接傳遞訊號。另有一個受體,可能是胰島素受體變異型,或許媒介 IGF2 部分促胎兒生長作用。
- 證據來源:基因操作小鼠模型與人類組織(尤其胎兒生長受限妊娠)。
- 破壞小鼠 Igf1、Igf2 或 Igf1r 基因,延緩胎兒生長。
- 破壞 Igf2r 或過度表現 IGF2,增進胎兒生長。
- 印記疾病:IGF2 異常印記造成表現改變,與過度生長(Beckwith–Wiedemann syndrome)及生長遲滯(原文 Russel–Silver syndrome)都有關。
- 胎盤來源 IGF 與胎兒 IGF 何者直接造成這些生長變化尚不確定,因這些因子也在胎盤有旁分泌作用,決定營養運輸與胎盤生長。
- 體外實驗顯示胎盤質量由胎盤 IGF 直接調節。兩種 IGF 都增加營養運輸,尤其胺基酸,這可能反映在妊娠糖尿病相關的胎兒胺基酸升高。
- IGF 可能還透過其他機制改變胎兒生長:加強 EGF 活性、增加泌乳素與黃體素製造、抑制胎盤血栓素(thromboxane)製造。
其他分泌性生長因子 Other Secreted Growth Factors
- 囊胚表現的血小板衍生生長因子 A(platelet-derived growth factor A)、轉化生長因子(transforming growth factor, TGF)-α 與 TGF-β,似乎參與著床。
- EGF、basic FGF、神經生長因子(nerve growth factor)、顆粒球群落刺激因子(granulocyte colony-stimulating factor)、肝細胞生長因子(hepatocyte growth factor)及生長因子受體,則於較晚孕期由胎盤與胎膜表現。
- 許多生長因子的作用可能屬非典型自分泌。例如 SynT 製造 EGF,而 SynT 上的 EGF 受體與滋養層分化相關,而非增生。
- 其他生長因子對胎盤發育的作用仍在深入研究中。
抑制素與活化素 Inhibin and Activin
- 分別是腦垂體 FSH 的拮抗劑與促效劑,由 CTB 與胎膜表現;活化素受體表現於 SynT。
- 抑制素抑制 hCG、減少黃體素製造;活化素作用相反。
- 抑制素上升與胎兒 21 三體症相關;活化素上升與 PE 及妊娠糖尿病相關。因此這些激素可能作為胎盤病變的潛在生物標記。
前腦啡黑素皮質素激素 Proopiomelanocortin Hormones
- 人類胎盤含 POMC 衍生的類腦垂體胜肽,包括促腎上腺皮質激素(adrenocorticotropic hormone, ACTH)、黑色素細胞刺激素、β-endorphins、β-lipoproteins,以及全長 POMC。
- 處理方式不同:POMC 大多以完整形式從胎盤釋出;在非妊娠狀態則被切割為數種胜肽激素。
- 調控不同:腦垂體 POMC 衍生胜肽回應並調節生理壓力;胎盤 POMC 不受糖皮質素抑制,循環濃度與 ACTH 或皮質醇無關,但與促皮質素釋放激素(corticotrophin-releasing hormone, CRH)相關。
- 胎盤製造的絨毛膜 CRH 刺激絨毛膜 ACTH 釋放。後者生理角色未定,可能影響胎盤皮質醇製造,或母體對糖皮質素抑制 ACTH 的抵抗。
類下視丘激素 Hypothalamic-Like Hormones
每一種已知的下視丘釋放或抑制激素都有胎盤類似物,它們在胎盤旁分泌—自分泌調控網路中,控制胎盤內分泌激素的釋放。
促性腺激素釋放激素 Gonadotropin-Releasing Hormone, GnRH
- 絨毛膜 GnRH 調控胎盤旁分泌軸,對早期妊娠維持很重要,也透過刺激腦垂體 LH、FSH 調節性腺類固醇製造。
- GnRH1:編碼於第 8 對染色體,為前驅蛋白,含訊號序列、GnRH 十肽、處理序列與 GnRH 相關胜肽。
- GnRH2:編碼於第 20 對染色體,與 GnRH1 有 70% 同源。
- 兩者透過表現於 SynT 的同一 G 蛋白偶聯受體 GnRHR1 傳訊,但可能活化不同細胞內路徑。
- 阻斷 GnRH 或 GnRHR1 活性可導致妊娠失敗,可能是改變了受其調節製造與釋放的 hCG 及胎盤類固醇。
- 胎盤 GnRH1 釋放受環磷酸腺苷、PG、腎上腺素與抑制素影響;GnRHR1 表現受 GnRH1、活化素與抑制素調節,形成回饋迴路。
促皮質素釋放激素與尿皮質素 Corticotrophin-Releasing Hormone and Urocortins
- 絨毛膜 CRH 與 CRH 受體表現於胎盤與胎膜。CRH 激素家族的尿皮質素(urocortins)也由此製造,同樣結合 CRH 受體。
- 時序:妊娠早期 CRH 家族可能促進免疫耐受;之後 CRH 與尿皮質素濃度上升,於足月分娩時達高峰。
- 與分娩的關聯:這些激素刺激 POMC 衍生激素(包括 ACTH 與 β-endorphins)及 PG 釋放,暗示參與分娩。CRH 也能刺激胎兒腎上腺製造雌激素與糖皮質素,可能影響分娩時機。
- 正回饋:糖皮質素可增加胎盤 CRH 表現,與其抑制下視丘 CRH 相反,形成放大 CRH 活性的正回饋。
- 胎盤時鐘(placental clock):CRH 與分娩時機關係緊密,常被視為胎盤時鐘,也可能是妊娠病理的生物標記。合併高血壓的妊娠,母體循環 CRH 在 28 週已上升,局部尿皮質素則可能下降。
- CRH 曾被提出作為早產預測因子,但尚未證實有明顯臨床效用。
促甲狀腺素釋放激素 Thyrotropin-Releasing Hormone
- 絨毛膜 TRH 由胎盤與胎膜製造,但對母體或胎兒的明確角色尚未確立。
- 腦垂體 TSH 不通過胎盤,胎盤也不製造甲狀腺素;但母體 T4 與三碘甲狀腺素(triiodothyronine, T3)可由胎盤製造的 transthyretin 攜帶通過胎盤。
- 甲狀腺疾病常見於育齡婦女並影響妊娠結局,胎盤在甲狀腺代謝的角色近來備受關注。
- 早期母體甲狀腺低下似與子代智商較低相關;至於胎兒甲狀腺功能於妊娠中期啟動後,母體甲狀腺低下的影響,報告互相矛盾。
- 第二、三孕期母體 T4 持續進入胎兒循環:即使胎兒完全甲狀腺發育不全(thyroid dysgenesis),臍帶血 T4 仍有正常的 30%–50%。
- 胎盤對甲狀腺素運輸與代謝的調節可能對胎兒健康極為重要,但調控路徑尚待釐清。
生長激素釋放激素、體抑素與飢餓素 GHRH, Somatostatin, and Ghrelin
- CTB 還製造生長激素釋放激素(growth hormone-releasing hormone)、體抑素(somatostatin)與飢餓素(ghrelin),可能調節 hGH-V 製造與胎盤分化。
瘦素 Leptin
- 瘦素通常由脂肪細胞分泌,經下視丘作用減少進食;但妊娠期胎盤是主要來源。
- 其在胎盤、母體或胎兒的確切角色未明,可能與非妊娠狀態大不相同,因妊娠期瘦素濃度與體重質量無關,也不產生飽足感。
- PE 與妊娠糖尿病時瘦素濃度上升。
催產素 Oxytocin
- OT 也由胎盤與胎膜製造,是強效子宮收縮激素,臨床用於引產或加速產程。
- 然而,產程前母體循環 OT 與局部 OT 似乎都沒有明顯上升;真正增加的是子宮對 OT 的反應,靠 OT 受體(OT receptor, OTR)表現與功能增加。
- 妊娠期黃體素抑制 OTR 訊號;足月時黃體素活性下降(人類的絕對濃度並未下降),使 OTR 表現上升,子宮對 OT 更敏感。
其他胎盤分泌因子 Additional Placental Secreted Factors
血管活性胜肽 Vasoactive Peptides
- 胎盤內有血管張力素—腎素系統(angiotensin–renin system),一般認為參與胎盤床血管張力調節。
- 胎盤表現多種血管活性胜肽及其受體:VEGF、內皮素(endothelin)、血管張力素、精胺酸血管加壓素(arginine vasopressin)、心房利鈉胜肽(atrial natriuretic peptide)。
- 適當的胎兒胎盤灌流,很可能需要這些因子平衡。例如心房利鈉胜肽抑制內皮素與血管張力素的收縮作用,並誘發子宮與胎盤血管擴張。
內源性類鴉片胜肽 Endogenous Opioid Peptides
- 腦啡肽(enkephalins)、強啡肽(dynorphin)及其受體表現於胎盤,足月時胎盤受體增加。
細胞激素 Cytokines
- 干擾素、腫瘤壞死因子 α(tumor necrosis factor-α, TNF-α)、白血病抑制因子(leukemia inhibitory factor)、介白素及其受體,由胎盤、子宮內皮細胞與侵入的巨噬細胞製造。
- 隨妊娠階段轉換:成功著床需要促發炎環境;維持妊娠需要抑制母體免疫反應的細胞激素表現;分娩前平衡再度轉回促發炎。
- 促發炎與抗發炎因子的平衡,可能是子宮內感染或其他發炎引發早產的關鍵誘因。
- 細胞激素也調節滋養層與胎盤血管功能,途徑是調節其他細胞激素、生長因子、激素與前列腺素類(prostanoid)製造。
類二十碳酸 Eicosanoids
- 血栓素(thromboxanes, TXAs)、PG 與白三烯(leukotrienes)是胎盤表現的發炎介質,源自花生四烯酸(arachidonic acid)。
- 足月人類胎盤主要把花生四烯酸轉為 TXA 與 PGE2、PGF2α、PGD2。
- 與細胞激素相似,它們參與滋養層著床與分娩;著床後,尤其前列環素(prostacyclin, PGI2)與 PGE2,似乎是胎兒—胎盤單位的血管調節因子。
- PGI2:胎盤血管的強效擴張劑、血小板凝集抑制劑與子宮鬆弛因子;其喪失被認為與 PE 有關。
- TXA2:與 PGI2 作用相反,PE 時製造增加。低劑量阿斯匹靈(low-dose aspirin)優先抑制胎盤 TXA,可能減少 PE 發生。
免疫功能 Immunologic Function
介面上的免疫平衡
- 整個妊娠期都要在胎兒感染風險與胎兒遭排斥之間取得平衡,母、胎兩側都參與。
- 胎盤介面細胞的獨特性,讓遺傳上不同的胎兒「移植物」得以寄居母體。滋養層直接接觸母體免疫細胞:覆蓋絨毛的 SynT 浸泡在母血中,侵入型滋養層則暴露於母體蛻膜。
- 這些部位似乎用不同策略避免遭細胞毒性免疫細胞破壞:
- SynT 與侵入型滋養層都不表現典型人類白血球抗原(human leukocyte antigen, HLA)-A、HLA-B(class Ia)及 HLA class II 抗原。
- 侵入型滋養層表現非典型 HLA-G 與 HLA-C,這些 HLA 能抑制免疫反應,尤其透過子宮自然殺手(natural killer, NK)細胞與巨噬細胞上的白血球抑制性受體。
- 需要先天免疫與適應性免疫調節兩者平衡,且此平衡隨妊娠改變。
子宮 NK 細胞
- 原文稱蛻膜富含先天免疫細胞,包括 T 細胞、調節性 T 細胞、巨噬細胞、樹突細胞與子宮 NK(uNK)細胞,其中研究最多的是 NK。
- NK 細胞在早孕子宮達高峰,是最大的白血球族群,占總淋巴球 60%–70%,比例隨妊娠下降。
- 它們雖富含細胞毒性穿孔素(perforin)、顆粒酶 A、B 及自然細胞毒性受體(NKp30、NKp44、NKp46、NKG2D、NGK2B4、LFA-1),在母胎介面卻是具耐受性、會產生細胞激素的細胞。
- 與血管重塑:第一孕期它們於螺旋動脈周圍的時序分布與定時擴增,暗示參與重塑。缺 NK 細胞的小鼠有蛻膜動脈重塑與滋養層侵入異常,可能因缺少 uNK 來源的干擾素 γ。
- 與血管新生:其他研究顯示 uNK 是胎盤床 VEGF-C、angiopoietin 1 和 2、TGF-β1 的主要來源,且隨孕週下降。這些觀察指向 uNK 促進血管新生。近期研究提示 VEGF-C 也可能誘導母體免疫細胞的非細胞毒性活性。
- 滋養層上其他分子,如改變淋巴球活性的 B7 家族成員,及與白血球 Fas 受體作用的 FasL,也可能調節胎盤內的細胞毒性。
巨噬細胞
- 胎盤同時有母體巨噬細胞與 Hofbauer 細胞(絨毛內源自胎兒的巨噬細胞)。它們可能預防子宮感染,或促進血管重塑與免疫抑制。
- 與 NK 族群相似,母、胎巨噬細胞活化的改變,都與 IUGR、早產、PE 等併發症相關。
T 細胞與調節性 T 細胞
- 對胎兒異體抗原的耐受,最初在小鼠以 Th1/Th2 平衡探討,提出正常妊娠 Th2 細胞與細胞激素優於 Th1 細胞免疫。
- 人類妊娠中,調節性 T 細胞(regulatory T cells, Tregs)的耐受作用逐漸受到重視。Tregs 強力抑制 T 細胞媒介的發炎反應,防止自體免疫與同種移植排斥。
- CD4+CD25+ Tregs 全孕期都存在於蛻膜。胎兒特異性 Tregs 可在兩次妊娠間存留,並於下一胎快速累積再擴增,可能提供對胎兒抗原的持久保護性調節記憶。
- 這些 Tregs 在人類流產中的具體角色仍待界定。
免疫抑制調節因子與 IL-10
- 胎盤介面高度表現免疫抑制調節因子;前述許多內分泌因子(黃體素、PGE2、介白素)對母體免疫調節似乎很關鍵。
- 介白素(interleukin, IL)-10:抗發炎細胞激素,由人類滋養層與 Tregs 表現,在前兩個孕期上升,分娩前下降。低 IL-10 表現與流產、早產及 PE 相關,但其保護胎兒的機轉所知甚少。
- IL-10 剔除(IL-10 –/–)小鼠在無病原環境下可生育,但極易受感染併發症影響。這暗示 IL-10 缺乏加上「第二擊」(感染、環境因素或激素失調)可能促成不良妊娠結局。
不是全身性免疫抑制
- 孕婦沒有全面性免疫抑制,而是在特定類型的免疫抑制與活化之間取得平衡。事實上,孕婦的細胞激素製造能力高於非孕婦。
- 決定結局的可能是促發炎與抗發炎細胞激素的平衡:平衡在早期改變可能影響著床;晚期的免疫改變可能增加早產易感性,尤其面對免疫挑戰時。
- 胎兒免疫反應在正常妊娠中由耐受轉為活化的類似變化,也正在研究中。
- 胎盤免疫活化在新生兒不良結局(尤其神經併發症)中的角色,是近十年的活躍研究領域。界定並操控胎盤免疫反應,是改善妊娠結局工作的關鍵。
本章尚未整理的部分 Not Yet Covered
此章為未完成版
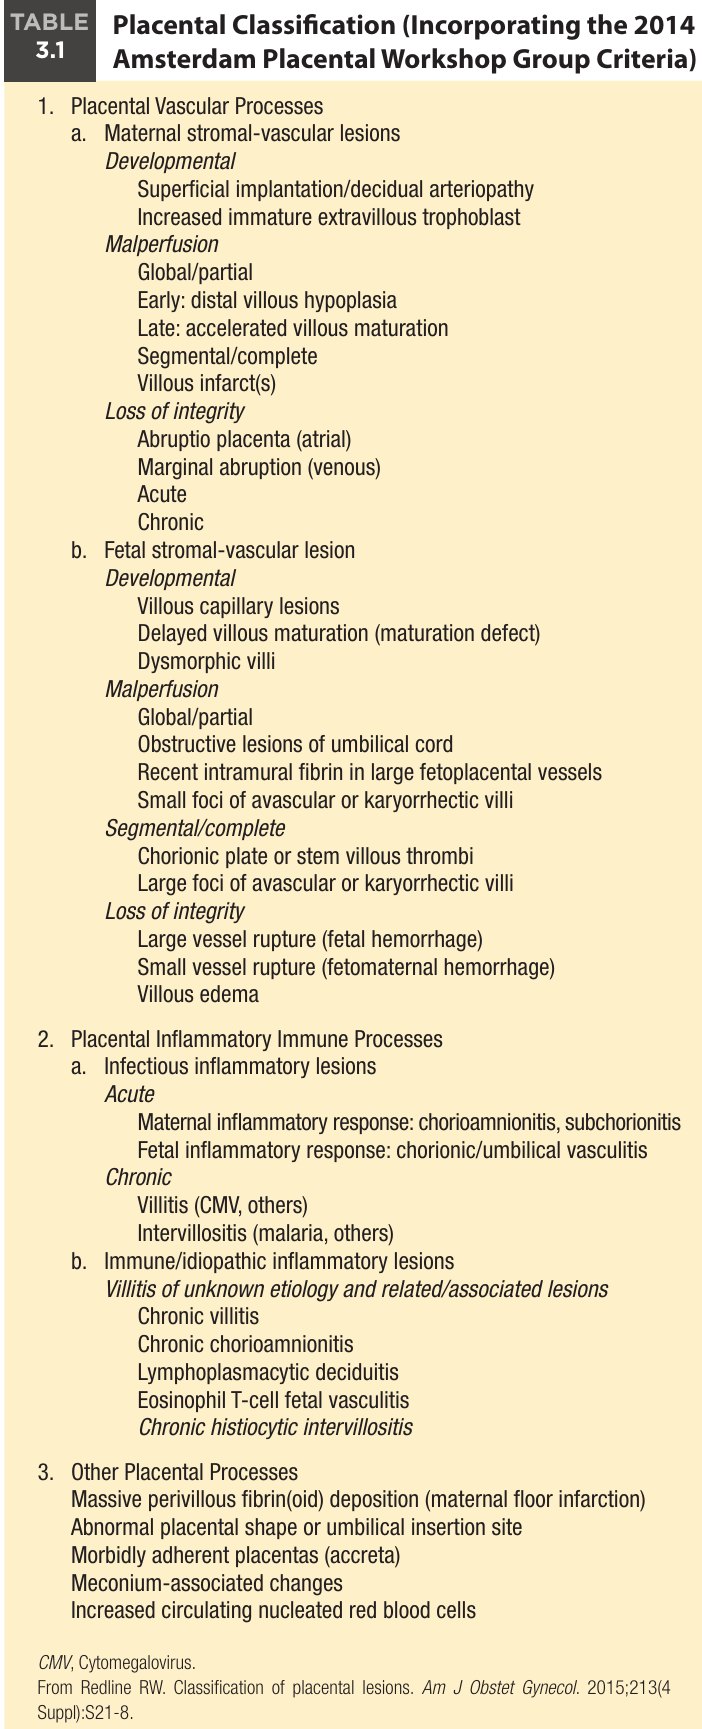
以下原文章節尚未整理,請直接閱讀 PDF:Regulation of Placental Function、Evaluation of Placental Dysfunction、Placental Imaging、Serum Biomarkers of Placental Disease、Serum Analytes、Extracellular Vesicles、Summary。相關原書圖表先列於下方,尚未加上中文摘要。
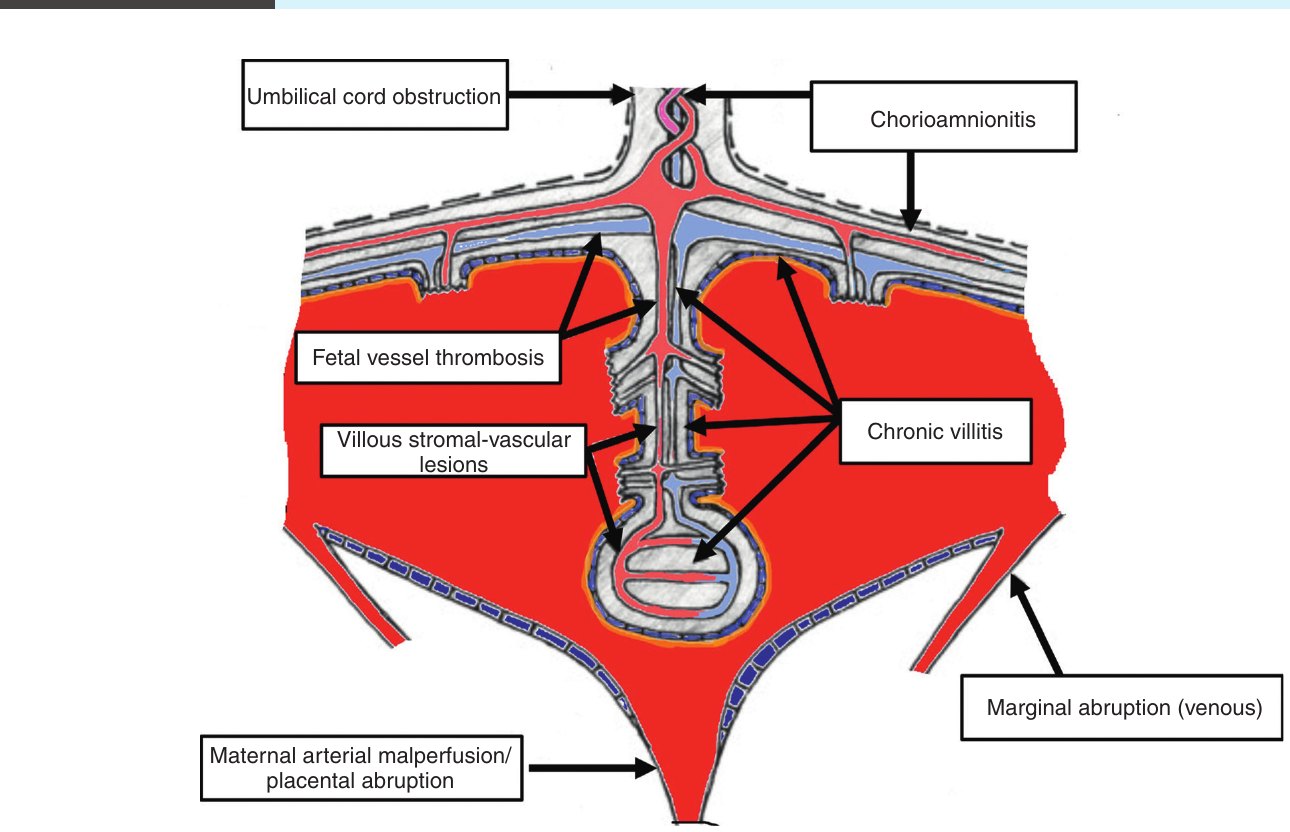
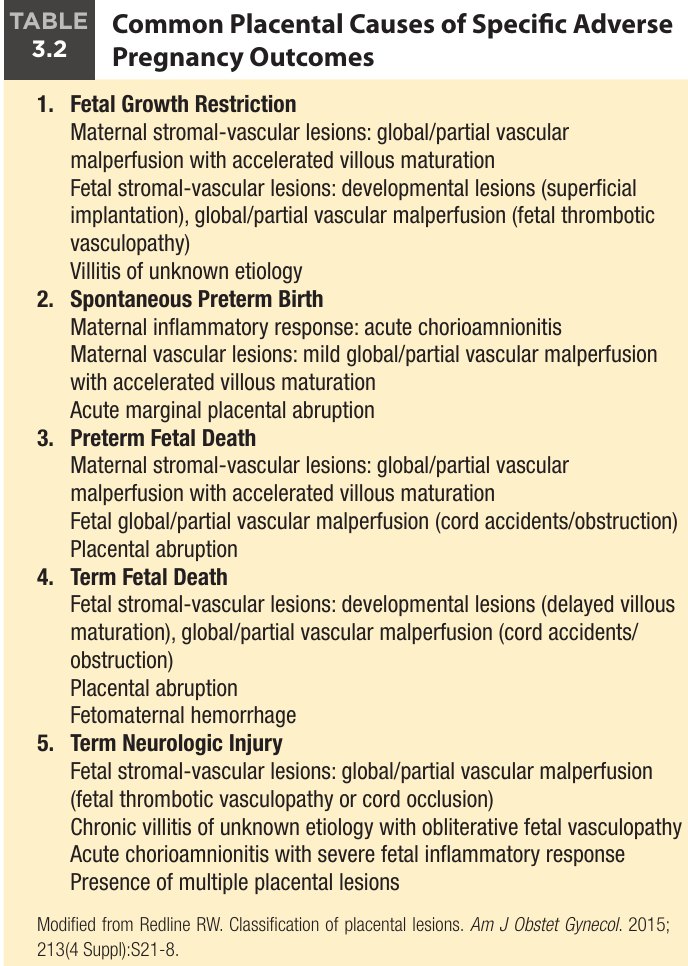
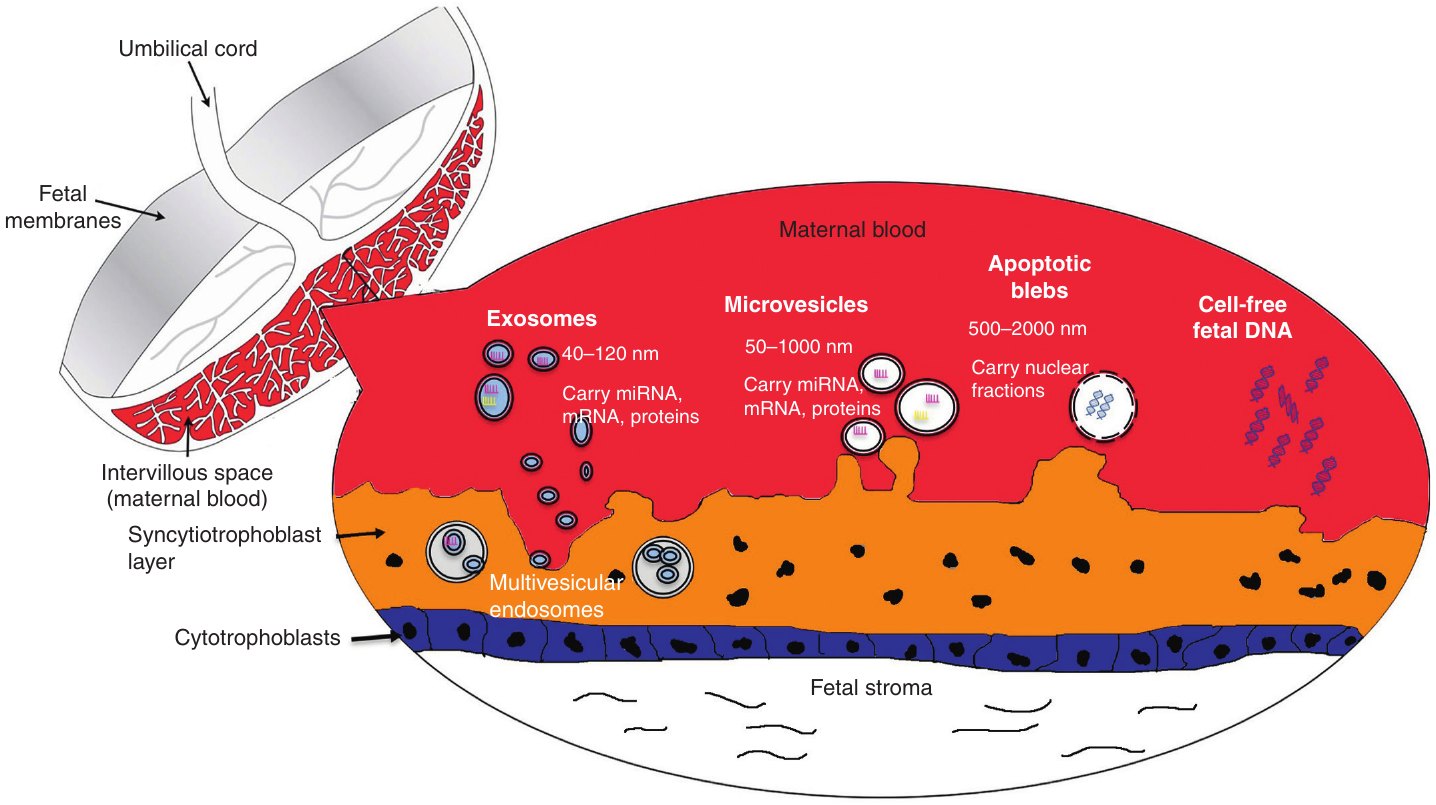
閱讀時請留意 Points to Verify
原文內部不一致
- 內文討論激素類別時引用 Table 3.1,但該表是胎盤病灶分類。
- 內文說 Fig. 3.3 是類固醇合成圖,實際上是基底板圖。
- Table 3.1 的 Abruptio placenta 標 atrial,Fig. 3.4 為 arterial,疑似誤植。
- Table 3.2 將表淺著床列為胎側病灶,Table 3.1 列為母側。
- 內文寫母體肝臟 5α-hydroxylation,前文路徑為 15α,疑似誤植。
- 內文稱「前述的 H19 miRNA」,但前文未提及。
- PPAP-A 與 PAPP-A 拼法不一;hCG 段寫 intravillous space,其他處為 intervillous。
- EVT 同時用來指 endovascular 與 extravillous trophoblast。