PART XII · NEUROLOGIC SYSTEM · CHAPTER 52
中樞神經系統發育Central Nervous System Development
本章重點 Key Points
- 早產兒與足月兒的腦仍在活躍發育;妊娠第三期(third trimester)有多個關鍵步驟進行中:神經元遷移收尾、計畫性細胞死亡(programmed cell death)、軸突與樹突生成,以及第一波突觸生成(synaptogenesis)。
- 這些過程由基因程式控制,但對環境因子也非常敏感。
- 表觀遺傳機制(epigenetic mechanisms)看來在其中扮演核心角色,其後果可能是長期的,甚至可能跨世代(trans-generational)。
神經元的產生與遷移 Neuronal Production and Migration
腦發育總覽 Overview of Brain Development
- 腦發育是不同個體發生階段(ontogenic stages)中,一連串基因程式依序完成的結果。
- 起點與終點:受孕後第 3 週初,神經板(neural plate)個體化;到青春期(adolescence)大致完成。
- 例外:部分神經元生成持續終生。這種晚期神經新生(late neurogenesis)在嗅球(olfactory bulbs)與海馬齒狀迴(dentate gyrus)已有充分描述;對聯合新皮質(associative neocortex)的重要性則仍有待證實。
腦發育的主要階段
- 神經外胚層誘導(induction of the neuroectoderm)
- 神經管形成,接著形成端腦(telencephalon)
- 神經新生(neurogenesis):先產生神經元前驅細胞,再產生成熟神經元
- 神經元遷移(neuronal migration)
- 計畫性神經元死亡(programmed neuronal death)
- 神經突(neurites,即軸突與樹突)生成
- 多餘神經突的清除
- 突觸生成(synaptogenesis)
- 突觸的清除與選擇性穩定
- 血管新生(angiogenesis)
- 膠質新生(gliogenesis):產生星狀膠質細胞與寡樹突膠質細胞
- 髓鞘化(myelination)
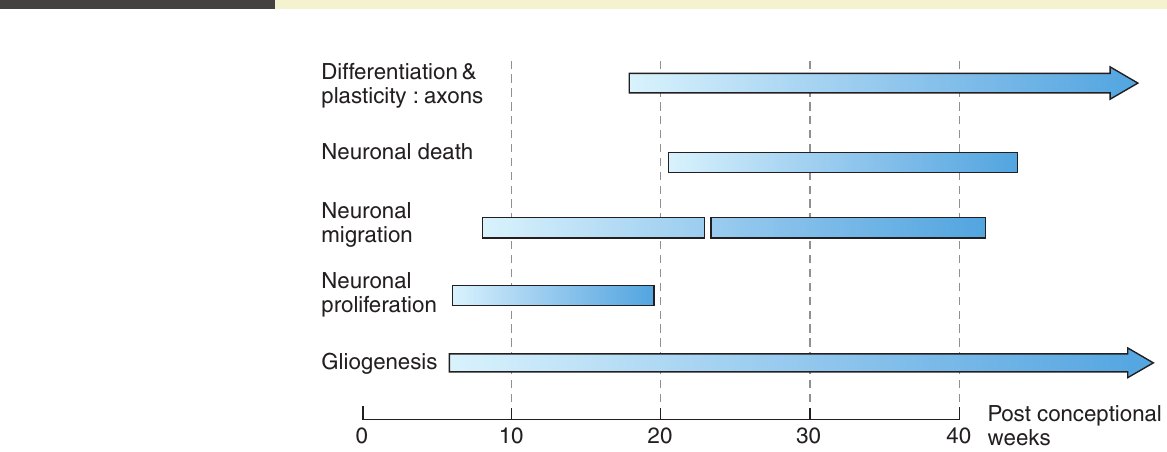
調控原則與關鍵期
- 各階段由內在因子(基因決定)控制,並受外在環境因子調節;這種環境調節可能動用表觀遺傳機制。
- 任一階段的進行受擾,都會導致腦部生長不足和/或腦部畸形。
- 對孩童的功能性後果,取決於受影響的發育階段。
關鍵期(critical period)生物一生中的某個成熟階段,此時神經系統對特定環境刺激特別敏感。本章各節都會回到這個概念。
皮質擴展與增生區 Cortical Expansion and Proliferative Zones
- 皮質擴展以兩個平行過程進行:側向擴展(lateral expansion)使皮質表面積增加;放射狀擴展(radial expansion)使皮質厚度增加。
- 成熟人腦的神經元總數估計介於 3 至 100 billion。
| 增生區 | 出現時間 | 特徵 |
|---|---|---|
| 腦室區 Ventricular zone, VZ | 皮質最初由此產生 | 放射狀排列的增生性神經上皮細胞單層,襯於側腦室壁 |
| 內側腦室下區 Inner subventricular zone, inner SVZ | 約妊娠第 7 週 | 源自 VZ 的前驅細胞;細胞不呈放射狀構形 |
| 外側腦室下區 Outer SVZ | 人類約妊娠第 11 週 | 較近期才被辨識;在人類呈現延長的增生 |
- 有假說認為,神經元前驅細胞行為的這項差異,可以解釋演化上新皮質表面驚人的擴展與摺疊。
神經元的來源 Origins of Cortical Neurons
- 興奮性(麩胺酸性,glutamatergic)神經元:來自側腦室背側的上述增生區,構成皮質各層(哺乳類皮質共 6 層)。
- 抑制性神經元(GABA 性中間神經元,GABAergic interneurons):
- 一部分可能也來自同樣的背側增生區;此點仍有爭議,且似乎依物種與細胞亞型而異。
- 其餘來自側腦室外側壁的神經節隆起(ganglionic eminence),此處也是視丘神經元的來源。
- 另一來源位於視前區(preoptic area)。
- 遷移中的神經元可採放射狀路徑,貼著專門的膠質細胞,即放射狀膠質細胞(radial glia)前進,由其引導。
皮質板與分層:由內而外 Layer Formation—The Inside-Out Gradient
神經元離開有絲分裂週期後,從增生區遷往未來的皮質。
- 第一波遷移形成原始皮質板,又稱前板(preplate)。
- 第二波遷移(約妊娠第 7 週)把前板一分為二,形成三層結構:第 I 層(含 Cajal-Retzius 神經元,位於腦膜正下方)、第 VI 層(含已完成遷移的神經元),以及皮質下板(subplate),後者是位於未來新皮質下方的暫時性結構。
- 後續連續波次穿過皮質下板與已就位的皮質層,停在第 I 層下方,依序形成第 V、VI、III、II 層(原文寫法,見章末「閱讀時請留意」),這就是「由內而外」(inside-out)梯度。
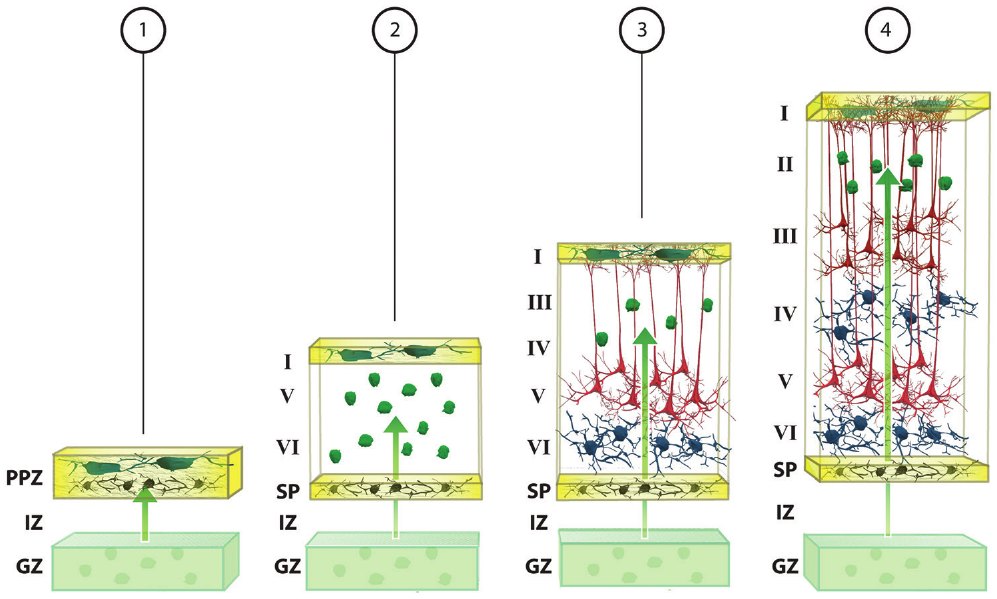
遷移何時結束?過去認為神經元遷移至新皮質約在妊娠第 24 週完成。近期研究則提示,GABA 性中間神經元幾乎到足月前都持續加入新皮質。在早產腦病變(encephalopathy of prematurity)的動物模型與早產兒死後組織中,已證實某些皮質中間神經元亞類數量稀疏化(rarefaction)。
控制神經元遷移的分子 Molecules Controlling Neuronal Migration
已辨識出多種控制遷移與導航至正確目的地的分子,可概略分為四類。
| 類別/功能 | 分子 | 分子性質 | 相關人類疾病 |
|---|---|---|---|
| 1. 細胞骨架:啟動移動 | Filamin-A | 肌動蛋白結合蛋白(actin-binding protein) | 腦室周圍結節性異位(periventricular nodular heterotopias) |
| Arfgef2 | 參與囊泡運輸(vesicular trafficking) | 腦室周圍結節性異位合併小頭症(microcephaly) | |
| 1. 細胞骨架:推進移動 | Doublecortin | 微管相關蛋白(MAP) | 雙皮質症候群(double cortex syndrome) |
| Lis1 | MAP | 第 1 型無腦回(type 1 lissencephaly)、Miller Dieker 症候群 | |
| Alpha-1 Tubulin | 參與微管蛋白異二聚體(tubulin heterodimers)形成 | 原文未列 | |
| 2. 訊號分子:分層 | Reelin | 醣蛋白(glycoprotein) | 無腦回合併小腦發育不全(cerebellar hypoplasia) |
| 3. 糖基化調節:停止訊號 | POMPT1 | protein O-mannosyltransferase | Walker-Warburg 症候群 |
| POMGnT1 | protein O-mannose beta-1,2-N-acetylglucosaminyltransferase | 肌肉-眼-腦病(muscle-eye-brain disease) | |
| Fukutin | 糖基轉移酶(glycosyltransferase) | 福山先天性肌肉失養症(Fukuyama congenital muscular dystrophy) |
- 細胞骨架分子的作用是啟動與推進神經元移動,涉及頂端突起延伸(extension of the apical process)與核移動(nucleokinesis)。
- 糖基化相關的三種疾病(Walker-Warburg、肌肉-眼-腦病、福山型)都表現為第 2 型無腦回(type 2 lissencephaly)。
- 第 4 類:其他調節因子,包括:
- 某些神經傳導物質:麩胺酸(glutamate)與 GABA
- 過氧化體代謝(peroxisomal metabolism)衍生的分子
- 某些環境因子:發炎、乙醇、古柯鹼
計畫性神經元死亡 Programmed Neuronal Death
規模與時間 Extent and Timing
- 視腦區而定,最初產生的神經元中有 15% 至 50% 會經由生理性過程死亡,此過程稱為計畫性細胞死亡或細胞凋亡(apoptosis)。
- 消失的神經元中約 70% 似乎死於人類妊娠第 28 至 41 週之間。
機轉 Mechanisms
- 計畫性細胞死亡是複雜機制,由下列項目間的平衡所支配:誘導死亡與誘導存活的訊號、參與死亡或存活的基因程式、死亡效應分子,以及這些效應分子的抑制物。
- 清除:已啟動程序的細胞,最終由鄰近的膠質細胞(微膠質細胞,microglia)吞噬,不引發發炎,也不形成疤痕。
- 「吃我」訊號("eat me signals"):凋亡細胞膜組成改變,在凋亡過程很早期就發生,被微膠質細胞感知,促進上述吞噬。
- 關鍵步驟:蛋白水解酶凱斯蛋白酶(caspases)以級聯(cascade)形式活化,最終造成 DNA 斷裂與神經元死亡。
- 吞噬性死亡(phagoptosis):另有報告指出,健康神經元與微膠質細胞的直接互動,可啟動細胞死亡程序,甚至使活細胞被吞入,再由微膠質細胞「消化」。
電活動與神經元存活 Electrical Activity and Survival
電活動看來是神經元存活的關鍵因素。在囓齒類腦部生長高峰期,給予阻斷電活動的物質,會使多個腦區的發育性神經元死亡嚴重惡化。
| 類別 | 物質 |
|---|---|
| NMDA 受體抑制劑 | MK-801、ketamine |
| GABA-A 受體作用劑(agonists),如抗癲癇藥 | phenytoin、phenobarbital、diazepam、clonazepam、vigabatrin、valproic acid |
| 麻醉藥(併用組合) | midazolam、nitric oxide、isoflurane |
中樞神經系統的組織 Organization of the Central Nervous System
皮質下板神經元 Subplate Neurons
時間與位置
- 皮質下板神經元構成腦發育期間的暫時性結構。
- 約妊娠第 7 週產生;皮質下板本身約在妊娠第 10 週出現。
- 位於新皮質板下方,厚度在妊娠第 22 至 36 週達最大。
功能
- 表現多種神經傳導物質、神經胜肽(neuropeptides)與生長因子;接受突觸,並與皮質及皮質下結構形成連結。
- 發育期間的三項重要角色:
- 發出投射至內囊(internal capsule)的軸突,作為第 V、VI 層神經元的導引。
- 妊娠第 25 至 32 週間,產生胼胝體(corpus callosum)的軸突。
- 作為視丘皮質軸突(thalamocortical axons)的「等待區」(waiting zone):這些軸突在此與皮質下板神經元建立突觸(原文以問號標示可能為暫時性),之後才侵入新皮質板抵達第 IV 層。此等待區是視丘皮質傳入纖維正確定位所必需。
與早產腦傷的關聯
- 有腦室周圍白質病灶的早產兒,皮質下板神經元可能遭破壞;腦室周圍白質損傷動物模型已證實此發現。
- 皮質下板受損可能參與早產兒 MRI 所見的視丘皮質連結異常,以及相關的認知和/或運動障礙。
軸突與樹突生長 Axonal and Dendritic Growth
- 成熟神經元的最終形態與神經元間連結的形成,取決於複雜的樹突-軸突細胞互動。
- 成熟中的神經元依內在與外在線索重組細胞骨架,使軸突與樹突延伸。
- 外在線索許多是分泌性的化學吸引或化學排斥因子,以及目標神經元上促進突觸形成的黏附分子。
- 這些配體與受體的交互作用,改變生長錐(growth cone)/樹突尖端的鈣濃度,而鈣在運動性與方向性上具關鍵作用。
- 時間:此階段大部分(但非全部)發生於妊娠後半期,並延續到出生後。
皮質投射的形成順序
- 早期皮質脊髓投射(corticospinal projections)先來自皮質下板,再來自深層皮質(第 V、VI 層)神經元。皮質視丘投射(corticothalamic projections)也出現,同樣來自皮質下板與深層皮質。
- 較晚皮質皮質投射(corticocortical projections)出現。
- 多種轉錄因子(如 Ctip2、Satb2、Fezf2)調控皮質的連合(commissural)、皮質視丘與皮質脊髓投射。
- 樹突分枝(dendritic arborization):各神經元亞型進度略有差異,但典型的早期分枝一般在妊娠第三期建立。
- 基因程式控制軸突與樹突生長的分子機制,並決定連結的初始模式;之後由經驗與環境透過腦部可塑性雕塑此整體模式,產生最終連結。
- 皮質擴展的底層過程尚未完全了解;但除神經元產生外,近期進展也加強了其與神經突密度差異之間的關聯。
突觸生成 Synaptogenesis
猴的枕葉新皮質已描述五個連續的突觸生成波。依據人類枕葉皮質資料,對人類皮質提出如下時序。
| 階段 | 時間 | 特徵 | 與感覺輸入的關係(實驗) |
|---|---|---|---|
| 1 | 始於妊娠第 6 至 8 週 | 僅限深層,如皮質下板 | 不受感覺剝奪影響 |
| 2 | 始於妊娠第 12 至 17 週 | 皮質中產生的突觸相對少 | 不受感覺剝奪影響 |
| 3 | 約始於妊娠中期,約至出生後第 8 個月結束 | 新突觸產生速率在猴估計約每秒 40,000 個 | 部分依賴感覺輸入 |
| 4 | 延伸至青春期(puberty) | 突觸形成速率同樣高 | 強烈受感覺刺激與經驗控制 |
| 5 | 延伸至成年 | 因隨年齡大量失去突觸而多少被掩蓋 | 原文未述 |
突觸穩定化 Synaptic Stabilization
- 此概念(藉清除未穩定的突觸達成)由 Changeux 與 Edelman 首先提出。
- 過度產生:發育過程中,不穩定(labile)突觸分階段系統性地過量產生,以相當隨機的方式形成冗餘連結;此階段主要受基因因子控制。
- 穩定與清除:每一波過度產生後,具功能價值的突觸被穩定,冗餘或無用者由膠質細胞清除;此階段強烈受環境刺激與經驗影響。
- 演化意義:在此模型中,參與突觸生成的基因數量在演化中適度增加,提供更豐富的基質,讓環境與經驗作用其上,產生更複雜的網路。
膠質細胞的增生、分化與髓鞘化 Glial Proliferation, Differentiation, and Myelination
星狀膠質細胞 Astrocytes
來源
- 放射狀膠質細胞轉化:放射狀膠質細胞既是神經幹細胞,也引導遷移中的神經元;神經元遷移結束時轉化為星狀膠質細胞,居於深層皮質與白質。
- SVZ 膠質前驅細胞:淺層皮質的星狀膠質細胞主要來自在 SVZ 增殖後遷入皮質的膠質前驅細胞。
時間
- 人類新皮質中,星狀膠質細胞增生約始於妊娠第 24 週,高峰約在第 26 至 28 週。
- 產生結束的確切時間不明,但可推測大部分在正常妊娠結束時已完成。
- 第 26 至 28 週的高峰對早產兒可能特別重要。
功能
- 軸突導引、刺激神經元生長、突觸形成
- 在血管與神經元之間轉運代謝物
- 建立某些腦部結構的模式
- 製造細胞外基質成分與營養因子(trophic factors)
- 神經元存活、髓鞘化、維持血腦屏障(blood-brain barrier)
- 實驗例證:暫時阻斷囓齒類新皮質星狀膠質細胞的產生,會增加神經元計畫性細胞死亡,並造成新皮質突觸配備的長期改變。
- 表現型:近期研究顯示,星狀膠質細胞可依所處的生理或病理狀況取得不同表現型,對鄰近細胞可有益,也可有毒。
寡樹突膠質細胞與髓鞘化 Oligodendrocytes and Myelination
| 階段 | 形態與增生能力 | 時間與位置/功能 |
|---|---|---|
| 1. 寡樹突膠質前驅細胞 Oligodendrocyte precursors | 雙極、有絲分裂活躍 | 來自 SVZ;遷入未來白質途中分化為前寡樹突膠質細胞 |
| 2. 前寡樹突膠質細胞 Preoligodendrocytes | 多極、保留增生能力 | 妊娠後半期在腦室周圍白質占優勢 |
| 3. 未成熟寡樹突膠質細胞 Immature oligodendrocytes | 多極 | 妊娠第三期出現;包繞軸突,為髓鞘化作準備 |
| 4. 成熟寡樹突膠質細胞 Mature oligodendrocytes | 極度多極 | 形成髓鞘 |
早產兒的易損性
- 前驅細胞與前寡樹突膠質細胞是早產兒腦中的主要類型,對發炎介質(包括氧化壓力)、興奮毒性級聯(excitotoxic cascade)與缺氧缺血傷害極度脆弱。
- 前寡樹突膠質細胞死亡被認為與囊性腦室周圍白質軟化(cystic periventricular leukomalacia)有關。
- 這類嚴重病灶的發生率逐漸下降,被較瀰漫性的病灶取代。
- 早產兒瀰漫性白質病灶的主要現象是寡樹突膠質細胞成熟受阻,其中缺氧誘導因子(hypoxia inducible factor, HIF)與 Wnt 路徑扮演一定角色。
髓鞘化時序
- 髓鞘化歷時長,持續到兒童期;時序與程度依腦部結構而異。
- 妊娠第 7 個月前,前腦(prosencephalon)偵測不到髓鞘化。
- 端腦髓鞘化在妊娠第三期與出生後最旺盛,到 2 至 3 歲大致完成。
- 最先:嗅覺與聽覺路徑、感覺運動皮質。最後:投射與聯合路徑(尤其前額葉皮質)。
多樹突膠質細胞 Polydendrocytes (NG2 Glia)
- 前寡樹突膠質細胞目前無法與另一膠質族群,即多樹突膠質細胞(NG2 膠質)區分。
- 這些細胞具增生性、譜系可塑性與運動性,可產生寡樹突膠質細胞,但也在損傷反應中扮演獨立角色,並與神經元形成單向突觸。
- 因目前缺乏專一研究工具,對其功能所知甚少;原文認為這應列為理解腦發育與健康的研究優先項目。
微膠質細胞 Microglia
來源與成熟
- 占腦細胞總數的 5% 至 15%。
- 來自卵黃囊(yolk sac)的胚胎骨髓系前驅細胞庫,浸潤發育中的腦,與組織駐留巨噬細胞不同。
- 有明確的成熟階段,可自我更新,在人腦中可存活達 4 年。
- 妊娠第一期呈變形蟲樣(amoeboid)形態,逐漸演變為中間型,再到成熟表現型(細胞體小、突起長)。
- 約妊娠中期,主要見於白質纖維束:內囊、外囊、胼胝體與軸突束交會處。
- 實驗資料支持以下假說:這些微膠質細胞在早產兒發育中白質徑路損傷的起源上扮演重要角色。
發育中的功能
- 調控突觸與神經突修剪,進而影響連結性。
- 調控計畫性細胞死亡,包括皮質層的形成。
- 啟動寡樹突膠質細胞成熟,影響髓鞘產生。
- 與星狀膠質細胞相同,可因損傷或傷害取得不同表現型;依腦區與病理狀況,可能直接有害,也可能嘗試修復腦部。
「雙重危險」(double jeopardy)微膠質細胞一方面可經發炎反應直接傷害腦部,另一方面因被發炎活化「分心」而無法參與建構腦部。這對早產兒特別相關:常見的全身性發炎會擴散至腦,使微膠質細胞免疫活化。這是許多曾為極早產兒者日後出現認知與行為缺損的重要因素。
環境與表觀遺傳 The Environment and Epigenetics
環境對腦發育的影響 Environmental Influences on Brain Development
- 腦發育各階段由多樣的基因程式精細控制;但經驗、環境或刺激可調節、調適或精修初始模式,使腦適應環境。
- 這些調適過程展現發育中腦部的高度可塑性,使兒童期與青春期得以持續習得新技能。
- 即使是原以為幾乎完全由基因程式控制的階段(如神經元前驅細胞增生)也是如此:實驗顯示,母體因子血管活性腸胜肽(vasoactive intestinal peptide, VIP)可使這些前驅細胞的增生能力改變達 20%。
- 環境也可能對腦成熟造成有害影響。早產兒暴露於同齡胎兒很少或根本不會遇到的刺激:
- 過度或反覆的感覺刺激
- 疼痛刺激
- 壓力
- 多種神經活性藥物
- 母體與胎盤因子的撤除
- 任何影響腦部的環境因子或藥物,都可能改變腦發育的一個到數個階段。
表觀遺傳調控的基本機制 Basic Epigenetic Mechanisms
- 環境因子(正向或有害)作用於腦成熟的主要機制,取決於控制基因體組織與壓縮、進而控制基因表現的表觀遺傳事件。
- 染色質(chromatin):真核生物染色體是 DNA 與蛋白質外鞘的複合體。基本單位為核小體(nucleosome),DNA 纏繞其上;每個核小體由組蛋白八聚體(H2A、H2B、H3、H4)構成。
- DNA 的壓縮程度決定轉錄機器能否接觸遺傳資訊,受兩類事件調控:
- DNA 的共價修飾,包括 DNA 甲基化(DNA methylation)。
- 組蛋白 N 端尾巴的轉譯後修飾:乙醯化、磷酸化、甲基化。
- 兩類事件的組合決定染色質開啟或關閉,以及該基因被轉錄或抑制。
DNA 甲基化的讀寫
- 基因轉錄調控區 CpG 島(CpG islands)的 DNA 甲基化,會阻斷轉錄因子與 DNA 結合,從而抑制轉錄。
- 寫入:DNA 甲基轉移酶(DNMTs)以 S-腺苷甲硫胺酸(S-adenosyl-methionine, SAM)為甲基供體,催化 DNA 甲基化。
- 讀取:甲基化 CpG 結合蛋白(methyl-CpG-binding proteins, MBPs)辨識甲基化 DNA,負責「讀取」與「轉譯」其資訊。
- 連結:MBPs 招募組蛋白去乙醯酶(HDACs)及其他染色質重塑因子,成為 DNA 甲基化與組蛋白轉譯後修飾之間的環節,促成轉錄不活化的染色質。
- 組蛋白乙醯化在腦發育的關鍵角色,可由組蛋白乙醯轉移酶 CBP 說明:其異合子突變是 Rubinstein-Taybi 症候群的特徵,造成皮質腦回異常、白質減少與區域性發育不全,並伴隨智能障礙。
DNA 甲基化與腦發育 DNA Methylation in the Brain
- 腦的 DNA 甲基化程度遠高於其他組織,在小鼠模型中對腦發育不可或缺。
- 尤其影響神經元分化與存活,以及神經新生/膠質新生的「切換」(switch)。
- 近期發現 DNA 甲基化也發生於非 CpG 脈絡,主要在出生後的腦神經元;這大幅改變對此表觀標記在腦發育病理生理中角色的理解,Rett 症候群尤其如此。
| 疾病 | 相關機制 | 備註 |
|---|---|---|
| Rubinstein-Taybi 症候群 | 組蛋白乙醯轉移酶 CBP 異合子突變 | 皮質腦回異常、白質減少、區域性發育不全、智能障礙 |
| Rett 症候群 | MBP 中的 MeCP2 突變 | 屬 DNA 甲基化路徑,具智能障礙 |
| ICF 症候群 | Dnmt3b 突變 | 合併免疫缺陷、著絲粒周圍異染色質不穩定、顏面畸形 |
| Prader-Willi 症候群、Angelman 症候群 | 印記基因表現失調 | 神經發育症候群,常伴隨智能障礙 |
印記基因 Imprinted Genes
- 印記基因是僅由父系或母系等位基因表現的基因,受表觀遺傳調控;有許多在腦中表現。
- 其表現失調常與智能障礙相關。
壓力與神經活動的表觀遺傳印記
- 胎兒壓力會改變參與神經發育與成人腦完整性之關鍵基因(如 BDNF、Reelin、GAD67)的 DNA 甲基化模式。
- 例如,妊娠第三期患憂鬱或焦慮相關疾患的女性,其新生兒的糖皮質素受體基因啟動子區呈高甲基化。
- 神經可塑性、學習與記憶也仰賴表觀遺傳事件的建立,而神經活動會改變 DNA 甲基化模式。
神經表觀遺傳學與治療展望 Neuro-Epigenetics and Therapeutic Possibilities
- 可稱之為「神經表觀遺傳學」(neuro-epigenetics):深入了解表觀遺傳事件及其可逆性,開啟了尋找能重塑腦部表觀基因體、重新編程神經細胞之化合物的大門。
- 在此脈絡下,低甲硫胺酸飲食(甲硫胺酸為 SAM 前驅物)與 HDAC 抑制劑(如 valproic acid)已廣泛用於思覺失調症、雙相情緒障礙等精神疾患。
臨床反思:NICU 視角 Clinical Reflection—NICU Perspective
臨床上可帶走的重點
- 早產兒與足月兒的腦都在活躍發育:妊娠第三期仍進行神經元遷移收尾、計畫性死亡、神經突生成與突觸生成,受擾的後果取決於當時所處的發育階段(關鍵期)。
- 妊娠第 26 至 28 週的星狀膠質細胞產生高峰,以及皮質下板在第 22 至 36 週的最大厚度,都與早產兒相關:原文指出前者對早產兒可能特別重要,皮質下板受損則可能參與視丘皮質連結異常與認知、運動障礙。
- 早產兒白質損傷的型態已由囊性腦室周圍白質軟化轉向瀰漫性病灶,主要現象是寡樹突膠質細胞成熟受阻。
- 全身性發炎可擴散至腦並活化微膠質細胞,形成「雙重危險」,是許多曾為極早產兒者日後認知與行為缺損的重要因素。
- 囓齒類實驗中,NMDA 受體抑制劑、多種抗癲癇藥與麻醉藥會加重發育性神經元死亡;這些是動物資料,原文未就人類用藥提出建議。
- NICU 中過度或反覆的感覺刺激、疼痛、壓力、神經活性藥物及母體與胎盤因子的撤除,都是同齡胎兒很少或不會遇到的暴露;任何影響腦部的因子都可能改變腦發育的一個到數個階段。
閱讀時請留意 Points to Verify
原文內部不一致
- 皮質分層順序:原文寫「依序形成第 V、VI、III、II 層」(layers V, VI, III, and II),但同段已說第 VI 層在第二波遷移時即形成,且未提第 IV 層;Fig. 52.2 則畫出第 IV 層。疑似誤植,筆記照原文保留。
- 第一波突觸生成的時間:Key Points 將「第一波突觸生成」列為妊娠第三期的事件,但突觸生成一節寫第一階段始於妊娠第 6 至 8 週,第三階段才始於約妊娠中期。兩處說法不一致。
- 皮質下板出現時間:神經元遷移段落寫第二波遷移約在妊娠第 7 週分出皮質下板;皮質下板神經元一節則寫神經元約第 7 週產生、皮質下板本身約第 10 週出現。兩處時間不同。
- 麻醉藥組合:原文寫「midazolam, nitric oxide, and isoflurane」。此處的 nitric oxide 是否為誤植,無法由本章確認,筆記照原文保留。
- 「transient?」:原文在視丘皮質軸突與皮質下板神經元的突觸前印有問號(transient? synapses),是否為暫時性原文未確定。