PART XI · CARDIOVASCULAR SYSTEM · CHAPTER 45
心臟的發育生物學Developmental Biology of the Heart
本章重點 Key Points
- 心臟由心臟中胚層(cardiac mesoderm)形成,起初是一條左右對稱的線狀管,兩端分別連接原始的動脈與靜脈系統。人類的心管在妊娠 3 週時已形成。
- 心管經過環化(looping)建立左右側性(laterality),再經分隔(septation)成為四個腔室,並與體循環及肺循環的動、靜脈相接。心臟在妊娠 9 週時已完全成形。
- 來自心臟以外的細胞族群會遷入發育中的心臟,對心臟瓣膜、冠狀動脈與心腔都有重要貢獻。
- 上述過程若發生改變或未完成,便產生先天性心臟畸形(congenital heart malformations)。
心臟發育解剖總覽 Overview of Cardiac Developmental Anatomy
本章回顧胚胎與胎兒期的心臟解剖、參與心臟發育的細胞類型,以及其基因調控,順序是:具流入與流出段的線狀管 → 心臟環化 → 分隔成具獨立肺循環與體循環的四腔心。對於照顧正常與異常心臟生理新生兒、嬰兒的臨床新生兒科醫師,這些過程都值得理解。
從細胞場到心管 From Cardiac Field to Heart Tube
- 心臟發育始於原腸化(gastrulation)時的一片細胞場:心臟中胚層(Fig. 45.1A)被特化後,往胚胎腹側與中線移動,融合成管。
- 時間點:人類胚胎在受精後 3 週完成,約相當於末次月經後第 5 週(Fig. 45.1B)。
- 心管的兩極:
- 靜脈極(venous pole)/靜脈竇(sinus venosus):位於後方/背側端,接體靜脈與胎盤靜脈系統。
- 動脈極(arterial pole)/流出道(outflow tract):位於前方/腹側端,接發育中的主動脈。
- 心管本體分段:鄰近靜脈極的心房段(atrial segment)、房室管(atrioventricular canal, AV canal),以及鄰近動脈極的心室段(ventricular segment)。
- 各段從一開始在組織學與功能上就不同:心房與心室肌細胞即使從原始中胚層分離出來,也各具特徵。
最早的心跳與循環 Earliest Contractions and Circulation
- 心管形成時,分化中的心肌細胞已產生具功能的收縮單位,成熟到足以開始自發性收縮。
- 收縮最初呈蠕動式(peristaltic),把血液單向由靜脈入口推向動脈出口。
- 管內最初是清澈液體;心臟開始跳動後不久,紅血球便從卵黃囊血島(blood islands)進入循環。
- 造血來源的演變:
- 前 6 週:卵黃囊是造血細胞的唯一來源。
- 其後:由肝臟(脾臟的角色較小)接手。
- 妊娠第二孕期開始:骨髓逐漸有造血細胞進駐,到出生時成為血球的主要來源。
- 為什麼循環要這麼早建立:此時發育中的組織已無法只靠單純擴散取得養分,必須靠循環系統維持營養與氧氣供應。
環化與分隔的時間軸 Looping and Septation Timeline
- 受精後 3 週(末次月經後約第 5 週)心臟中胚層融合成對稱的心管。
- 妊娠第 4–5 週心管失去對稱性,經心臟環化改變外形,明確的左右結構開始具備各自功能(Fig. 45.1B)。
- 環化之後流入段與流出段重新對齊並分隔;心房、心室分隔;房室瓣與半月瓣形成。
- 妊娠第 7 週(末次月經後 9 週)心臟成為「成品」——成熟的心臟(Fig. 45.1B)。
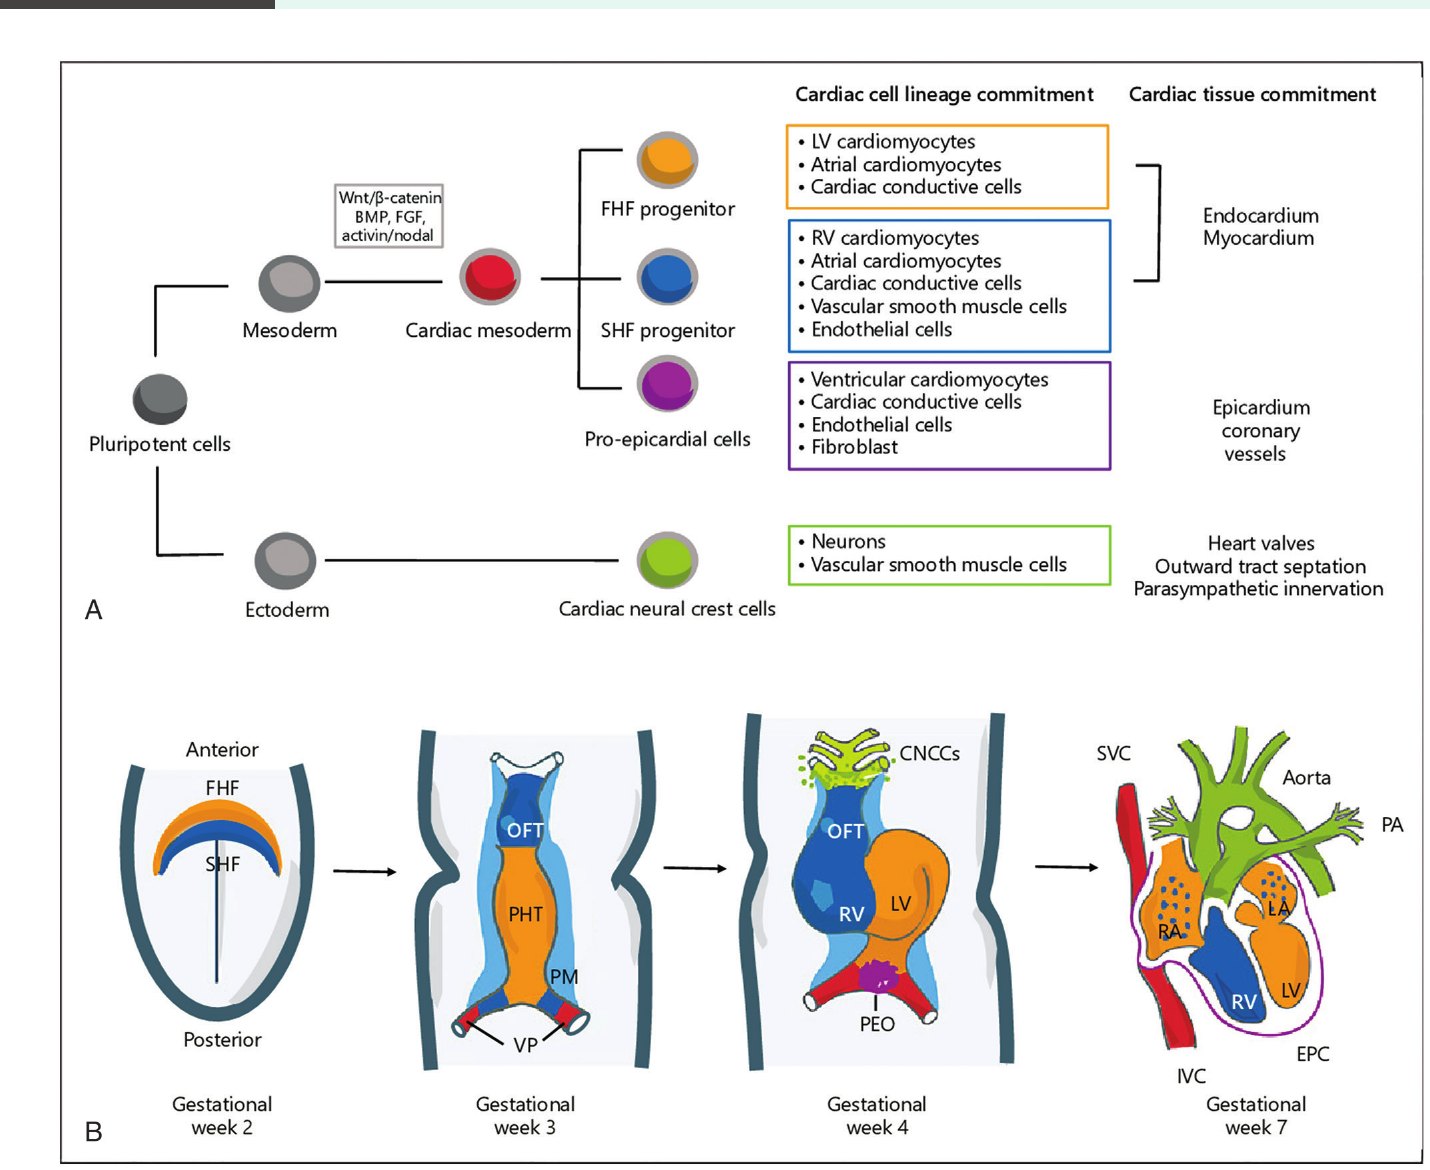
Fig. 45.1A 圖內列出的譜系分工
- 第一心區前驅細胞(FHF progenitor):左心室心肌細胞、心房心肌細胞、心臟傳導細胞。
- 第二心區前驅細胞(SHF progenitor):右心室心肌細胞、心房心肌細胞、心臟傳導細胞、血管平滑肌細胞、內皮細胞。
- 以上兩群在組織層次上對應心內膜與心肌。
- 前心外膜細胞(pro-epicardial cells):心室心肌細胞、心臟傳導細胞、內皮細胞、纖維母細胞;組織層次對應心外膜與冠狀血管。
- 心臟神經嵴細胞(cardiac neural crest cells):神經元、血管平滑肌細胞;組織層次對應心臟瓣膜、流出道分隔與副交感神經支配。
- 圖中標示由中胚層走向心臟中胚層的訊號為 Wnt/β-catenin、BMP、FGF、activin/nodal。
成熟心臟的八組結構 The "Final Product"
| # | 原始結構 | 成熟後的樣貌 |
|---|---|---|
| 1 | 靜脈極/靜脈竇(sinus venosus) | 連接上半身的上腔靜脈(SVC)、下半身的下腔靜脈(inferior vena cava, IVC)、肝臟及冠狀循環的體靜脈,全部匯入右心房(RA) |
| 2 | 左心房(LA) | 獨立的心腔,藉由從肺長入的肺靜脈另行與靜脈系統相接 |
| 3 | 房室管 | 起初是單一、無阻礙的開口,分隔成兩個房室瓣:三尖瓣(右心房→右心室)、僧帽瓣(左心房→左心室) |
| 4 | 原始心室 | 擴張並分隔成獨立的左、右心室;經緻密化(compaction)與肉柱化(trabeculation),工作心肌高度組織化,適應肺循環(RV)或體循環(LV)的不同需求 |
| 5 | 動脈極/心球(bulbus cordis) | 形成兩條獨立流出道。遠端的動脈幹(arterial trunk)呈螺旋狀分隔,得到前方連肺的肺動脈與後方連身體的主動脈;近端的圓錐(conus)留在右心室。肺動脈瓣形成於圓錐與肺動脈交界;主動脈瓣形成於左心室與主動脈交界 |
| 6 | 成對背主動脈(連主動脈囊) | 大幅重塑為單一左向主動脈弓與降主動脈;近端連冠狀動脈、頭頸動脈,以及胎兒期的重要暫時結構——動脈導管(ductus arteriosus) |
| 7 | 冠狀動脈網 | 在心室肌內形成,以左、右冠狀動脈接到主動脈 |
| 8 | 分化的心肌細胞網 | 傳導系統:竇房結(sinoatrial node)、房室結(atrioventricular node)、心室的 His-Purkinje 系統 |
心臟的細胞類型與來源 Cell Types Within the Heart and Their Origins
心臟的分層 Layers of the Heart
- 心內膜(endocardium):單層細胞厚度的上皮內襯。
- 心肌(myocardium):由執行心臟收縮工作的肌細胞組成。
- 心外膜(epicardium):覆蓋心臟外表面的單層細胞上皮。
- 心臟外另有心包囊(pericardial sac),組成與功能類似包覆肺臟的肋膜。
原發心區與心內膜墊細胞 Primary Heart Field and Cushion Cells
- 心臟本體源自一片側板中胚層細胞,稱為造心中胚層(cardiogenic mesoderm)(Fig. 45.1A、B 橘/紅)。
- 原始心管源自原發心區(primary heart field)(Fig. 45.1 橘色;圖中標為 first heart field, FHF),有兩層:心內膜與心肌,都來自心臟中胚層。
- 部分心內膜細胞進行上皮–間質轉化(epithelial-to-mesenchymal transition),形成心內膜墊(endocardial cushions)。這些細胞對瓣膜正常發育、心房與心室的完整分隔都至關重要。
- 心肌多半維持為肌肉,但有一群細胞會分化成傳導系統的 Purkinje 纖維。
次級心區 Secondary Heart Field
- 心臟流出道在基因與型態上可說最複雜,因此也最容易出現發育缺陷。
- 次級心區(secondary heart field)是與原有心區相鄰的一群心臟中胚層,在環化期間遷入心臟(Fig. 45.1 藍色)。
- 主要貢獻:右心室與流出區、心房與心室中隔,以及部分心房。
神經嵴細胞 Neural Crest Cells
- 也遷入發育中的流出道,與次級心區心肌交互作用(Fig. 45.1 綠色)。
- 起源與路徑:來自前菱腦(anterior rhombencephalon)的外胚層,成片遷移經過咽部區域,進入主動脈弓、動脈幹(truncus)與近端圓錐。
- 功能:
- 與心內膜墊細胞交互作用,分隔大動脈並閉合圓錐中隔(conal septum)。
- 對鄰近的副甲狀腺、甲狀腺與胸腺發育也重要。
- 支配心臟神經,並形成近端主動脈大部分的平滑肌。
前心外膜器官 Proepicardial Organ
- 位於心管背側與下方的一團細胞(Fig. 45.1 紫色),是另一群對成熟心臟有重要貢獻的外來細胞。
- 來源仍有爭議,主流理論之一認為來自肝臟原基(liver primordium)。
- 這些細胞以上皮片擴展、覆蓋心臟表面而形成心外膜。
- 部分細胞再由心外膜脫層、遷入下方心肌(上皮–間質轉化),分化為:血管平滑肌、冠狀動脈血管內皮細胞,以及心臟纖維母細胞(在心肌纖維之間、數量可觀的細胞族群)。
- 近期一項以多種譜系標記併用的研究顯示:冠狀動脈內皮僅約 4% 來自前心外膜,但其對纖維母細胞與平滑肌族群的貢獻高得多;該研究並指出循環中的內皮前驅細胞(circulating endothelial progenitors)是心臟內皮的重要來源。
| 族群 | 來源 | 主要去向 |
|---|---|---|
| 原發心區 | 心臟中胚層 | 原始心管(心內膜、心肌);心內膜再給出心內膜墊,心肌部分分化為 Purkinje 纖維 |
| 次級心區 | 相鄰的心臟中胚層,環化時遷入 | 右心室、流出區、心房與心室中隔、部分心房 |
| 神經嵴 | 前菱腦外胚層 | 大動脈分隔、圓錐中隔閉合、心臟神經支配、近端主動脈平滑肌;另參與副甲狀腺、甲狀腺、胸腺發育 |
| 前心外膜器官 | 有爭議(一說肝臟原基) | 心外膜;血管平滑肌、部分冠狀內皮(約 4%)、心臟纖維母細胞 |
總結:心肌細胞至少來自兩群中胚層,而心臟還包含上皮與神經嵴來源的細胞,這些細胞在時間與空間上都精確地遷入。
原腸化與心新月 Gastrulation and the Cardiac Crescent
胚胎發育早期的知識多來自鳥類、斑馬魚與小鼠模型,再推及人類,其中仍有公認的缺口。
雙層胚盤 The Bilayer Disc
- 最早期胚胎是由兩片上皮細胞構成的雙層盤(bilayer disc),懸於兩個充液腔之間:卵黃囊與羊膜腔(Fig. 45.2A)。
- 下胚層(hypoblast):腹側層,面向卵黃囊,最終歸入胚外結構。
- 上胚層(epiblast):背側層,面向羊膜腔,形成全部三個胚層:
- 外胚層(ectoderm):神經系統與皮膚。
- 中胚層(mesoderm):心臟、骨骼、肌肉與結締組織。
- 內胚層(endoderm):腸道。
原腸化的過程 Process of Gastrulation
- 中胚層與胚胎內胚層藉原腸化從原始外胚層分離。
- 上胚層出現一道溝,由尾端開始、逐漸向頭側延伸,終點稱為前索板(prechordal plate)(Fig. 45.2A)。
- 這道溝稱為原條(primitive streak),其前緣是原結(primitive node)。
- 沿原條,上胚層細胞自上皮片脫層,侵入上胚層與下胚層之間的潛在空間,形成一條位於前索板頭側、向兩側延伸的細胞新月(Fig. 45.2B)。
位置決定命運 Position Determines Fate
基因與命運圖譜(fate mapping)研究顯示:細胞遷移時的相對位置,是其日後在心臟內位置的關鍵。
| 穿過原條的位置 | 心新月上的位置 | 命運 |
|---|---|---|
| 最靠近原結處 | 新月頂端(apex) | 流出道心肌前驅細胞 |
| 原條中段 | 頂端兩側 | 心室肌細胞前驅細胞 |
| 原條最後段 | 最外側與尾側 | 心房肌細胞 |
- 次級心區中胚層位於內側,沿整條新月延伸,因此與新月的流出段、流入段都相連(Fig. 45.2B 綠色)。
- 以活細胞追蹤與縮時影像進行的命運圖譜研究證實,這些細胞是成群移動(tissue motion),而非各自遷移——這是維持細胞在組織、最終在器官內相對位置的一種方式。
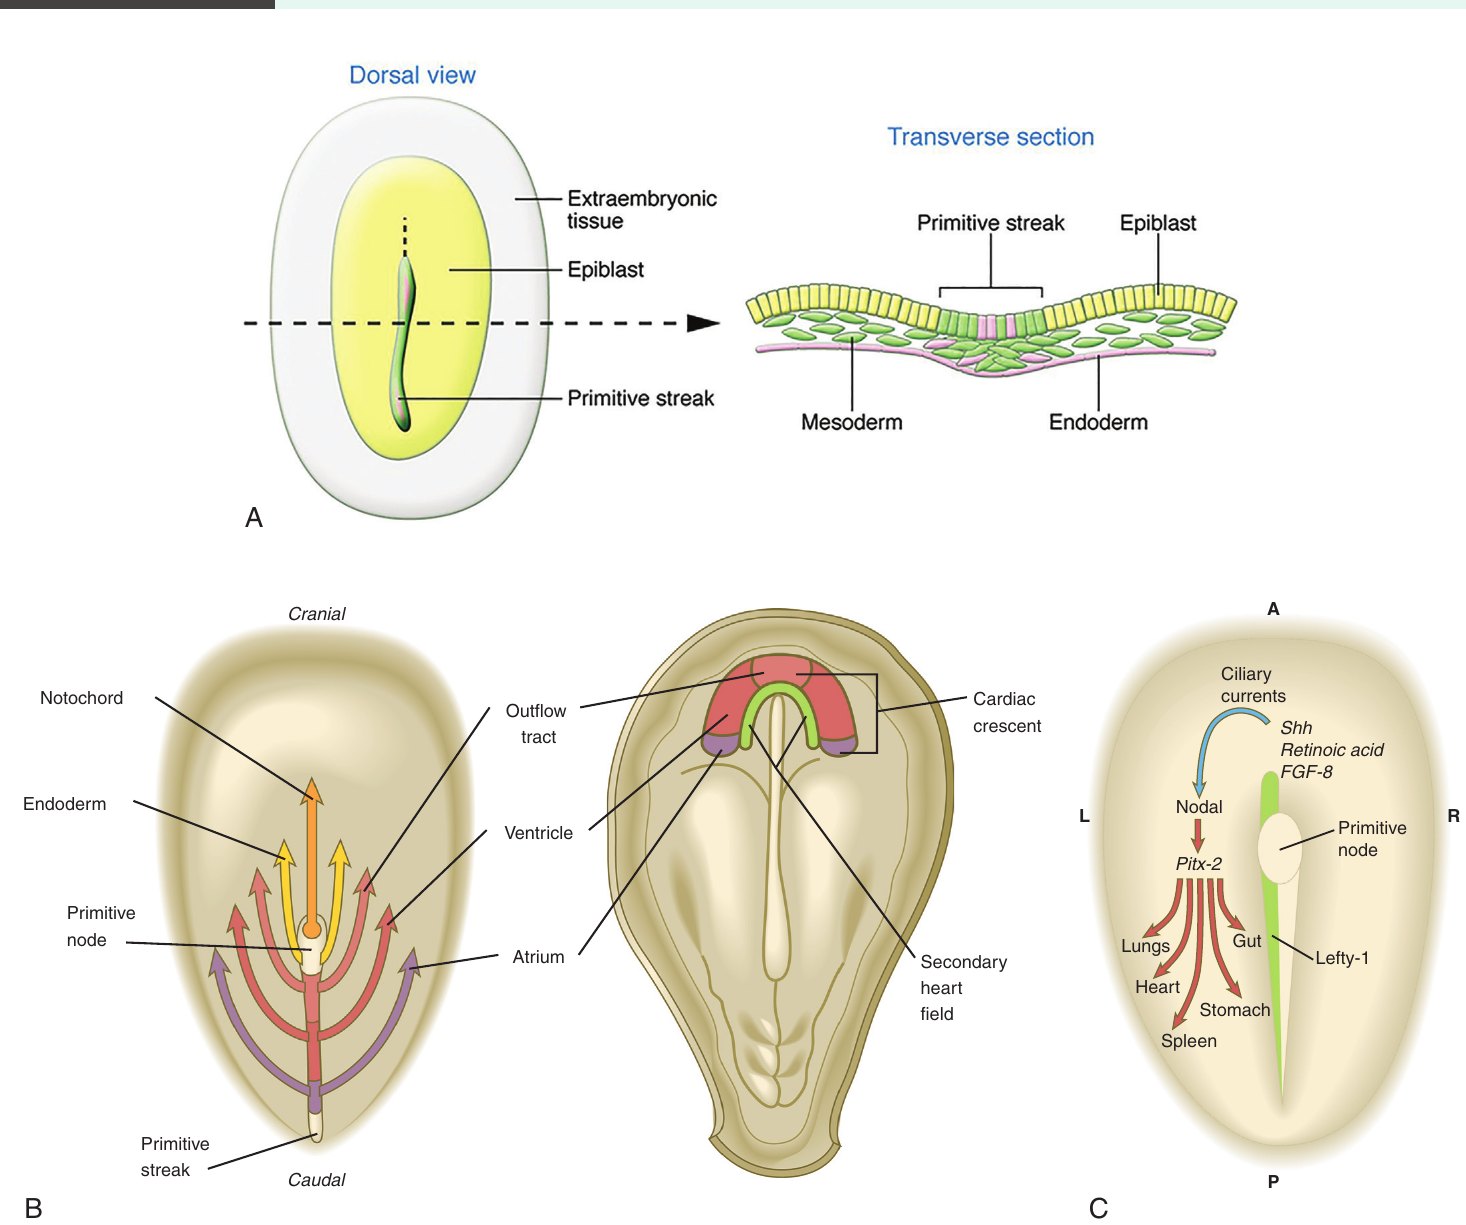
原腸化的基因調控 Genetic Control of Gastrulation
從多能性到分化
- Mesp1:已知最早的心肌細胞譜系標記,是原腸化開始時在中胚層表現的轉錄因子;作用如同多能性(表型上與間質性、遷移性、增生性特徵相連)與分化之間的開關。
- Wnt 家族(wingless integrated):在原結表現的生長因子,阻斷分化、促進增生與遷移。
- 周邊結構(包括神經管與內胚層)分泌抑制因子,圍出心區的新月形邊界。
- 因此,細胞遷入心新月時,是離開 Wnt 表現區、進入主動抑制 Wnt 的區域。
- 接著心臟中胚層在另一類生長因子——骨形態發生蛋白(bone morphogenetic proteins, BMP)——的控制下,開始分化成心肌細胞。
早期分化標記與表觀調控
- 分化心肌細胞表型的早期標記:轉錄因子 Islet 1、TBX5、GATA4、Nkx 2.5。
- 基因表現轉變的機制複雜,涉及許多表觀遺傳因素,包括分化細胞的染色質結構修飾,以及增強子與抑制子調控元件。
- GATA4 有雙重功能:修飾染色質結構(例如讓特定 DNA 片段「解開」,使其可被轉錄),以及結合特定基因啟動子直接增強轉錄。
- Gata4 在原發心區把 TBX5 招募到肌肉特異基因的啟動子。
- TBX5:
- 小鼠缺失會造成左心室發育異常。
- 人類單倍體不足(haploinsufficiency)造成心房中隔缺損(atrial septal defect, ASD)、傳導缺陷與肢體異常,但也可能與左心發育不全症候群(hypoplastic left heart syndrome)相關。
- NKX2.5 與 Islet1:同樣藉結合心臟特異基因的調控元件發揮作用,包括染色質結構與轉錄增強元件。
- GATA4、NKX2.5 與 TBX5 彼此依賴、並在某種程度上功能重複,使這個系統更複雜。
左右不對稱的建立
- 胚胎基本的左右不對稱在原腸化時由 sonic hedgehog(shh)與纖維母細胞生長因子 8(fibroblast growth factor 8)的濃度梯度決定(Fig. 45.2C)。
- 梯度由原結的纖毛運動造成,並活化一連串下游基因,包括 nodal、lefty、pitx-2。
- 這些全都是左側性的標記;就目前所知,右側性完全是由這些因子的缺乏來界定。
- 嚴格的左右基因表現梯度若改變,心臟、肺及/或腸道的左右結構就會異常,稱為異位症(heterotaxy)(見下文與 Fig. 45.4)。
心管的環化與側性 Looping and Laterality of the Heart Tube
心管融合 Fusion of the Heart Tube
- 心新月起初左右對稱,隨後融合成同樣對稱的心管。
- 心新月向腹側與內側移動,兩臂融合成管(Fig. 45.3A);背側發育中的前腸與頭側的神經管協助把心管推到新位置。
- 心區融合的同時,心臟開始跳動。人類胎兒約在妊娠 23 天,即末次月經後第 6 週初。
環化的機制 Mechanisms of Looping
- 環化(looping)時心管失去對稱,可辨識出明確的左右型態(Fig. 45.3B)。
- 差異生長有一定作用:外彎側的心肌細胞增生高於內彎側。
- 主要貢獻則是發育中次級心區細胞的大量遷移,而且同時發生在動脈極與靜脈極,結果是流出道拉長、心室段擴大。
- 近期詳細的譜系追蹤與雞胚心管研究證實:整個右心室來自次級而非原發心區。
- 心房與靜脈竇也納入次級心區細胞,心管的這一部分自原位向頭側移動。
- 環化期間心管長度整體增加五倍。
- 除細胞遷移與增生外,還有機械力真實地牽拉、扭轉並重新對齊原始心管結構;一般認為與細胞骨架有關,包括非肌肉肌凝蛋白(non-muscle myosin)、馬達蛋白 dynein、微管與非肌肉肌動蛋白束。
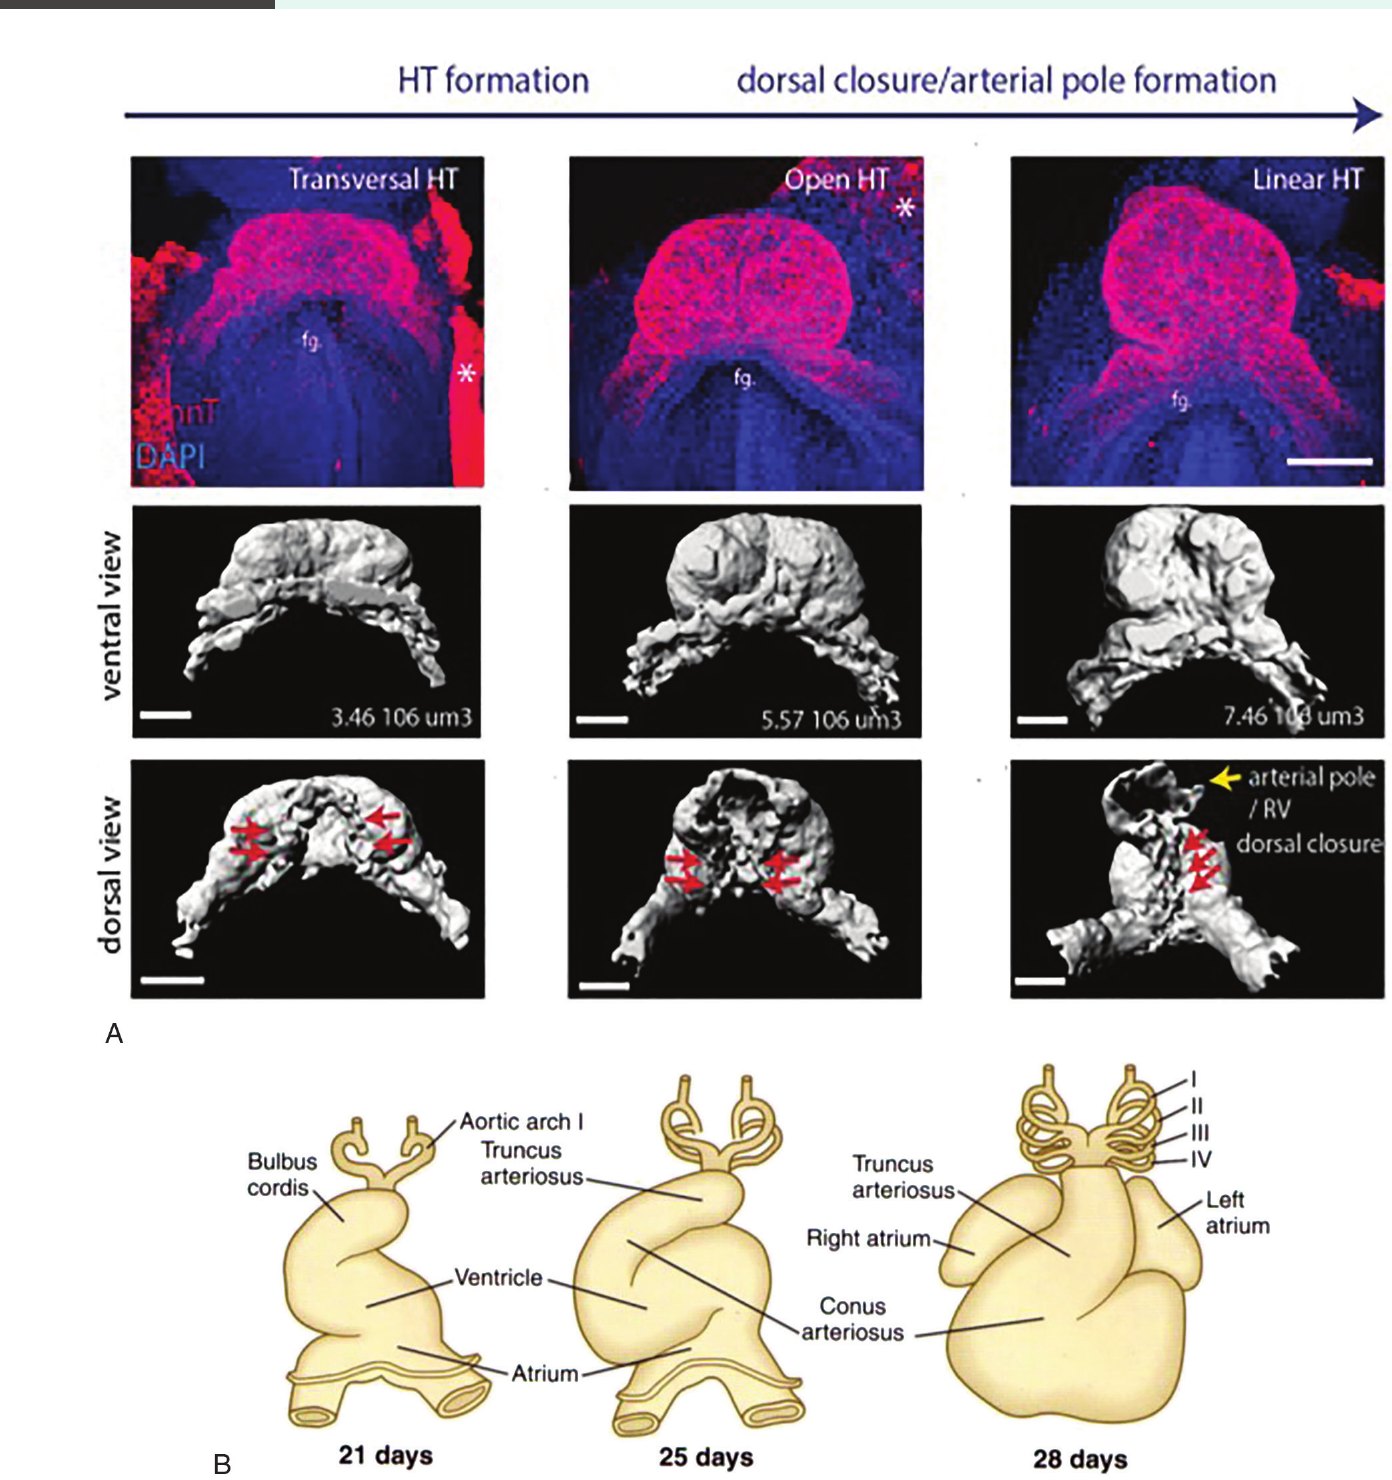
次級心區與環化的基因調控 Genetic Control of the Secondary Heart Field and Cardiac Looping
- 次級心區的基因特徵:轉錄因子 Tbx1、islet 1、Mef2c、Tbx20,與生長因子 Fgf 8、Fgf 10。小鼠剔除其中任一基因都會造成流出道缺陷。
- 原腸化晚期有第二波 Mesp1 表現,發出次級心區細胞遷入發育中心臟的訊號。
- TBX1 在次級心區的表現,協調心管動脈段與靜脈段兩處的遷移。
- 次級心區細胞進入流出道後,停止表現許多原有基因標記,轉而表現較泛用的心肌標記,如 Hand1、Nkx2-5、Tbx5、Gata4、Mef2——這些在原發心區已被充分研究,知道對心肌生成有貢獻。
- 這些基因在次級心區表現缺陷時,可導致右心室發育不全與流出道異常,包括法洛氏四重症(tetralogy of Fallot)。
環化與側性的臨床異常 Clinical Abnormalities in Cardiac Looping and Laterality
正常環化(D-looping)
- 正常向右環化:靜脈竇與心房移向左後方,心室與心球移向右前方。
- 重要的是,靜脈極也向頭側移動,與動脈極在身體水平軸上對齊(Fig. 45.3B,28 天)。
- 心球留在原始心室右側。這次重新定位對房室與心室–動脈連接的正確建立至為關鍵。
- 環化同時建立外彎與內彎:
- 前方外彎(outer curvature):心肌快速生長擴張,形成心室腔。
- 後方內彎(inner curvature):生長較慢,像環化過程的支點;內彎心肌貢獻於房室管,對心內膜墊的形成很關鍵。
異常環化(L-looping)與連接的命名
環化有時向左:靜脈極與心房移向右方,心室與動脈極移向左方(Fig. 45.4A 為正常環化,可與 Fig. 45.4B 的 L-looping 比較)。
心臟連接的傳統定義(三段式)
- 心房內臟位(atrial situs):S=正位(solitus,右心房在右);I=反位(inversus,右心房在左)。
- 心室環化:D 或 L。
- 大動脈關係:S=正常,主動脈在肺動脈右後方;D=異位,主動脈在右但偏前;L=異位,主動脈在左且偏前。
- 正常心臟連接記為 (S,D,S)。
| 型態 | 記法 | 特徵 | 血流/生理 |
|---|---|---|---|
| 完全鏡像 | (I,L,L) | 心臟在身體右側(右位心,dextrocardia),房室與心室–動脈連接左右相反 | 心臟連接與生理正常 |
| 先天矯正型大動脈轉位(congenitally corrected transposition):心房正位 | (S,L,L) | 房室與心室–動脈皆不一致;心室向左環化,心球在原始心室左側(Fig. 45.4D);大動脈分隔時通常為 L 型異位,主動脈在肺動脈左側 | RA→LV→PA;LA→RV→主動脈。單獨存在時循環正常,但原本構造上是打向低壓肺循環的右心室,成了體循環心室 |
| 先天矯正型大動脈轉位:心房反位 | (I,D,D) | 心房反位、心室 D 環化、大動脈 D 型異位(Fig. 45.4C) | 相同生理 |
- 先天矯正型大動脈轉位常合併其他心臟缺陷,範圍從心室中隔缺損(ventricular septal defect, VSD)合併肺動脈瓣狹窄,到涉及單一心室發育不全,或一個以上瓣膜發育不全、未發育或畸形的複雜缺陷。
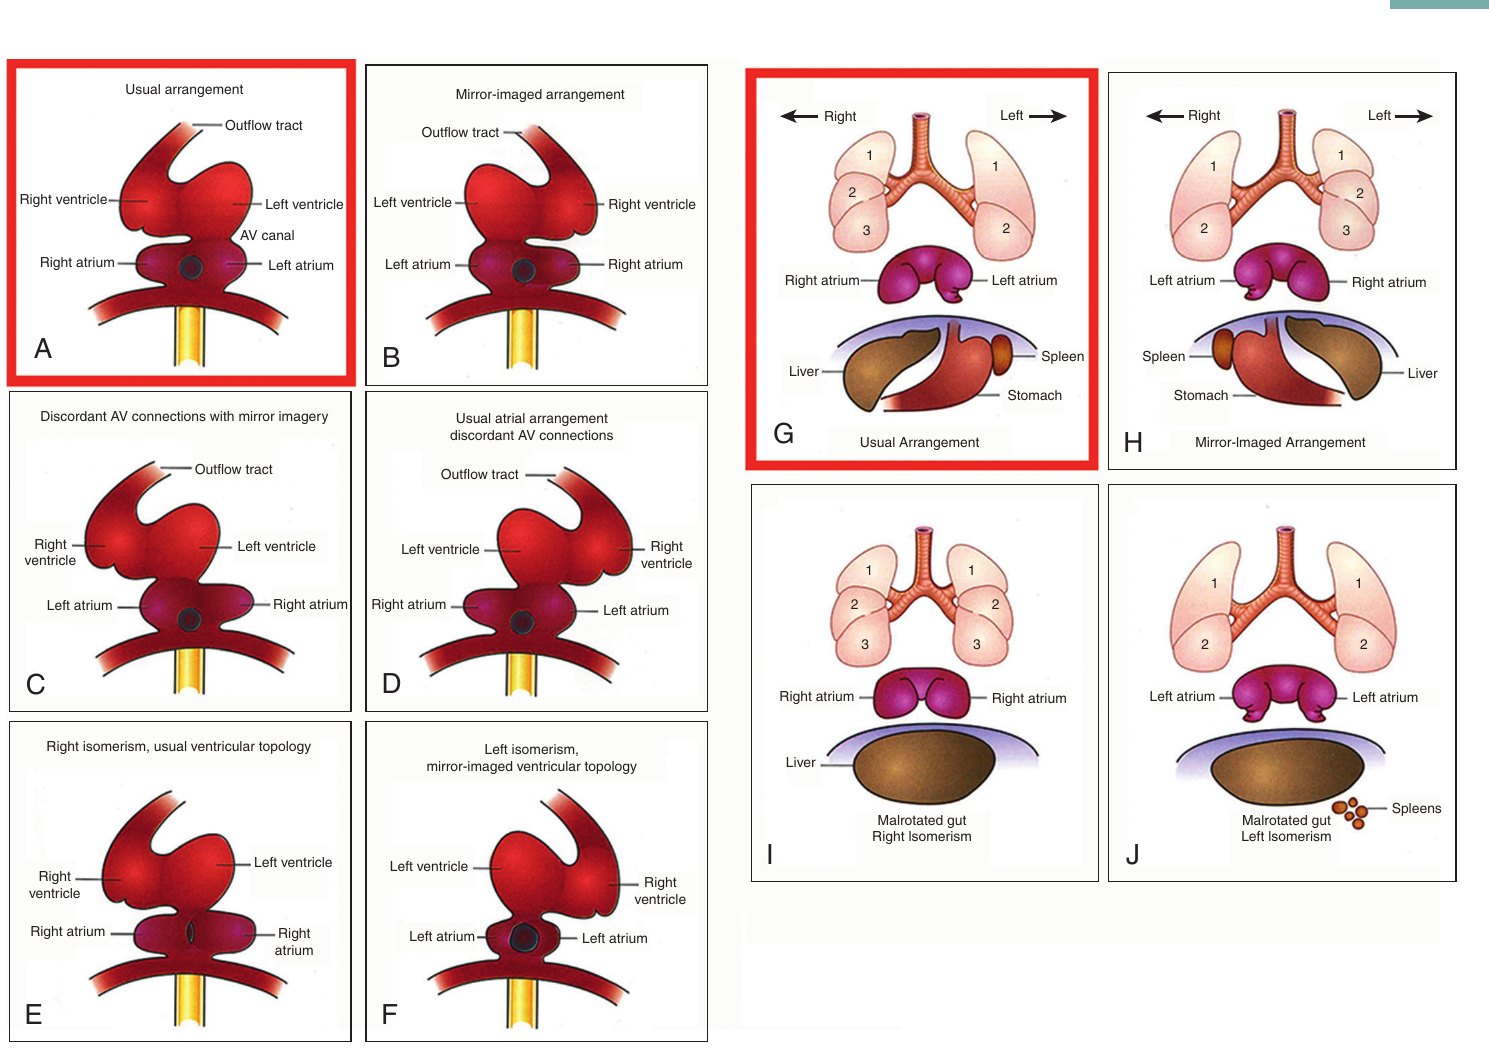
| 分圖 | 內容 |
|---|---|
| A | 正常 D-looping,房室連接正常 |
| B | 鏡像 L-looping,房室連接正常 |
| C | 房室不一致合併心房反位 |
| D | 房室不一致合併心房正位 |
| E | 右心房同形,心室位置如常(usual ventricular topology) |
| F | 左心房同形,心室位置鏡像(mirror-imaged ventricular topology) |
| G | 正常內臟排列 |
| H | 鏡像,即內臟反位(situs inversus) |
| I | 右同形:雙側皆為三葉肺、雙右心房、腸旋轉不良,圖中未見脾臟 |
| J | 左同形:雙側皆為兩葉肺、雙左心房、腸旋轉不良、多個脾臟 |
圖說另指出:雙側右側性與雙側左側性通常伴隨體靜脈與肺靜脈異常、心臟分隔異常,以及流入與流出道異常;左右同形症候群也伴隨胸腹其他不對稱器官的側性異常,即異位症。
異位症候群(heterotaxy syndromes)
- L-looping 也可能與更全身性的異位症候群相關:這是一群異質性的先天缺陷,共通點是胚胎左右不對稱異常。
- 異位時,沿身體軸的左右指定被隨機化:可能是鏡像不對稱,或兩側對稱(兩個右側或兩個左側),常稱為右同形或左同形(right / left isomerism)(Fig. 45.4E、F 及 I、J)。可影響腹部、肺與心臟。
- 腹部:腸、肝、脾可與正常相反(腹部內臟反位,abdominal situs inversus);可有腸旋轉不良(malrotation)與膽道異常。
- 脾臟:屬正常左側結構,左同形時可重複(多脾,polysplenia),右同形時可缺如(無脾,asplenia)。
- 肺:異常表現在支氣管與肺的解剖(Fig. 45.4)。
- 心臟:心房側性隨機化,可為正位、反位,有時難以判定(內臟位不定,situs ambiguous;包括雙側右心房或雙側左心房)。
異位症的靜脈回流
- 臨床上定義心房最實用的方式是看靜脈回流:體靜脈回右心房、肺靜脈回左心房。但在異位症不一定可行,因為肺靜脈或體靜脈可能回流到兩個心房。
- 肺靜脈:正常由發育中的肺長出,接到左心房後壁。左右訊號混亂時常呈同側回流:左側靜脈回左側心房,右側靜脈回右側心房。
- 體靜脈:可回流到任一或兩個心房,例如右上腔靜脈回右心房、左上腔靜脈回左心房。原因是體靜脈起初為成對對稱結構,某些結構的退化是左右不對稱建立過程的一部分。
| 無脾/右同形(asplenia / right isomerism) | 多脾/左同形(polysplenia / left isomerism) | |
|---|---|---|
| 脾臟 | 缺如 | 重複 |
| 常見合併心臟缺陷 | 心室分隔失敗致單一心室;肺動脈發育不足(肺動脈瓣狹窄或閉鎖);雙側上腔靜脈;肺靜脈回流異常 | 心內膜墊缺損;左側阻塞性病灶如主動脈弓窄縮(coarctation of the aorta);下腔靜脈中斷合併奇靜脈延續(azygous continuation)至上腔靜脈 |
心室流入道分隔:心內膜墊 Ventricular Inlet Septation: Endocardial Cushions
環化後的血流順序 Flow Sequence After Looping
- 環化後心管方向大幅改變,血流順序基本不變:由靜脈極入心 → 共同心房 → 共同心室 → 經圓錐動脈幹(conotruncus)出到主動脈。流入與心房段在左,心室與流出段在右。
- 若發育在此附近停滯,可能形成:
- 整個流入部對齊左側心室:左心室雙入口(double inlet left ventricle)。
- 整個流出部對齊右側心室:右心室雙出口(double outlet right ventricle)。
- 這兩者在人類都看得到;而右心室雙入口與左心室雙出口則非常罕見——即使有 L-looping 及/或右位心,這個基本順序仍維持不變。
心內膜墊的角色 Role of the Cushions
- 下一階段,房室(流入)與心室–動脈(流出)結構重新對齊並分隔,使每個心室都有帶瓣的入口與出口。人類胚胎發生於妊娠第 6–7 週。
- 瓣膜主要由心內膜墊形成。心內膜墊也完成鄰近房室瓣的那部分心室與心房中隔。
- 因此心內膜墊構成心臟十字(crux of the heart):位於心臟中央的一點,左右是分開的房室管,上下則對齊心房與心室中隔。
心內膜墊的形成 Formation of the Cushions
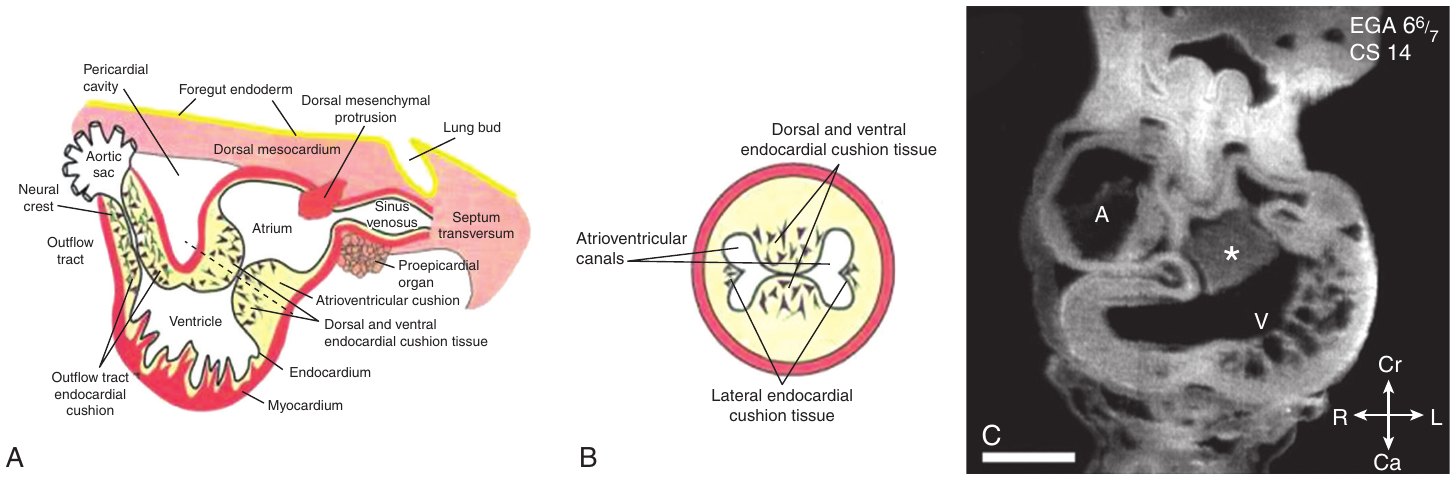
- 妊娠 6 週時,原始心臟的房室段與圓錐動脈幹段出現隆起(Fig. 45.5)。
- 隆起的成因:心內膜細胞脫層,遷入心內膜與心肌之間的細胞外基質。
- 脫層細胞進行上皮–間質轉化(EMT):失去上皮片狀特性,獲得間質表型——失去與鄰細胞的連接、侵入基質、增生加快。
- 房室管與圓錐動脈幹各形成四個獨立的墊,依解剖位置命名:
- 房室管:上(腹側)、下(背側)、左外側、右外側(Fig. 45.5B)。
- 圓錐動脈幹:右上、右背、左下、左腹。
- 房室墊與圓錐動脈幹墊彼此分開,只有一個重要例外:左腹圓錐墊與上房室墊沿心臟內彎相連(Fig. 45.5A)。這種鄰近關係會延續到完全分隔的心臟,成為主動脈瓣–僧帽瓣連續性(aortic-mitral valve continuity)。
- 房室管的分隔:上、下墊生長延伸,最後在中線融合,把房室管完全分為左(僧帽)與右(三尖)兩側。
- 房室瓣由墊的殘餘形成:左側僧帽瓣兩葉,右側三尖瓣三葉。
房室管的臨床異常 Clinical Abnormalities of the AV Canal
- 僧帽瓣前葉裂隙(cleft):上、下墊在中線未完全融合所致。這是心內膜墊缺損的輕型,常合併原發孔型心房中隔缺損(primum ASD),稱為部分型房室管(partial atrioventricular canal)。
- 三尖瓣中隔葉同樣由上、下墊形成,也可能受影響,但較少有臨床意義。
- 完全型房室管(complete atrioventricular canal):房室墊的擴展與融合失敗更嚴重,心臟十字未形成。
- 有一個跨在兩心室上的共同開口,鄰近的心房與心室中隔都有缺損。
- 共同房室瓣的瓣葉構造依未分隔的房室管而定,有四片、有時五片分開的瓣葉,對應兩個外側葉、上葉(稱為前橋葉,anterior bridging)與下葉。
心室流出道分隔:心內膜墊與神經嵴 Ventricular Outflow Tract Septation: Endocardial Cushions and Neural Crest
圓錐動脈幹的分段 Truncus and Conus
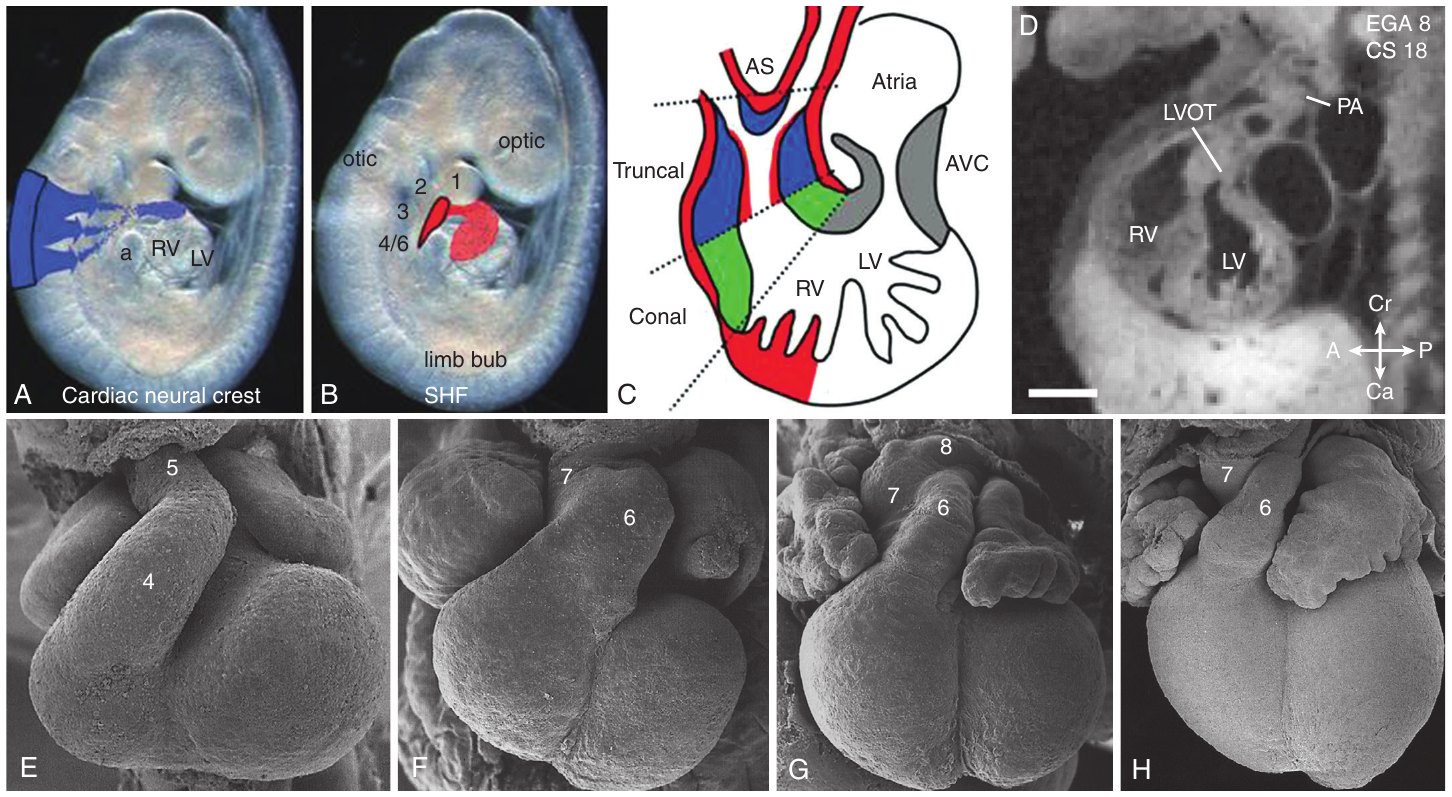
- 房室墊構成立體的心臟十字,圓錐動脈幹墊則形成立體的螺旋,旋轉幾近 180 度。
- 流出道心肌源自次級心區(Fig. 45.6B、C,紅色)。
- 分隔時,原始流出道可分為兩段(Fig. 45.6C):
- 動脈幹(truncus):鄰近主動脈囊(藍色)。右上與左下墊在此區,將貢獻於主肺動脈中隔(aorticopulmonary septum);此區與遷移的神經嵴細胞有重要交互作用(Fig. 45.6A,藍色)。
- 圓錐(conus):鄰近心室肌(綠色)。右背與左腹墊在此區,對肺動脈瓣與主動脈瓣的形成,以及完成兩瓣膜高度的心室間分隔很重要。
- 兩組墊的交界,是心室流出道形成與重塑的關鍵區域。
- 具體而言:
- 左心室流出道發育時,上房室墊與左腹圓錐墊的連續性得以維持。
- 圓錐則完整保留在發育中的右心室流出道上,於流入與流出段之間形成一段組織「頸部」。
| 房室墊 | 圓錐動脈幹墊 | |
|---|---|---|
| 四個墊的名稱 | 上(腹側)、下(背側)、左外側、右外側 | 右上、左下(動脈幹區);右背、左腹(圓錐區) |
| 立體形狀 | 心臟十字 | 螺旋,旋轉幾近 180 度 |
| 瓣膜產物 | 僧帽瓣(兩葉)、三尖瓣(三葉) | 肺動脈瓣、主動脈瓣 |
| 中隔產物 | 心房中隔下部、鄰近房室瓣的後部心室中隔 | 主肺動脈中隔、大動脈下方的圓錐中隔 |
| 交互作用的細胞 | 鄰近內彎心肌 | 動脈幹區與神經嵴細胞交互作用;流出道心肌來自次級心區 |
| 連接點 | 上房室墊與左腹圓錐墊沿內彎相連,日後成為主動脈瓣–僧帽瓣連續性 | |
| 出錯時的病灶 | 僧帽瓣裂隙、部分型與完全型房室管 | 永存動脈幹、主動脈弓中斷、法洛氏四重症、右心室雙出口、圓錐動脈幹型 VSD |
圓錐動脈幹缺陷與 DiGeorge 症候群 Clinical Conotruncal Defects and DiGeorge Syndrome
| 缺陷 | 機轉與表現 |
|---|---|
| 永存動脈幹(truncus arteriosus) | 圓錐動脈幹完全未分隔,單一流出道跨於兩心室上,合併出口型 VSD |
| 主動脈弓中斷(interrupted aortic arch) | 圓錐中隔向後偏移,導致 VSD 與主動脈弓發育失敗 |
| 法洛氏四重症(tetralogy of Fallot) | 圓錐中隔向前偏移,有多層次肺動脈流出道阻塞、VSD 合併主動脈跨位(aortic override)、右心室肥厚 |
| 右心室雙出口(double-outlet right ventricle) | 圓錐動脈幹墊未完成旋轉,兩條大動脈皆對位於前方的右心室上,合併 VSD |
| 圓錐動脈幹型 VSD(conotruncal VSD) | 原文僅列為相關缺陷 |
DiGeorge 症候群
- 特徵:心臟圓錐動脈幹與主動脈弓缺陷,加上副甲狀腺、甲狀腺與胸腺的發育缺陷。
- 遺傳:依家族研究,早已知與第 22 對染色體(22q11)達三百萬鹼基(three megabases)的缺失相關。
- 人類為體染色體顯性,原文稱外顯變異(variable penetration):一份基因缺失就足以致病,而家族成員間嚴重度不一。
- 實驗證據:雞胚神經嵴切除模型中,圓錐動脈幹缺陷的盛行率非常高,並伴副甲狀腺、甲狀腺與胸腺發育異常。
TBX1 的角色
- 較近期的小鼠模型指出 TBX1 是單一基因缺陷,可模擬人類 DiGeorge 表型。
- 同型合子突變:第三、四、六咽弓消失,胚胎致死,並造成大多數心臟外缺陷,以及耳、顎、咽異常。
- 異型合子突變(類比人類疾病狀態):疾病表現較多變。
- 但單獨的 TBX1 突變在臨床 DiGeorge 症候群中似乎非常罕見,多數病人有較大的百萬鹼基級缺失。
- TBX1 是對次級心區正確圖樣化及併入心臟至關重要的轉錄因子。重要的是,TBX1 不在神經嵴細胞表現,卻對神經嵴與次級心區的交互作用不可或缺。
- 顯然還有其他修飾基因對圓錐動脈幹缺陷的致病很重要,特別是 Wnt 因子、BMP 抑制因子 Smad7 與視網酸(retinoic acid)訊號基因。
- 小鼠模型中 TBX1 過度表現也與圓錐動脈幹缺陷相關,顯示流出道正常發育需要 TBX1 維持在關鍵濃度。
主動脈與肺動脈的分離 Separation of Aorta and Pulmonary Artery
- 圓錐重塑期間,動脈幹段也在分隔:動脈幹墊正常以螺旋方式融合。
- 螺旋的走向:
- 在房室瓣高度,新形成的肺動脈位於主動脈正前方。
- 沿流出道往前,隨螺旋延伸,兩者變成較左右並列。
- 主動脈弓向左時,近端橫弓從肺動脈前方通過,完成 180 度螺旋(Fig. 45.6E)。
- 這個旋轉不只涉及動脈幹墊,也涉及心肌管。
- 若 180 度旋轉未發生或不完全,結果是大動脈轉位(transposed great arteries),定義為主動脈瓣在肺動脈瓣前方。
- 瓣膜左右方向最常保留(主動脈偏右),但可在 90 度範圍內變化:從正前後到正側並。
- L 型轉位(主動脈偏左)最常與 L-looped 心室或異位症候群相關,在單獨的轉位中罕見。
- 轉化生長因子–β(TGF-β)訊號在正常發育中對左右圖樣化、細胞外基質重塑等多種過程都重要;在小鼠模型與人類疾病中,似乎都在此過程扮演重要角色。
心臟瓣膜的形成 Cardiac Valve Formation
從心內膜墊到瓣葉 From Cushion to Leaflet
- 瓣膜發育於妊娠第 7 週隨心內膜墊開始,但成熟的房室瓣(僧帽瓣、三尖瓣)與半月瓣(主動脈瓣、肺動脈瓣)要花數週才完成。
- 心內膜墊增大後突入心臟與流出道管腔(Fig. 45.7A);在持續血流下,這些突起會凝縮並拉長(Fig. 45.7B)。
- 覆於墊上的心內膜細胞增生緩慢;其下間質細胞發生計畫性細胞死亡(apoptosis),同時有神經嵴細胞流入。
- 瓣葉與細胞外基質經歷廣泛重塑。半月瓣的重塑一路持續到妊娠最後一個孕期並進入新生兒期。
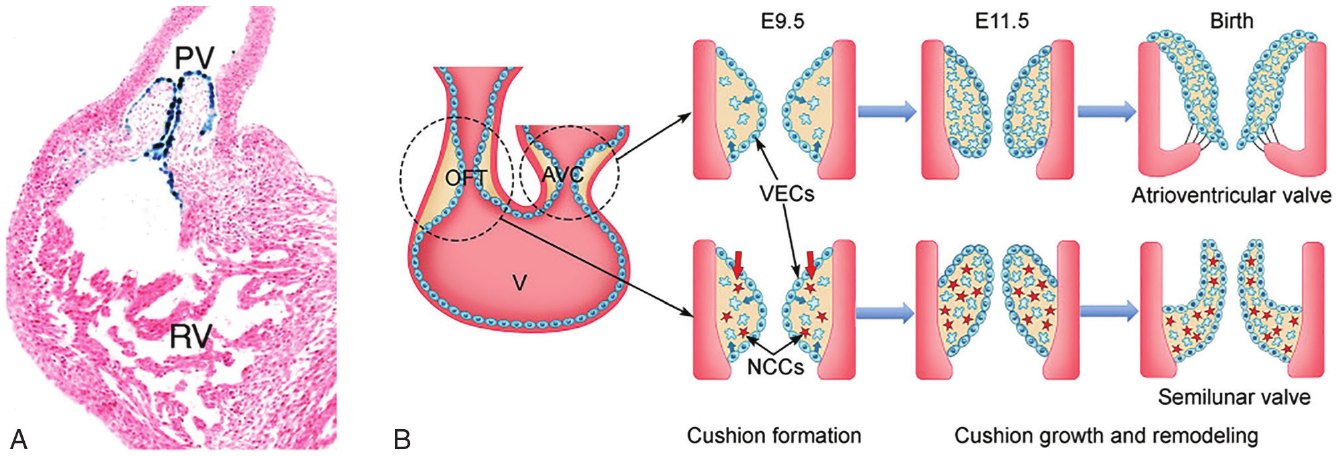
Fig. 45.7B 的讀法
- 兩條路徑都從墊形成開始:瓣膜心內膜細胞經上皮–間質轉化進駐墊內。
- 差別在於流出道的墊另有遷入的神經嵴細胞,圖中以星形標示;房室管的墊沒有這類標示。
- 之後進入墊的生長與重塑,到出生時分別成為房室瓣與半月瓣;圖的時序與內文「成熟需時數週,半月瓣重塑持續到新生兒期」一致。
瓣膜臨床異常與 Noonan 症候群 Clinical Valve Abnormalities and Noonan Syndrome
- 臨床瓣膜疾病常見,通常與瓣葉生長、成熟過程未完成有關,使瓣葉不成熟、增厚,無法正常開啟及/或關閉。
- Noonan 症候群:心臟畸形包括發育不良的肺動脈瓣(dysplastic pulmonary valve),全身特徵為身材矮小、顏面異常,並有骨髓增生性疾病(myeloproliferative disease)風險。
- 家族連鎖研究提示第 12 對染色體上的候選基因 PTPN11,其編碼 SHP-2,是對生長因子、細胞激素與荷爾蒙都重要的訊號分子;另也已發現其他致病等位基因。
- 人類突變已證實會造成 SHP-2 蛋白過度活化,提示 Noonan 症候群的致病機轉為功能獲得(gain of function),這與較熟悉的「蛋白功能喪失致病」概念不同。
- 同樣地,Notch1 受體及 Notch 訊號路徑多種成分的突變,已發現與主動脈瓣形成及多個心臟發育階段相關。
心室與心室中隔的發育 Development of the Ventricles and Ventricular Septum
肌部中隔的生長 Growth of the Muscular Septum
- 心室中隔大部分是肌肉,由心室肌從原始心室頂端突入心室腔而成;因此早期分隔中的心室呈雙葉狀(Fig. 45.8A)。
- 中隔向上延伸後,分隔幾乎完成(Fig. 45.8B)。
- 中隔如何這麼快長成左右心室之間的牆,仍有爭議。部分答案似乎是這些肌細胞快速增生——它們即使已是工作心肌,仍保有分裂能力。
- 這種能力在出生後不久便喪失,成熟心肌大致上無法增生。
小型肌部 VSD 的流行病學
- 小型肌部 VSD 在新生兒非常常見。一項篩檢無症狀新生兒的研究發現,發生率為每 1000 名新生兒 53 例。
- 其中僅 1/10 在身體檢查有 VSD 的徵象。
- 近九成小型缺損在 10 個月大前閉合。
- 這些及其他資料提示,人類心室在出生後仍持續低度增生。
由心內膜墊完成的部分 Regions Completed by Cushions
- 中隔主體從心室頂端長出,但有兩個重要區域由心內膜墊完成:
- 房室心內膜墊形成鄰近房室瓣的後部中隔。
- 圓錐墊形成大動脈下方的圓錐中隔。
左右心室的差異 Left Versus Right Ventricle
- 左右心室不僅相對位置不同,基本肌肉結構與功能也不同。
- 每個心室功能上可分為流入區與流出區;右心室另有圓錐段,因此稱三部分心室(tripartite ventricle)。
- 成熟心臟中,左心室是連接體循環壓力的高壓系統,右心室連接壓力較低的肺循環。
- 左心室的形態呼應功能:肌原纖維呈同心環狀,收縮時帶輕微扭轉,能有效射血。
肉柱化與緻密化 Trabeculation and Compaction
兩個心肌成形過程
- 肉柱化(trabeculation):肌肉組織向心室腔突出,內表面由平滑變為嵴狀。受心內膜到心肌的訊號調控,形式為 Tie2 與視網酸訊號;其他已顯示有角色的基因因子包括 Notch 1、Neuregulin 與 Bmp10。
- 緻密化(compaction):肌細胞由未成熟心肌中隨機、鬆散的排列,整列成成熟心肌中緊密協調、作為一個單位運作的肌束。
- 左心室緻密化不全(non-compaction of the LV):臨床上呈「海綿狀」心肌,愈來愈被視為一種心肌病變,但也可能完全無症狀。與調控細胞週期的基因相關,包括致癌基因 N-myc。
心房與心房中隔的發育 Development of the Atria and Atrial Septum
原發中隔與繼發中隔 Septum Primum and Septum Secundum
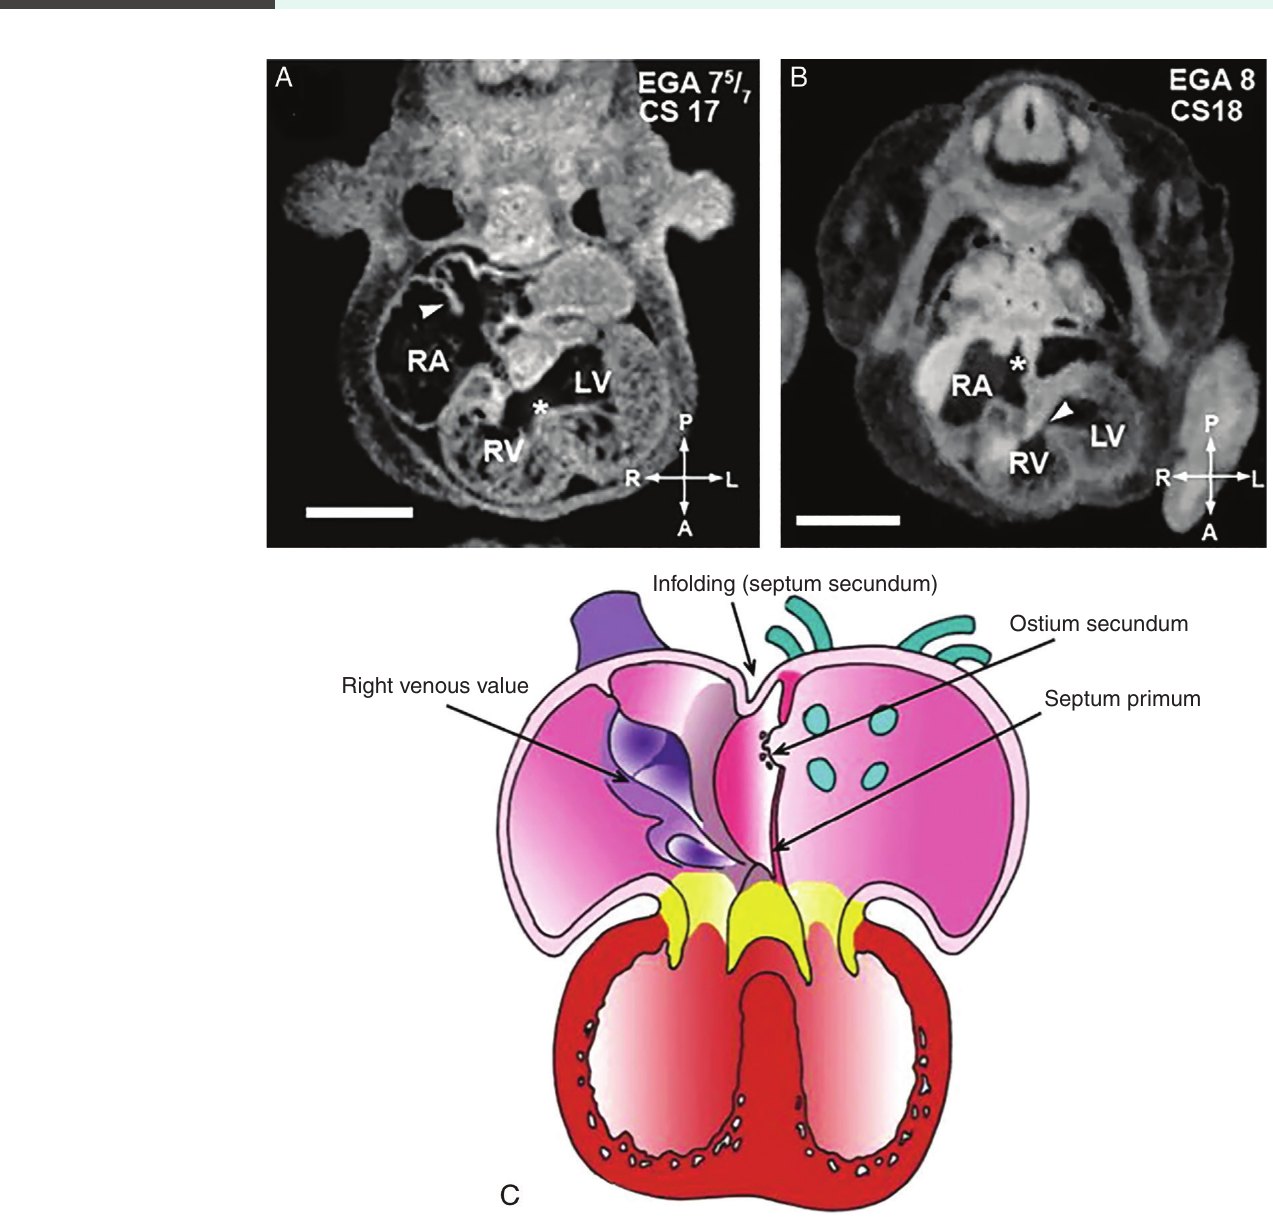
- 原發中隔(septum primum)和心室中隔一樣,起於後方中線的肌肉嵴,擴展後把含靜脈竇開口的右側心房與含共同肺靜脈開口的左側心房分開,朝融合中的房室墊生長(Fig. 45.8A,箭頭)。
- 房室墊融合的房室墊將形成心房中隔下部(Fig. 45.8B,星號)。
- 繼發孔(ostium secundum)在原發中隔與墊完成分隔之前,原發中隔上出現小穿孔,逐漸擴大並融合(Fig. 45.8C)。
- 繼發中隔(septum secundum)不久後,在原發中隔的右心房側形成新的新月形中隔,沿原發中隔延伸。
- 胎兒期由右心房流向左心房的血流,阻止這兩片中隔融合。
- 繼發中隔比原發中隔硬得多;原發中隔像瓣片般掀開,讓右向左血流持續。
- 出生後與低阻力的胎盤分離,左心房壓力顯著上升,心房分流反轉。
心房中隔缺損的類型 Types of Atrial Septal Defects
- 原發孔型 ASD(primum ASD):墊未形成心房中隔最下部(Fig. 45.8C,黃色)。不會自行閉合;可合併其他心內膜墊缺損,最常見為僧帽瓣裂隙。
- 靜脈竇型 ASD(sinus venosus ASD):上、下腔靜脈交接處附近對心房中隔有小部分貢獻(Fig. 45.8C,紫色),此過程缺陷所致,分上型或下型。同樣源於心房中隔組織不足,不會自行閉合。
體靜脈與肺靜脈的發育 Systemic and Pulmonary Vein Development
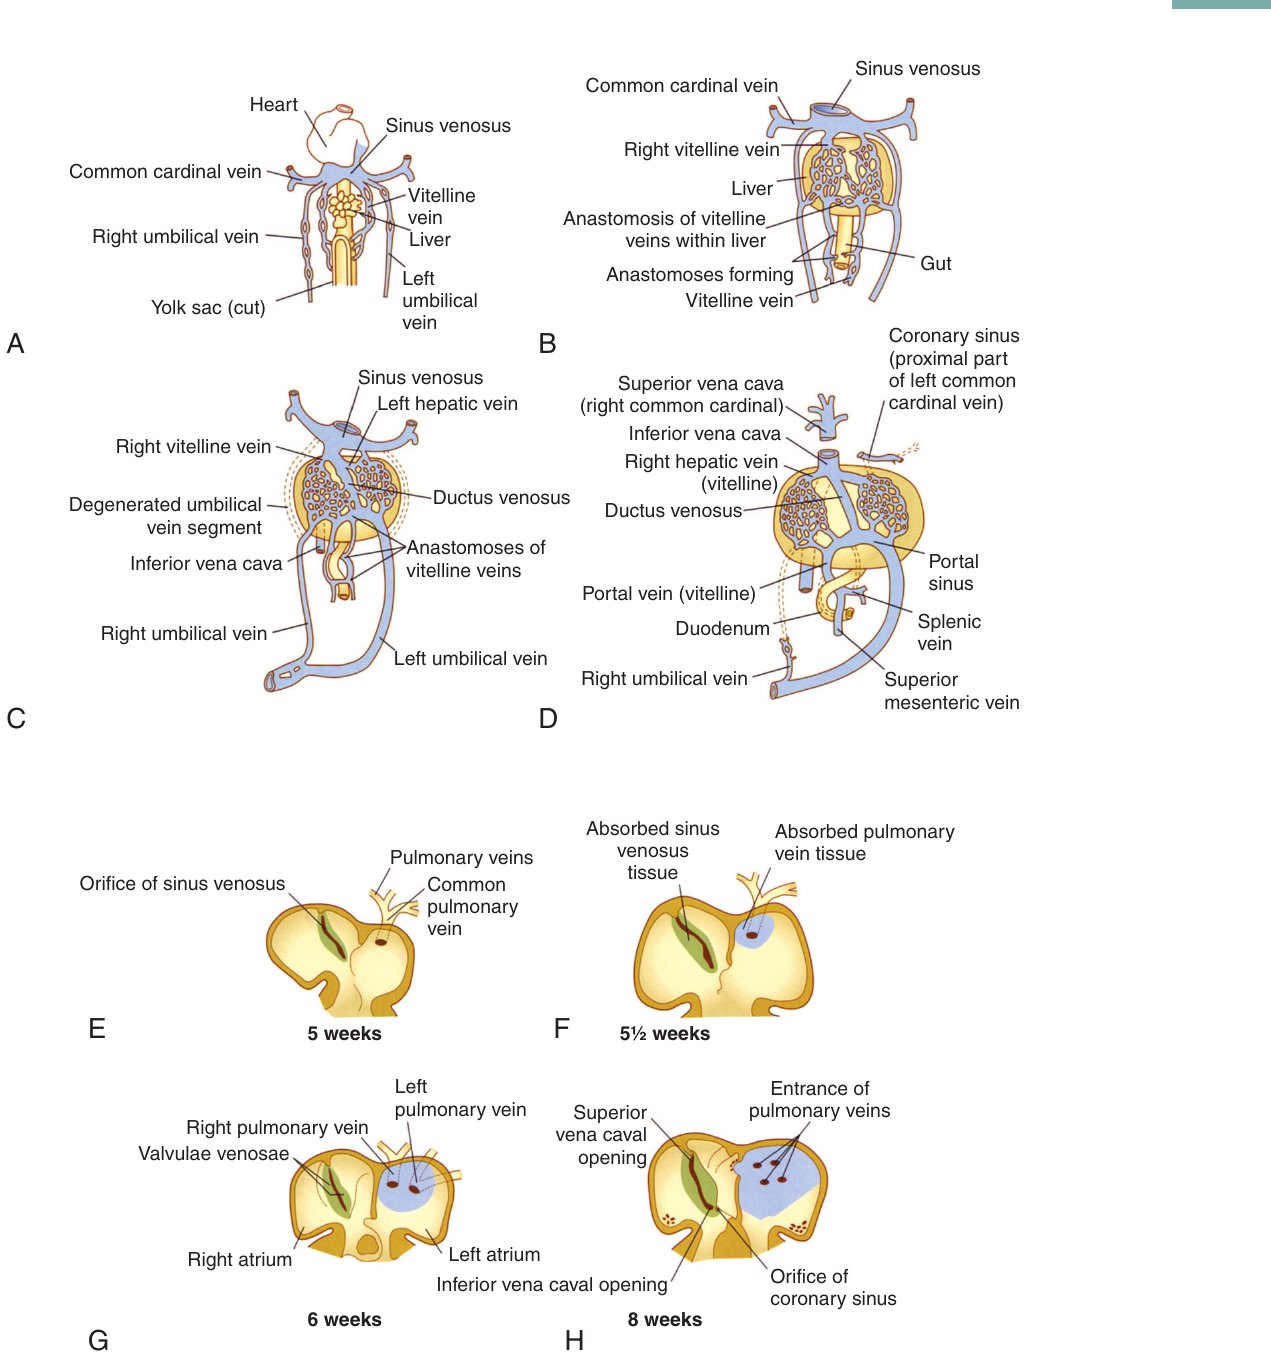
原始心管的靜脈竇是對稱結構,接受三組成對(左右)體靜脈:卵黃靜脈、臍靜脈與總主靜脈(Fig. 45.9A),這是妊娠 4–5 週時的狀態。
卵黃靜脈 Vitelline Veins
- 由卵黃囊回流;卵黃囊經卵黃管(vitelline duct)與原始腸道相通。
- 卵黃管正常完全退化,偶有殘餘可見為梅克爾憩室(Meckel diverticulum)。
- 遠端隨卵黃管退化;近端在 6 週時失去與靜脈竇的連接。
- 中段則在肝內擴張,貢獻於肝靜脈與門靜脈,並為下腔靜脈貢獻一小段。
臍靜脈 Umbilical Veins
- 由胎盤攜帶含氧血回流,最早發育,妊娠 3 週時已出現。
- 肝臟發育時,臍靜脈與肝靜脈叢建立連接,而與靜脈竇的連接退化。
- 胚胎外的臍帶內,左右臍靜脈融合為一,因此新生兒只有單一條臍靜脈。
- 胚胎內左右段維持分開;左臍靜脈經新形成的通道——靜脈導管(ductus venosus)——連到右肝靜脈(Fig. 45.9C、D)。此循環在妊娠第 7 週形成。
- 臍靜脈的含氧血回到右心房,主要導向心房中隔,因此主要經卵圓孔(foramen ovale)進入左心房與體循環。
主靜脈系統與冠狀竇 Cardinal Veins and Coronary Sinus
- 主靜脈(cardinal veins)攜帶胚胎本體的靜脈回流。左右總主靜脈是接到靜脈竇的較短節段;每側由前、後主靜脈匯合而成:前主靜脈收上半身回流,後主靜脈收下半身回流。
- 右前主靜脈與右總主靜脈成為成熟循環的上腔靜脈。
- 左總主靜脈與靜脈竇左段形成冠狀竇(coronary sinus),接受冠狀系統的靜脈回流。
- 下腔靜脈形成時這些結構被拉向右方,所以心房分隔完成後,冠狀竇開口(os)位於右心房。
下腔靜脈與中斷 Inferior Vena Cava and Interruption
- 下腔靜脈較複雜,由五個節段組成:來自泌尿生殖、腸繫膜與肝靜脈通道,在脊柱右側融合,而左側的成對對應結構退化。
- 由於參與血管眾多,有時會在不同節段中斷。最常見於異位症,但也可單獨發生。
- 中斷時,連接上、下半身靜脈系統的兩條主要血管之一通常會擴大,承接血流分流入上腔靜脈:
- 奇靜脈(azygous vein):偏右,由下腔靜脈腎上段走到上腔靜脈。
- 半奇靜脈(hemiazygos vein):偏左,路徑較迂迴,由左側腰靜脈與腎靜脈上行入胸腔,再轉向右加入奇靜脈。
- 因此下腔靜脈中斷通常伴有奇靜脈或半奇靜脈延續至上腔靜脈。
肺靜脈 Pulmonary Veins
- 肺靜脈由發育中的肺血管逐步長入,起初是來自兩肺的共同肺靜脈(common pulmonary vein),與左心房後壁融合。
- 心房擴張時,共同肺靜脈愈來愈被吸收進後壁,先有兩條、再有四條遠端分支各自入房:左肺兩條、右肺兩條(Fig. 45.9E–H)。
- 心管原本的心房段在成熟心臟並非功能性心房的一部分,而是歸入左右心耳(atrial appendages)。
主動脈弓的發育 Aortic Arch Development
- 原始心管連到主動脈囊(aortic sac)——升主動脈的前身——一形成就開始把血液打向發育中的胚胎體循環。
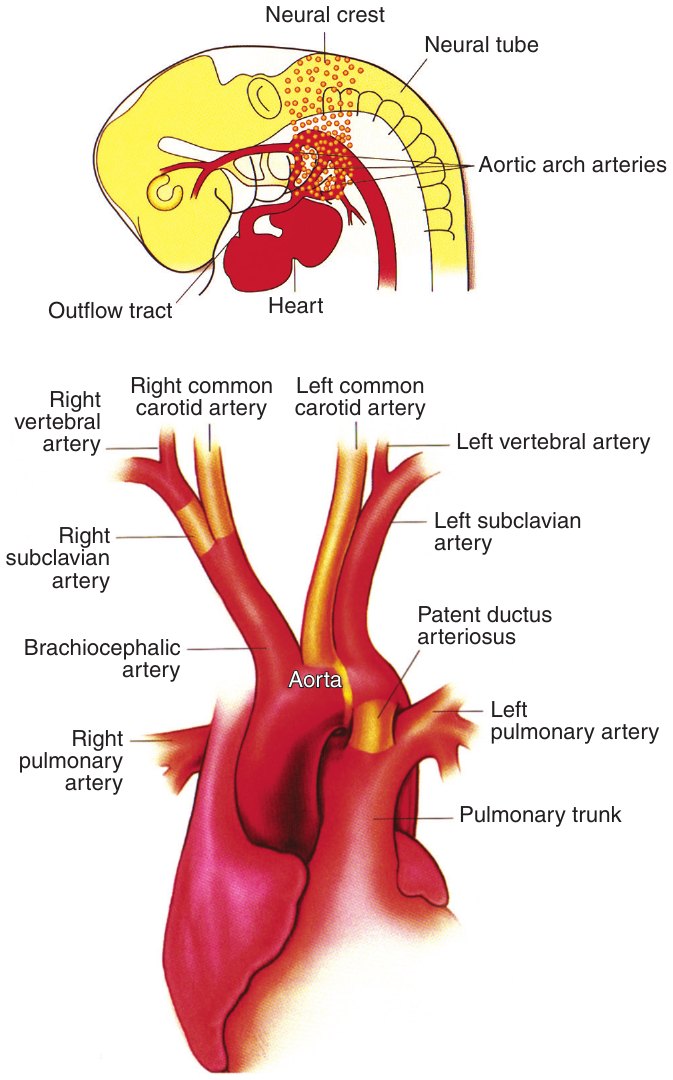
- 主動脈囊經主動脈根向後連到成對背主動脈,主動脈根給出一系列弓,即鰓弓(branchial arches)(Fig. 45.10)。神經嵴沿這些弓遷入圓錐動脈幹,並支持弓動脈的發育。
- 這些同樣是成對結構,共六對,但不會同時全部開通。
| 弓 | 命運 |
|---|---|
| 第 1、2 弓 | 大多完全退化,部分貢獻於顏面動脈 |
| 第 3 弓 | 不以弓的形式留存,貢獻於左右頸動脈(Fig. 45.10:部分留存為左右總頸動脈) |
| 第 4 弓左支 | 與主動脈根保持連續,共同構成真正的主動脈弓及其第一分支——頭臂(無名)動脈 |
| 第 4 弓右支 | 成為右鎖骨下動脈的一部分,保留與頭臂動脈的近端連接 |
| 第 5 弓 | 小,從未完全發育 |
| 第 6 弓 | 隨發育中的肺動脈血管形成,構成近端左右肺動脈與動脈導管 |
- 弓的重塑在妊娠 7 週前完成。
- 右主動脈弓合併鏡像分支(right aortic arch with mirror-image branching):有時(單獨發生或作為其他心臟缺陷的一部分)第 4 弓右支保持開通,左支則形成左鎖骨下動脈。
- 動脈導管弓在整個胎兒期持續存在,是另一條右向左分流途徑:讓右心室血液繞過肺循環,進入降主動脈。
冠狀動脈 Coronary Arteries
原位形成 Formation In Situ
- 多年來認為冠狀動脈從升主動脈「長芽」後爬過心臟表面,現已知這並不正確。
- 冠狀動脈是在心肌內原位形成,再連到主動脈內由動脈幹周圍微血管形成的冠狀幹(coronary stem)。
血管細胞的來源 Cellular Sources
- 前心外膜器官(Fig. 45.5A):與靜脈竇緊鄰,兩群細胞間似有部分移動。它是短暫結構,以上皮形式擴展於心臟表面,形成心外膜。
- 早期雞胚譜系追蹤提示,大多數冠狀動脈(內皮與平滑肌)都來自心外膜。
- 較新研究顯示這對平滑肌成立,但內皮來源較複雜:小鼠詳細的基因轉殖譜系追蹤顯示,心內膜與靜脈竇有重要貢獻。
- 心內膜來源細胞:從心臟內表面侵入心肌,向心外膜面遷移,分化為冠狀動脈內皮細胞。
- 靜脈竇來源細胞:在心外膜下空間遷移擴展,以與心外膜不同的族群侵入心肌。
- 更複雜的是,此過程在心室肌各處並不一致:心室中隔內的冠狀血管,形成方式似乎與心室游離壁不同。
連接主動脈與異常起源 Connection to the Aorta and Anomalous Origin
- 無論來源為何,冠狀血管都會形成、生長並彼此融合為可運作的血管網,時間上對應心室的生長與肉柱化。
- 心肌愈來愈複雜、增厚後,單靠心腔內血液擴散養分已不足;此時冠狀動脈叢長入主動脈瓣正上方的主動脈。
- 神經嵴、心外膜來源細胞,以及近期發現的主動脈內心肌細胞(intra-aortic cardiomyocytes)的訊號,似乎都有重要的引導作用。
- 偶爾此過程出錯:一條冠狀動脈(通常是左冠狀動脈)接到肺動脈而非主動脈。
- 胎兒期不傷害心肌:胎兒處於低氧狀態,主動脈與肺動脈的氧分壓差異很小。
- 出生後則迅速缺血,於嬰兒期造成心肌梗塞。
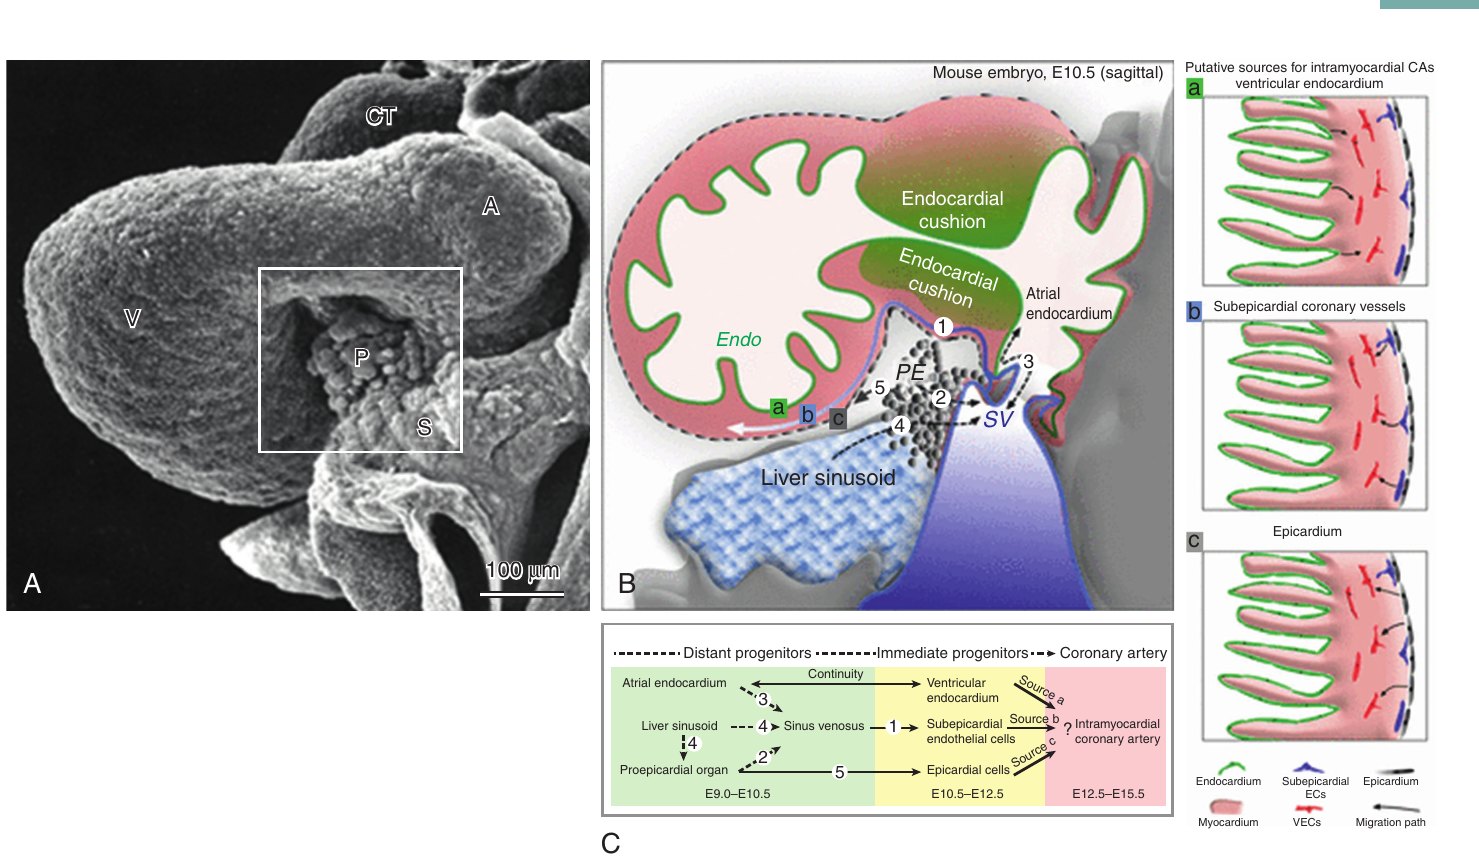
Fig. 45.11C 圖內路徑整理(小鼠胚胎)
- E9.0–E10.5,遠端前驅細胞:心房心內膜、肝竇(liver sinusoid)、前心外膜器官;圖中標示其往靜脈竇的路徑,肝竇也有路徑通往前心外膜器官。
- E10.5–E12.5,直接前驅細胞:與心房心內膜相連續的心室心內膜、由靜脈竇而來的心外膜下內皮細胞、由前心外膜器官而來的心外膜細胞。
- E12.5–E15.5:心肌內冠狀動脈;三個來源(a 心室心內膜、b 心外膜下冠狀血管、c 心外膜)在圖中標為推定來源(putative sources),並附問號,與內文「來源複雜」的語氣一致。
傳導系統 Conduction System
心房與心室的電隔離 Atrioventricular Isolation
- 原始心管的房室管心肌不會留存到成人心臟;成熟心房與心室之間沒有肌肉連接。
- 心房與心室肌的隔離,似乎發生在房室溝的心外膜與其下發育中的心內膜墊建立連續之時;這沿著房室管心室緣全程發生。
- 心房與心室之間唯一留存的連接在傳導系統內,即房室結。
- 偶有肌肉橋殘留成為副傳導肌束(accessory muscle connections),可作為心律不整的基質,具臨床重要性(具體為房室迴旋性心搏過速,AV reciprocating tachycardia,一種常見的上室性心搏過速)。
傳導細胞的分化 Differentiation of Conduction Cells
- 譜系追蹤顯示,傳導系統細胞由心肌細胞原位分化。
- 有證據顯示,發育中的冠狀血管是這種轉分化(transdifferentiation)的訊號來源;傳導系統傾向沿冠狀血管發育。
- 傳導系統肌細胞表現不同的標記與細胞連接,動作電位型態也不同,因而具自動性(automaticity)。
竇房結 Sinoatrial Node
- 正常情況下,當心臟的主導節律點——竇房結——形成後,其餘傳導系統的自動性受到抑制。
- 早期雞胚譜系追蹤顯示,竇房結來自原發與次級心區以外的一群心臟中胚層,在心臟內靠近右竇角(right sinus horn)處匯聚。
- 雞胚心臟活化圖顯示,原始竇房結在環化後不久開始作用;在此之前最早活化的位置其實在左竇角。
結語 Conclusion
- 本章回顧心臟形成與重塑時的型態、細胞生物學、遺傳與生理,這些面向都仍在快速進展。
- 新技術讓人類心臟發育得以愈來愈早被看見:心臟 MRI 近來可早到妊娠第 6 週,心臟超音波可到第 10–11 週。
- 新的基因技術讓動物模型所學得以應用到人類,也能以愈來愈高的特異性在動物模型重現人類疾病。
- 共同目標:及早辨識先天性心臟畸形、可行時預防,以及以最先進的介入讓異常心臟盡可能正常運作。
- 目前介入以外科手術與心導管為基礎,並持續演進。未來可能加入基因治療、心臟幹細胞移植與體外組織工程。
統整一:發育時間總表 Summary Timeline
以下週數照錄本章各處寫法。原文的週數基準不完全一致,詳見章末「閱讀時請留意」。
| 時間(原文寫法) | 事件 |
|---|---|
| 受精後 3 週(末次月經後約第 5 週) | 心臟中胚層融合成心管 |
| 妊娠 3 週 | 臍靜脈已發育,為最早出現的一組靜脈 |
| 妊娠 23 天(末次月經後第 6 週初) | 心區融合,心臟開始跳動 |
| 妊娠第 4–5 週 | 心臟環化;靜脈竇接受三組成對體靜脈 |
| 前 6 週 | 卵黃囊是造血細胞的唯一來源 |
| 6 週 | 心內膜墊隆起出現;卵黃靜脈近端失去與靜脈竇的連接 |
| 第 6–7 週 | 流入與流出結構重新對齊並分隔 |
| 第 7 週 | 瓣膜發育隨心內膜墊開始;靜脈導管循環形成;主動脈弓重塑完成;心臟成形(末次月經後 9 週) |
| 第二孕期起 | 骨髓逐漸有造血細胞進駐 |
| 最後一個孕期至新生兒期 | 半月瓣持續重塑 |
| 出生時 | 骨髓成為血球主要來源;左心房壓上升,心房分流反轉 |
| 出生後不久 | 心肌細胞分裂能力喪失(原文另提示仍有低度增生) |
| 10 個月大前 | 近九成新生兒小型肌部 VSD 閉合 |
統整二:基因與訊號分子 Summary of Genes and Signals
| 分子 | 角色 | 異常時的表型 |
|---|---|---|
| Mesp1 | 最早的心肌譜系標記;多能性與分化的開關;第二波表現發出次級心區遷移訊號 | 原文未述 |
| Wnt | 原結處阻斷分化、促進增生與遷移 | 列為圓錐動脈幹缺陷的修飾因子之一 |
| BMP | 控制心臟中胚層分化成心肌細胞 | BMP 抑制因子 Smad7 列為修飾基因 |
| GATA4 | 修飾染色質、結合啟動子增強轉錄;招募 TBX5 | 與 NKX2.5、TBX5 互相依賴且部分重複 |
| TBX5 | 原發心區肌肉基因調控 | 小鼠左心室發育異常;人類 ASD、傳導缺陷、肢體異常,也可能與左心發育不全症候群相關 |
| shh、FGF8 | 濃度梯度建立左右不對稱 | 梯度改變導致異位症 |
| nodal、lefty、pitx-2 | 左側性標記 | 梯度改變導致異位症 |
| Tbx1 | 次級心區標記;協調動、靜脈兩端遷移;影響神經嵴與次級心區交互作用 | 流出道缺陷;同型合子小鼠第三、四、六咽弓消失;過度表現也有圓錐動脈幹缺陷 |
| islet 1、Mef2c、Tbx20、Fgf 8、Fgf 10 | 次級心區特徵基因 | 小鼠剔除造成流出道缺陷 |
| Hand1、Nkx2-5、Tbx5、Gata4、Mef2 | 次級心區細胞進入流出道後表現的心肌標記 | 右心室發育不全、流出道異常,包括法洛氏四重症 |
| TGF-β | 左右圖樣化、細胞外基質重塑 | 似與大動脈分隔旋轉異常有關 |
| PTPN11/SHP-2 | 生長因子、細胞激素、荷爾蒙訊號 | 過度活化,Noonan 症候群(功能獲得) |
| Notch1 路徑 | 主動脈瓣形成及多個心臟發育階段 | 突變與上述過程相關 |
| Tie2、視網酸、Notch 1、Neuregulin、Bmp10 | 肉柱化 | 原文未述 |
| N-myc | 細胞週期調控相關基因 | 左心室緻密化不全 |
統整三:胚胎結構與缺陷對照 Embryologic Structures and Defects
| 發育步驟 | 出錯時 |
|---|---|
| 環化方向 | L-looping;先天矯正型大動脈轉位 |
| 左右訊號 | 異位症候群、右/左同形、無脾/多脾 |
| 流入與流出段重新對齊 | 左心室雙入口、右心室雙出口 |
| 房室墊融合 | 僧帽瓣裂隙、部分型與完全型房室管、原發孔型 ASD |
| 圓錐動脈幹分隔與旋轉 | 永存動脈幹、主動脈弓中斷、法洛氏四重症、右心室雙出口、大動脈轉位 |
| 神經嵴與次級心區交互作用 | DiGeorge 症候群的圓錐動脈幹與主動脈弓缺陷 |
| 瓣葉生長成熟 | 瓣葉不成熟、增厚;Noonan 症候群的發育不良肺動脈瓣 |
| 肌部中隔生長 | 小型肌部 VSD |
| 緻密化 | 左心室緻密化不全 |
| 靜脈系統退化與融合 | 雙側上腔靜脈、下腔靜脈中斷合併奇或半奇靜脈延續;梅克爾憩室為卵黃管殘餘 |
| 主動脈弓重塑 | 右主動脈弓合併鏡像分支 |
| 冠狀動脈與主動脈連接 | 冠狀動脈(通常為左側)接到肺動脈 |
| 房室肌肉隔離 | 副傳導肌束、房室迴旋性心搏過速 |
臨床反思:NICU 視角 Clinical Reflection—NICU Perspective
臨床上可帶走的重點
- 用發育步驟理解病灶:環化方向與側性 → 異位症、先天矯正型轉位;心內膜墊融合 → 部分型/完全型房室管、原發孔型 ASD;圓錐中隔偏移與旋轉 → 法洛氏四重症、主動脈弓中斷、右心室雙出口、大動脈轉位。
- 脾臟狀態提示合併缺陷的型態:無脾/右同形常伴單一心室、肺動脈阻塞、雙側上腔靜脈與肺靜脈回流異常;多脾/左同形常伴心內膜墊缺損、左側阻塞性病灶與下腔靜脈中斷合併奇靜脈延續。
- 異位症時不能只靠靜脈回流定義心房:肺靜脈或體靜脈都可能回流到兩個心房。
- 圓錐動脈幹缺陷要想到心臟外表現:DiGeorge 症候群同時涉及副甲狀腺、甲狀腺與胸腺發育。
- 新生兒小型肌部 VSD 很常見:每 1000 名新生兒 53 例,僅 1/10 有身體檢查徵象,近九成在 10 個月大前閉合。相對地,原發孔型與靜脈竇型 ASD 不會自行閉合。
- 冠狀動脈異常起源於肺動脈:胎兒期不傷害心肌,問題在出生後才迅速出現,於嬰兒期造成缺血與心肌梗塞。
- 上室性心搏過速的發育基礎:房室隔離未完全時殘留的肌肉橋,可成為房室迴旋性心搏過速的基質。
- Noonan 症候群的發育不良肺動脈瓣屬瓣葉生長成熟不全的類型,致病機轉為功能獲得,並有骨髓增生性疾病風險。
閱讀時請留意 Points to Verify
原文內部不一致
- 週數基準混用:內文寫成熟心臟「gestational week 7(或末次月經後 9 週)」,Key Points 則寫「9 weeks' gestation」。同一章的「妊娠週」有時指受精後、有時可能指末次月經後,圖中又用 EGA 標示;閱讀各時間點時請留意基準。
- Fig. 45.3B 與內文時序:內文說心區融合與開始跳動約在妊娠 23 天,環化在第 4–5 週;但 Fig. 45.3B 在 21 天已畫出環化中的心管。
- 瓣膜與心內膜墊的起始時間:內文一處寫心內膜墊於 6 週出現、房室與流出道的分隔發生於第 6–7 週,另一處寫瓣膜發育「during week 7」隨心內膜墊開始。
- 完全鏡像的記法:內文對大動脈關係的定義只有 S、D、L,且 L 定義為異位;但完全鏡像(連接與生理正常)記為 (I,L,L),與先天矯正型 (S,L,L) 的第三碼相同。筆記照錄原文記法。
- 圖號疑誤:主動脈弓重塑一句標註「Fig. 45.11」,但該圖為冠狀血管來源;內容上對應的是 Fig. 45.10。
- 圖號範圍:主動脈與肺動脈螺旋順序一句僅引 Fig. 45.6E,而圖說中分隔過程是 E–H。
- Fig. 45.8A 標記:內文寫 arrow,圖說與圖中是 arrowhead;圖說的「intraventricular septum」依上下文應指心室之間的中隔。
- Fig. 45.11 圖說與內文:圖說稱「subendocardial ECs」來自靜脈竇,但圖中標示與內文都是心外膜下(subepicardial)。
- Fig. 45.2C 圖說與內文:圖說稱纖毛流造成 Nodal 表現梯度;內文說濃度梯度是 shh 與 FGF8;圖中另標出視網酸。
- 前心外膜的來源:Fig. 45.1A 畫成來自心臟中胚層,內文則說來源有爭議,主流理論之一為肝臟原基。
- Fig. 45.1A 與 SA 結來源:圖中傳導細胞列於第一、第二心區與前心外膜下;內文則說竇房結來自原發與次級心區以外的心臟中胚層(雞胚資料)。
- 冠狀內皮來源:「細胞類型」一節強調循環內皮前驅細胞,「冠狀動脈」一節則強調心內膜與靜脈竇,未提及循環前驅細胞。
- 出生後心肌增生:內文說分裂能力出生後不久喪失、成熟心肌大致無法增生,隨後又說資料提示出生後仍持續低度增生;兩者程度不同,宜一併理解。
- 疑似誤植:「Neural cells originate from the ectoderm」依上下文為神經嵴細胞;「chromatic structure」應為染色質結構;「NKZ2.5」應為 NKX2.5;「a transcription critical」漏 factor;「sinus venous」應為 sinus venosus;Fig. 45.1A「Outward tract septation」、Fig. 45.8C「Right venous value」、Fig. 45.6B「limb bub」為圖內拼字。筆記已依上下文解讀。
- 語意不清的句子:「In the original atrial segment the heart tube is not part of the functioning atria」文句有缺,筆記依上下文解讀為原心房段歸入心耳。Fig. 45.4 圖說在「(E, F) ... isomerism.」後另有一個孤立的「(F)」。