PART X · RESPIRATORY SYSTEM · CHAPTER 38
肺臟發育Lung Development
本章重點 Key Points
- 肺臟器官生成(lung organogenesis)分為五個階段,人類從胚胎第 25 天開始。
- 器官生成的各項機制,包括分支形態發生(branching morphogenesis)、牽張與機械訊號傳導(stretch/mechanotransduction)、肺泡化(alveolarization)、微血管成熟(microvascular maturation)與細胞分化,都仰賴轉錄調控下的細胞—細胞及細胞—細胞外基質訊號網路。
- 肺泡化與肺的生長主要發生在出生後,一路延伸到成年早期,讓表面積跟上持續成長的代謝需求。
- 肺發育程序一旦受到破壞,就會產生先天性肺部畸形。
- 從子宮內過渡到子宮外生活,需要表面張力素系統成熟,也需要肺部防禦系統發展完成,以對抗感染與環境傷害。
導論:肺的功能需求 Introduction
氣體交換對結構的要求 Structural Demands of Gas Exchange
- 主要功能:以氧氣交換二氧化碳,供應細胞有氧呼吸所需。
- 需求規模:成人耗氧量從休息時 250 mL/min 到運動高峰 2630 mL/min。
- 因應方式:需要大表面積與薄的肺泡微血管膜(alveolocapillary membrane),才能讓氧氣有效擴散;這項需求對氧氣比對二氧化碳更迫切。
- 成人的規模:氣體交換區最終達到表面積 50 至 100 m²、容積 2.5 至 3.0 L。
- 兩個條件要同時滿足:大表面積是攝氧的關鍵;肺泡到紅血球的擴散距離也要夠短,才利於二氧化碳釋出。
- 液體屏障:具保護性的水性屏障覆蓋脆弱的肺泡上皮,並與表面張力素(surfactant)協同,減輕表面張力與肺泡塌陷。
- 正常發育的結果:薄而寬廣的肺泡上皮表面,與貼近的微血管網交織在一起,完成氧氣與二氧化碳的交換。
與外界持續接觸帶來的防禦需求 Constant Contact With the External Environment
- 氣管、呼吸道與肺泡持續暴露於外界。每次吸氣都把大量微生物,以及可能有毒的微粒與氣體,直接帶到上皮表面。
- 因此器官生成也必須建立清除機制,處理可能造成上皮感染或傷害的微生物與過敏原。
- 肺還要防禦非微粒性的有害氣體。氧氣對細胞功能至關重要,卻可能生成有害的活性氧物質(reactive oxygen species),需要解毒;吸入的污染物同樣需要解毒。
- 這些功能能否正常發育與維持,對新生兒的健康與存活至為關鍵。
肺發育的關鍵事件 Key Events in Lung Development
- 人類肺臟器官生成在妊娠早期(第 25 天前)就開始,生長一路延伸到成年早期。
- 依序分為五個階段:胚胎期(embryonic)、假腺體期(pseudoglandular)、小管期(canalicular)、囊狀期(saccular)、肺泡期(alveolar)。各階段的時間點不太精確,彼此也可能有相當的重疊。
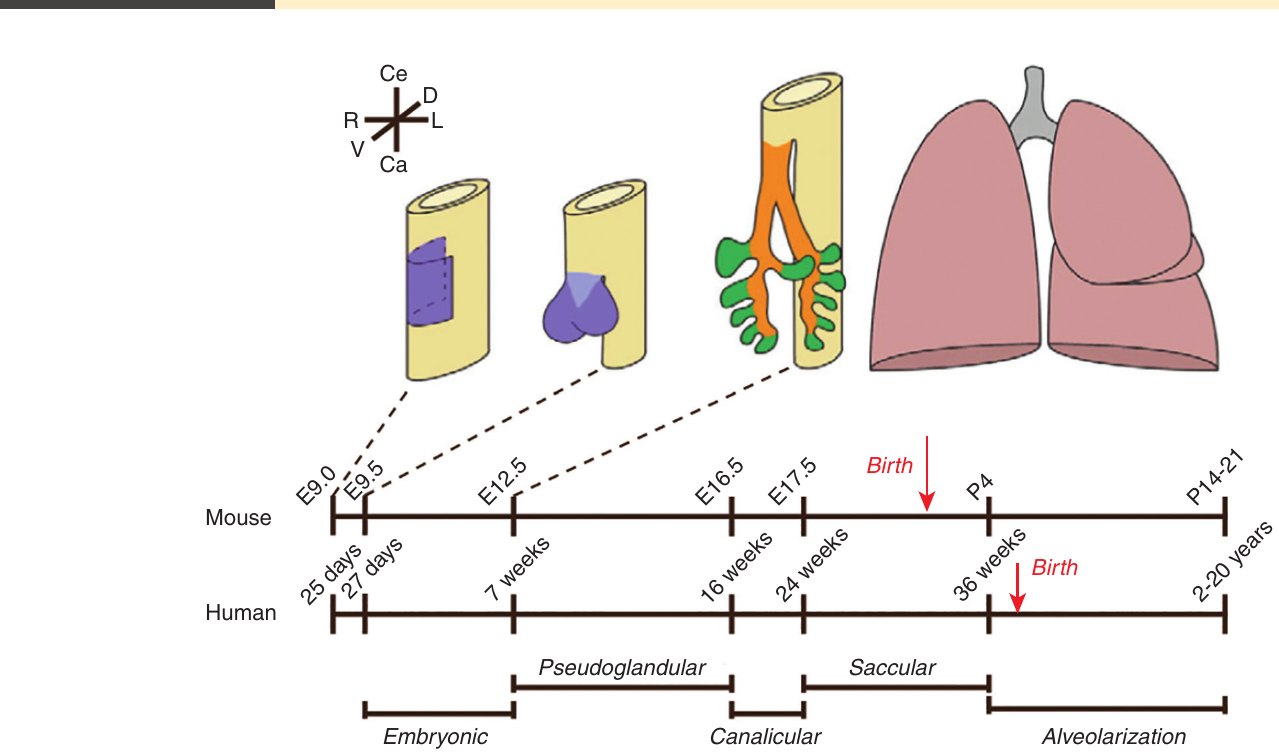
| 階段 | 時間(人類) | 主要事件 | 此階段出錯的後果 |
|---|---|---|---|
| 胚胎期 Embryonic | 第 25 天起(Fig. 38.1 標示至 7 週) | 肺芽形成、最初的分支;五個原始肺葉 | 氣管食道瘻管、氣管閉鎖、氣管狹窄;肺缺如 |
| 假腺體期 Pseudoglandular | Fig. 38.1 標示 7–16 週 | 持續分支;16 週末所有支氣管分支完成;胸腹膜皺襞於 7 週前閉合 | 先天性橫膈疝氣及肺發育不全 |
| 小管期 Canalicular | Fig. 38.1 標示 16–24 週 | 傳導呼吸道完成至終末細支氣管;形成肺腺泡;共 23 級分支 | 原文此處未列 |
| 囊狀期 Saccular | 24–38 週(內文);Fig. 38.1 標示 24–36 週 | 肺泡微血管膜約 24 週達足以氣體交換(0.6 μm);終末囊拉長變寬 | 原文此處未列 |
| 肺泡期 Alveolar | 最早 36 週起;Fig. 38.1 標示至 2–20 歲 | 真正肺泡出現;次級隔形成;出生後持續 | 見「疾病」與「肺泡化」各節 |
呼吸道與氣體交換面的發育 Development of Airways and Gas Exchange Surfaces
胚胎期 Embryonic Phase
- 特徵是肺芽(lung bud)形成與最初的分支事件。
- 肺芽最早可辨認的形態是前腸腹側的喉氣管溝(laryngotracheal groove),出現於人類妊娠 25 天。
- 肺芽由上皮與周圍間質(mesenchyme)組成,開始一連串二分叉分裂(dichotomous divisions)的第一次,產生傳導呼吸道及五個原始肺葉(人類左二、右三)。
胚胎期錯誤對應的畸形
- 喉氣管溝分離出錯:氣管食道瘻管(tracheoesophageal fistulae)、氣管閉鎖(tracheal atresia)、氣管狹窄(tracheal stenosis)。
- 最初分支未能形成:肺缺如(pulmonary agenesis),最常見於右肺。
假腺體期 Pseudoglandular Phase
- 分支持續進行。人類妊娠 7 週時,氣管、肺段支氣管與次肺段支氣管已可見;16 週末所有支氣管分支完成。
- 出生到成年之間,呼吸道的直徑與長度會增加 2 至 3 倍,但大呼吸道的分支在妊娠 16 週後即停止。
- 胸腹膜皺襞(pleuroperitoneal folds)閉合是此期的關鍵事件,於 7 週前完成,把胸腔與腹腔分開。
先天性橫膈疝氣(congenital diaphragmatic hernia)的發育機轉
- 胸腹膜皺襞未閉合,兩腔保持相通。
- 人類妊娠 10 週,中腸從臍帶回到腹腔時,腹部內容物疝入胸腔。
- 結構上的後果是橫膈缺損同側的肺發育不全(pulmonary hypoplasia),因腸道與實質臟器移入胸腔所致。
- 腹部臟器在胸腔累積使縱膈移位,肺發育不全也可能延伸到對側肺。
小管期 Canalicular Phase
- 傳導呼吸道完成至終末細支氣管(terminal bronchioles)。
- 終末細支氣管產生肺腺泡(pulmonary acinus),即初步的氣體交換單位,由一條呼吸性細支氣管及其所屬的肺泡管與肺泡組成。
- 一條終末細支氣管加上遠端所有腺泡構造,構成一個小葉(lobule)。
- 遠端氣腔的分支在此期較有限地繼續,最終共達 23 級呼吸道分支。
囊狀期 Saccular Phase(人類妊娠 24 至 38 週)
- 調整氣腔、微血管與間質的相對關係。約在妊娠 24 週,肺泡微血管膜已足以參與氣體交換(0.6 μm)。
- 過了這個時間點,氣體交換效率取決於可用的表面積。
- 終末囊(terminal sacs)拉長、變寬,擴大氣體交換面積。
- 每個小囊(saccule)是平滑壁的氣腔,間質較厚且含雙層微血管網。小囊會再產生 2 至 3 條肺泡管,進一步增加表面積。
- 這些腺泡構造的擴張持續到妊娠第三孕期後段。
肺泡期與出生後發育 Alveolar Phase and Postnatal Development
- 出生後的肺發育還可細分為其他階段。
- 人類胎兒最早在妊娠 36 週出現真正的肺泡,開啟肺泡期。
- 初級肺泡形成後,再藉由隔(septa),又稱次級嵴(secondary crests)的形成,進一步擴大氣體交換面積。
- 出生後肺泡化從足月延伸到 2 歲:
- 出生後前 6 個月為「大量肺泡化(bulk alveolarization)」。
- 此後到 2 歲,次級肺泡的增加較為緩和。
- 嬰兒的肺泡與成人不同:未成熟的次級肺泡有雙層微血管床,成人肺泡則為單層。
- 接下來的微血管成熟發生在出生後最初幾個月到 3 歲之間。
肺何時停止增加肺泡:仍有爭議
- 估計值從最早 2 歲到最晚 20 歲都有。
- 成年動物與人類在全肺切除(pneumonectomy)後可出現肺泡擴張,使問題更複雜。
- 微血管成熟之後仍增加肺泡,稱為晚期肺泡化(late alveolarization)。此現象最常見於胸膜下區域,可能動用了與次級嵴形成相似的機制。
增加肺泡以外的表面積擴張方式
- 人類肺泡化在生命最初 3 年逐漸減弱,但肺的生長仍持續擴大氣體交換面積。
- 2 歲到成年之間,肺組織隨肺容積擴張,與兒童體重增加成比例。
- 4 歲到青春期,肺容積增加的速度明顯超過體重,而肺泡化速度已放慢;這提示肺泡變大對兒童後期肺容積擴張有重要貢獻。
- 綜合產前發育、產後發育與肺生長,胎肺內建了很大的表面積擴張潛力,以因應嬰兒、兒童到成人的有氧呼吸需求。
- 尚待釐清:早產後(無論有無合併肺傷害)這些發育機制能被利用到什麼程度,仍在積極研究中,且依賴小鼠實驗資料外推。
呼吸道與肺泡的組成 Composition of Airways and Alveoli
- 分支形態發生進行時,呼吸道與肺泡上皮經分化(differentiation)產生各種特化細胞,負責氣體交換、表面張力素製造、黏液纖毛清除、解毒與宿主防禦。
- 分化先發生在近端氣腔,再往遠端進行,時間上落後於分支。
- 時間與環境脈絡的訊號共同促成上皮細胞類型的區域化。
近端呼吸道 Proximal Airways
上皮細胞
- 近端呼吸道上皮為高柱狀,往遠端逐漸變矮,趨近立方狀。
- 氣管與支氣管內襯四種上皮細胞:未分化柱狀細胞、纖毛細胞、分泌/杯狀細胞、基底細胞。
| 細胞 | 出現時間(人類妊娠) | 特徵與功能 |
|---|---|---|
| 多纖毛細胞 Multiciliated cells | 11–16 週加入未分化柱狀細胞之間 | 近端較多;頂端有多根可動纖毛,協調擺動以清除黏液 |
| 分泌細胞 Secretory cells | 最早 13 週 | 含黏液或漿液顆粒,或兩者皆有。含黏液顆粒者數量在妊娠中期達高峰,第三孕期下降 |
| 基底細胞 Basal cells | 未成熟型最早 12 週(表現表皮角蛋白) | 對受傷大呼吸道上皮的再生非常重要 |
軟骨支撐 Cartilaginous Support
- 4 週從原始氣管開始,呈離心方向進行
- 10 週到達主支氣管
- 約 25 週到達最遠端的終末細支氣管
- 出生後第 2 個月呼吸道的軟骨包覆完成
黏膜下腺 Submucosal Glands
- 位於軟骨組織與表面上皮之間,在呼吸道宿主防禦中扮演重要角色。
- 發育分為五個階段:上皮出芽並侵入固有層、形成管腔、開始管狀分支、反覆二分叉分支。
- 嬰兒與兒童的呼吸道,黏膜下腺相對比成人多。
- 腺體近端襯黏液細胞,遠端襯漿液細胞;漿液細胞占腺體上皮細胞總量的 60%。
- 漿液細胞分泌水、電解質,以及具抗微生物、抗發炎與抗氧化特性的蛋白質。
- 黏液細胞主要製造黏液素(mucins)。
- 除宿主防禦外,腺體內也有一群基底細胞,會在呼吸道受傷時補充上皮。
呼吸道平滑肌 Airway Smooth Muscle
- 最早在妊娠 6 至 8 週,氣管與大呼吸道周圍即可辨識平滑肌細胞。
- 胎兒呼吸道平滑肌有神經支配,在第一孕期即能收縮。
- 肌肉化程度在整個胎兒期與兒童期持續增加,相對於呼吸道大小,平滑肌的量比成人呼吸道多。
- 出生後支氣管平滑肌量立即快速增加,不論足月或早產都會發生。
肺神經內分泌細胞 Pulmonary Neuroendocrine Cells(PNECs)
- 分布於整個呼吸道,常在支氣管樹分支點形成有神經支配的細胞團,稱為肺神經上皮小體(neuroepithelial bodies, NEBs)。
- 雖源自前腸內胚層,其起源細胞與肺的其他上皮成分不同。
- 含大量緻密核心囊泡,內有神經胜肽,包括血清素(serotonin)與 calcitonin gene–related peptide/bombesin。
- 受牽張與缺氧刺激時釋放內容物,以調節支氣管張力。
- 近期證據顯示 PNECs 也可作為呼吸道感測器,觸發免疫反應。
- 與 PNEC/NEB 增生相關的病理狀況:支氣管肺發育不全(bronchopulmonary dysplasia, BPD);呼吸控制疾患(先天性中樞性換氣不足症候群、嬰兒猝死症);囊性纖維化;慢性阻塞性肺病;先天性橫膈疝氣;肺高壓。
- 嬰兒神經內分泌細胞增生(neuroendocrine hyperplasia of infancy)是罕見的嬰兒間質性肺病,伴隨 PNECs 與 NEBs 數量增加。
- 這些關聯雖強,但 PNECs/NEBs 在疾病中是原發角色或繼發反應,仍不清楚。
遠端呼吸道 Distal Airways
- 細支氣管上皮與近端不同:外觀較呈立方狀;纖毛細胞與杯狀細胞逐漸減少,到終末細支氣管完全消失。
- 非纖毛的分泌性棒狀細胞(club cell)沿傳導呼吸道往遠端數量與密度遞增,是終末細支氣管最多的細胞。
- 人類妊娠 16 至 17 週首次可見,起初含大量肝醣,之後由分泌顆粒取代。
- 妊娠 23 至 34 週,遠端細支氣管的棒狀細胞數量劇增。
棒狀細胞的功能
- 解毒與宿主防禦:在肺內大量製造細胞色素 P450(cytochrome P450)與黃素單氧化酶(flavin monooxygenases)。
- 免疫調節:在遠端呼吸道扮演重要角色。
- 重要的宿主防禦產物:棒狀細胞分泌蛋白(club cell secretory protein)、表面張力素蛋白 A(SP-A)與 D(SP-D)、白血球蛋白酶抑制劑(leukocyte protease inhibitor)、類胰蛋白酶(trypsin-like protease)。
- 製造前驅型表面張力素蛋白 B(SP-B),可能有助於宿主防禦。
- 分泌抗蛋白酶,提示其可調節遠端肺部的蛋白酶—抗蛋白酶平衡。
肺泡上皮 Alveolar Epithelium
分化過程
- 人類妊娠第 4 到第 6 個月,內襯腺泡的上皮細胞開始進一步分化。
- 立方上皮細胞累積大量肝醣,並發展出含鬆散板層的小囊泡。
- 肝醣是製造大量表面張力素磷脂的現成受質,隨胎肺表面張力素製造推進而縮小。
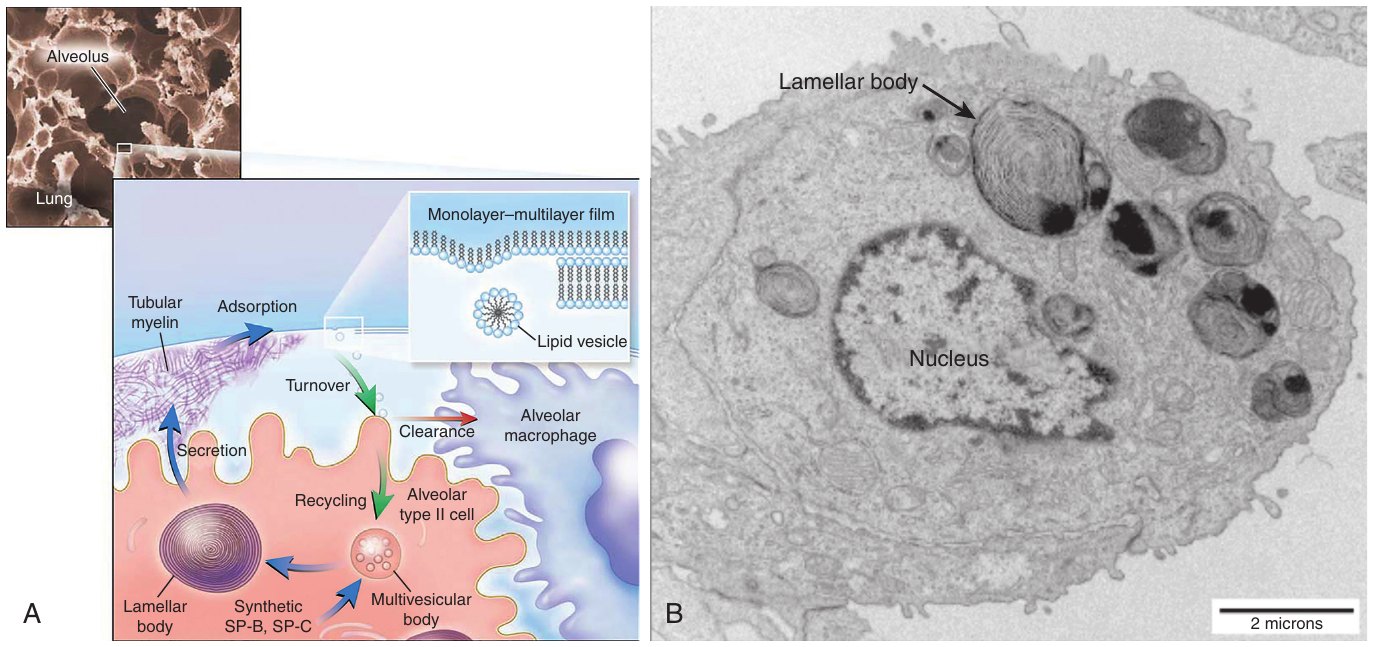
- 走向第 2 型細胞者:板層小體(lamellar bodies)變大、變多,更密集地裝填表面張力素磷脂與蛋白質。
- 走向第 1 型細胞者:失去板層前囊泡並逐漸變薄,形成較適合氣體交換的表型。
- 囊狀期早期,第 1 型與第 2 型肺泡上皮細胞已容易辨識。
第 1 型細胞的來源:仍有爭議
- 培養中第 1 型細胞更新很慢,倍增時間估計 40 至 120 天,提示體內功能上屬終末分化。
- 肺傷害造成上皮剝脫時,第 2 型細胞快速增生以重建上皮連續性,接著失去板層小體等表型特徵,並獲得第 1 型細胞標記;這提示第 1 型細胞的快速補充需要第 2 型細胞作為中介。
- 較新的動物研究則提示,第 1 型肺泡細胞可被誘導離開終末分化狀態而增生。
第 1 型細胞不只是被動的氣體交換膜
- 表面積大、細胞質對細胞核比例小,造就薄的肺泡微血管膜,同時提供大片吸收面。
- 具水通道與離子通道(部分與第 2 型細胞不同),有助維持肺泡相對乾燥。
- 也可能在局部調節細胞增生、發出巨噬細胞聚集的訊號,並調節局部胜肽、蛋白酶與生長因子的功能。
第 2 型細胞的多重功能
- 最為人知的是製造表面張力素(見下節),但還有其他重要功能。
- 局部前驅細胞(local progenitor cells)。
- 與第 1 型細胞一樣,有離子及水通道與離子幫浦,參與水與離子跨上皮移動。
- 含有並分泌重要抗氧化物(超氧化物歧化酶 1、2、3 與麩胱甘肽)及先天宿主防禦分子(SP-A、SP-D、溶菌酶),參與肺泡微環境的解毒與殺菌。
第 2 型細胞也可能加重肺泡疾病
- 製造纖維蛋白原(fibrinogen)、尿激酶型胞漿素原活化因子(urokinase-type plasminogen activator)與組織因子(tissue factor),參與凝血—纖溶串聯,病理情況下尤其明顯。
- 日益被認為是肺內細胞激素與趨化激素的來源,也會製造可促進纖維化的生長因子。
- 上皮細胞、細胞基質、間質細胞與局部發炎細胞之間的交互作用,可能促成傷害與發炎的消退,也可能延長傷後重塑,造成肺破壞與纖維化等不良後果。
- 因此第 2 型細胞過去被譽為肺泡的守護者,實際角色複雜得多。
| 項目 | 第 1 型細胞 | 第 2 型細胞 |
|---|---|---|
| 分化特徵 | 失去板層前囊泡,逐漸變薄 | 板層小體變大、變多,裝填磷脂與蛋白質 |
| 主要功能 | 氣體交換;大片吸收面;維持肺泡相對乾燥 | 製造表面張力素;擔任局部前驅細胞;分泌抗氧化物及先天防禦分子 |
| 增生與更新 | 培養中更新很慢,功能上屬終末分化;動物研究提示可被誘導增生 | 上皮剝脫時快速增生,失去板層小體後獲得第 1 型細胞標記 |
| 水與離子運輸 | 有水通道與離子通道,部分與第 2 型細胞不同 | 有離子及水通道與離子幫浦 |
| 與疾病的關聯 | 可能調節局部細胞增生,並發出巨噬細胞聚集的訊號 | 參與凝血—纖溶串聯;製造細胞激素、趨化激素與促纖維化生長因子 |
表面張力素 Surfactant
生理作用 Physiologic Role
- 肺泡上皮細胞分泌一層薄液體保護氣體交換面。
- 這層水性液體產生的表面張力會對抗肺泡擴張,並促使肺泡在吐氣末塌陷。
- 拉普拉斯定律(law of Laplace):肺泡的塌陷壓力與表面張力成正比,與肺泡半徑成反比。
- 氣液介面上的表面張力素膜在吐氣、肺泡面積縮小時降低表面張力,因而:
- 防止吐氣末肺塌陷(end-expiratory atelectasis);
- 維持功能肺餘量(functional residual capacity);
- 降低下一次肺泡充氣所需的力量。
合成、分泌與回收 Life Cycle
- 表面張力素是磷脂、中性脂質與蛋白質的複雜混合物,由第 2 型肺泡上皮細胞合成、包裝與分泌。
- 儲存:板層小體,一種源自溶酶體、有膜包覆的胞器,會受牽張等多種刺激而調節性分泌。
- 肺泡內:磷脂經過細胞外儲存型態管狀髓磷脂(tubular myelin)。
- 回收:磷脂與蛋白質成分從氣液介面的單層膜移出,回到第 2 型細胞,可重新包裝進板層小體。
- 清除:肺泡巨噬細胞也能吞噬並分解表面張力素成分。
脂質組成與合成調控 Lipid Composition and Regulation
- 最主要的磷脂是飽和的雙棕櫚醯磷脂醯膽鹼(dipalmitoyl phosphatidylcholine, DPPC),其餘為單元不飽和磷脂醯膽鹼、磷脂醯甘油(phosphatidylglycerol)及其他磷脂。
- DPPC 是唯一能把表面壓力降到接近零的表面活性成分。
- 不飽和磷脂與膽固醇等其他脂質,使單層膜在呼吸週期中於體溫下保持流動性。
- 胎肺磷脂含量隨孕週增加,因第 2 型細胞內磷脂合成酵素活性上升。
- 膽鹼併入途徑(choline incorporation pathway)是表面張力素磷脂合成的主要途徑,其酵素表現與活性受發育調控,也可被荷爾蒙誘導。
- 具直接臨床意義的誘導荷爾蒙:糖皮質素,以及提高細胞內環磷酸腺苷(cAMP)的藥物,如 β 腎上腺素促效劑(兼安胎藥)terbutaline。
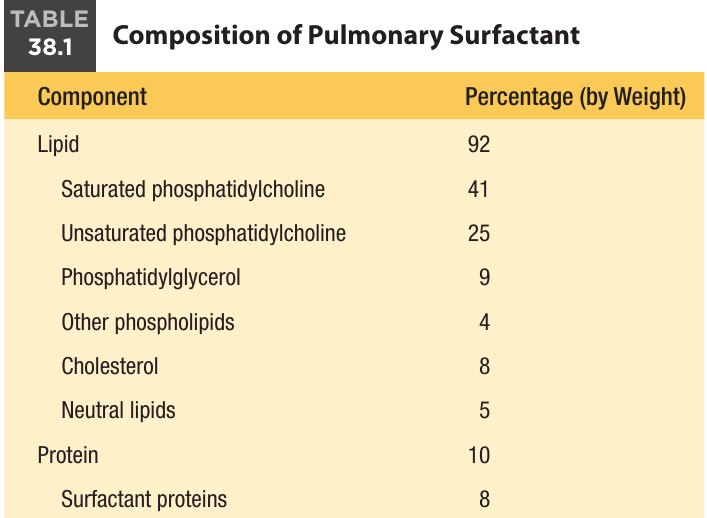
- Table 38.1 重點(重量百分比):脂質 92(飽和磷脂醯膽鹼 41、不飽和磷脂醯膽鹼 25、磷脂醯甘油 9、其他磷脂 4、膽固醇 8、中性脂質 5);蛋白質 10(表面張力素蛋白 8)。
表面張力素蛋白 Surfactant Proteins
| 分類 | 蛋白 | 主要角色 | 發育表現 |
|---|---|---|---|
| 疏水性 Hydrophobic | SP-B | 負責表面張力素的表面活性:把磷脂從管狀髓磷脂帶到表面單層膜、促進磷脂在膜上展開、協助吐氣末膜穩定 | mRNA 14 週可測得;成熟蛋白 24 週後才在胎肺組織測得;羊水中 30 週後才可測得,往足月增加 |
| SP-C | mRNA 最早 12 週可測得;成熟蛋白 24 週後才在胎肺組織測得 | ||
| 親水性 Hydrophilic | SP-A | 宿主防禦、免疫調節、表面張力素清除與代謝 | mRNA 20 週前測不到;羊水中 30 週可測得,往足月增加 |
| SP-D | 第二孕期表現很低;第三孕期羊水中可測得,往足月增加 |
- 表面張力素含一組特定蛋白質,對其功能與宿主防禦都很重要。四種蛋白 SP-A、SP-B、SP-C、SP-D 依物理特性分成疏水性與親水性兩類。
- 疏水性的 SP-B 與 SP-C 共同作用於表面活性;親水性的 SP-A 與 SP-D 主要與防禦、免疫調節及代謝清除有關(見「肺部宿主防禦的發育」)。
SP-B 與 SP-C 的差異
- SP-B 在肺泡健康中居核心地位,因其對表面張力素恆定有關鍵作用。它是分泌性蛋白,與膜有強烈結合。
- SP-C 則有跨膜區段及共價連接的脂肪酸(棕櫚酸),因而是磷脂膜的內在成分。
- 兩者都先合成為大型前驅蛋白,在分泌途徑中經大量轉譯後加工,最後抵達板層小體。
遺傳性 SP-B 缺乏 Inherited SP-B Deficiency
- SP-B 是板層小體形成所必需,患兒的第 2 型細胞沒有板層小體。
- SP-C 的蛋白水解加工在板層小體完成,因此患兒同時缺乏成熟 SP-C,改為累積較大、無功能的 SP-C 前驅物。
- 結果:磷脂組成相對正常,但因 SP-B 與 SP-C 合併缺陷,表面張力素的表面張力特性極差。
SP-C 缺乏(動物)
- SP-C 對 SP-B 加工沒有直接或間接作用,因此 SP-C 缺乏的動物 SP-B 正常、板層小體正常,也不會因表面張力素功能異常而在周產期死亡。
發育與荷爾蒙調控 Developmental and Hormonal Regulation
- 與磷脂合成酵素一樣,SP-B、SP-C 的表現也受發育與荷爾蒙調控。
- mRNA 出現早而成熟蛋白出現晚,原因是前驅物 proSP-B、proSP-C 的轉譯後蛋白水解加工受發育調控。
- 臨床後果:早產兒的兩類表面活性成分(磷脂與疏水性表面張力素蛋白)都不足。
- 第 2 型細胞分化速度(以及連帶的表面張力素製造)受內源性皮質類固醇濃度調節,對早產待產孕婦給予產前糖皮質素可加速。
- 表面張力素系統對產前糖皮質素的反應涵蓋所有關鍵脂質與蛋白質成分,主要透過增加基因表現,等於仿照正常發育模式提早成熟。
- 內源性甲狀腺素、前列腺素與兒茶酚胺對第 2 型細胞成熟及出生時肺液清除也有刺激作用。
- 某些促發炎細胞激素(如 TNF-α、TGF-β)在實驗系統中抑制表面張力素製造,可能在敗血症與發炎等情況下使其下調。
肺血管的發育 Development of the Pulmonary Vasculature
- 肺血管的主要角色是把血流送到腺泡進行氣體交換。
- 胎兒早期,呼吸道是肺血管發育的模板。
血管生成的兩種模式 Vasculogenesis and Angiogenesis
定義
- 血管新生(vasculogenesis):在肺芽周圍組織中從頭形成血管。包覆肺管的間質內,中胚層細胞分化為內皮細胞、增生、排列成索並形成中央管腔。
- 血管增生(angiogenesis):由既有血管的內皮細胞增生與出芽開始,把血管網延伸到血管不足的區域。
- 每個新呼吸道芽入間質時,就形成新的血管叢併入肺循環,動靜脈網隨之延伸。
- 妊娠第 5 週,每條支氣管周圍已有微血管網,並可見血液經此網在右心室與左心房之間循環。
- 小管期開始,新血管由既有血管長出(angiogenesis)。
- 到妊娠第 17 週,所有腺泡前呼吸道及伴行血管都已出現;此前 vasculogenesis 是肺血管發育的主要模式,後期則以 angiogenesis 為主。
- 過去認為兩者依序發生,現在普遍接受兩者在肺發育中同時進行:angiogenesis 主導肺中央部位,vasculogenesis 主導周邊。
- 囊狀期,兩種方式形成的血管網之間相互連接增加。
支氣管循環 Bronchial Circulation
- 人類肺有第二套循環系統,起自背主動脈,供養肺本身的細胞成分。
- 發育晚於肺循環,支氣管血管在妊娠 8 週首次可見。
- 血管網廣泛:成人呼吸道中,支氣管動脈可遠達肺泡管。
微血管成熟 Microvascular Maturation
- 足月時人類肺的肺泡數只有成人的一小部分。氣腔壁是厚的「初級隔(primary septum)」:中央為結締組織,兩側各有一層微血管床,分別面對一個肺泡表面。
- 次級隔(次級嵴)出現後,兩層微血管中的一層在次級隔內摺疊。
- 微血管成熟是把幼年的雙層微血管網融合為成人的單層系統。
- 肺泡表面積與管腔容積擴大壓縮了間質,使微血管網彼此靠近,促成融合。
- 這個過程在出生後第 3 週可見:肺容積增加 25%,同時間質組織容積減少 27%。
- 之後,具成熟融合微血管系統的區域優先生長。
套疊式微血管生長 Intussusceptive Microvascular Growth
- 從出生到青年期,肺容積約增加 23 倍,微血管容積增加 35 倍。
- 近期顯示,微血管容積的增加來自第三種血管發育機制:微血管內形成穿腔組織柱(transluminal tissue pillars),組織柱再擴大,淨增加微血管表面積。
肺動脈的肌肉化 Muscularization of the Pulmonary Arteries
- 第一階段發育早期開始;血管肌肉層最初來自鄰近呼吸道的支氣管平滑肌細胞遷移。
- 第二階段肺動脈肌肉化自小管期開始,持續到妊娠結束;平滑肌細胞由周圍間質發育而來,細胞形狀改變,並開始表現 α-平滑肌肌動蛋白(α-smooth muscle actin)。
- 第三階段主要限於遠端肺,為內皮—間質轉換(endothelial–mesenchymal transition):內皮細胞分裂、脫離內皮層並遷移,表現平滑肌細胞標記。
- 正常情況下,肺動脈肌肉化延伸到終末細支氣管層級;呼吸性細支氣管周圍血管的肌肉化極少或沒有。
- 異常延伸:供應腺泡構造的小動脈有平滑肌異常延伸,見於死於新生兒持續性肺高壓(persistent pulmonary hypertension of the newborn)的嬰兒,也見於先天性橫膈疝氣與重度 BPD 嬰兒。
肺部宿主防禦的發育 Development of Pulmonary Host Defense
- 成人肺每分鐘吸入約 7 L 空氣,其中混有各種可能致病並造成肺傷害的病原。
- 傳導呼吸道上皮持續暴露於吸入的病原,需要有效的先天免疫反應系統作為第一道防線。
- 近端與遠端呼吸道上皮細胞向呼吸道與肺泡分泌抗微生物及抗發炎分子,在清除病原上扮演重要角色。
黏液纖毛清除 Mucociliary Clearance
- 近端呼吸道的黏液纖毛清除成分最早在人類妊娠 11 週出現,包括纖毛上皮細胞、表現黏液素的杯狀細胞及黏膜下腺。
- 相較足月兒,早產兒呼吸道的杯狀細胞相對纖毛細胞較多,使早產兒較容易因黏液纖毛清除不佳而黏液分泌增加、造成阻塞。
抗微生物分子與肺膠原凝集素 Microbial Defense Molecules and Lung Collectins
- 上皮細胞分泌到呼吸道的微生物防禦分子包括:溶菌酶(lysozyme)、C 反應蛋白、乳鐵蛋白(lactoferrin)、膠原凝集素(collectins)、β-防禦素(β-defensins)、cathelicidin CAP-18/LL-37。
- SP-A 與 SP-D 是兩種肺膠原凝集素,最初被視為表面張力素相關蛋白,但它們在肺部宿主防禦的角色大於在表面張力素生物物理中的角色。
- 最初被認定是呼吸道(棒狀細胞)與肺泡(第 2 型細胞)上皮的產物,其實也分泌於其他接觸外界的上皮表面。
- 它們與微生物及發炎細胞交互作用,促進微生物清除,並調節發炎與細胞凋亡反應。
與微生物的結合機制
- 基礎是這些蛋白的碳水化合物辨識區(carbohydrate recognition domains)與糖類結合。
- 革蘭氏陰性菌:取決於 SP-A、SP-D 結合脂多醣(lipopolysaccharide)的能力。
- 革蘭氏陽性菌(包括 B 群 β 型溶血性鏈球菌):取決於辨識外膜成分脂磷壁酸(lipoteichoic acid)。
- 其他:可結合多種真菌及 Pneumocystis carinii,並在抑制多種呼吸道病毒上扮演重要角色,包括 A 型流感病毒與呼吸道融合病毒。
- 兩者碳水化合物辨識區的結構差異,使其對不同糖分子親和力不同,功能互補,也增加與微生物交互作用的多樣性。
對免疫細胞的調節
- 可調節巨噬細胞、嗜中性球、嗜酸性球與淋巴球等多種免疫細胞的功能。
- 促進局部製造趨化因子以吸引巨噬細胞與嗜中性球,以及活化巨噬細胞與嗜酸性球的細胞激素。
- 抑制 T 細胞增生,減弱淋巴球反應。
- 調節用於殺菌的活性氧物質與活性氮物質的製造。
SP-A、SP-D 的發育與荷爾蒙調控
- SP-A:妊娠 20 週前 mRNA 測不到;30 週可在羊水測得,往足月增加。
- SP-A 基因啟動子受 cAMP 與糖皮質素誘導,但對糖皮質素的反應為雙相:較高劑量時 SP-A 表現反而減弱。
- 視網酸類(retinoids)、胰島素與生長因子(包括 TGF-β、TNF-α)抑制 SP-A 基因表現。
- SP-D:發育中的肺在第二孕期表現很低,第三孕期可在羊水測得,往足月增加。
- 兩者濃度在早產後最初幾天明顯上升,並可受病原、毒素與活性氧物質等局部微環境調節。
解毒系統的發育 Development of Detoxification Systems
氧化壓力的來源 Sources of Oxidant Stress
- 氧氣是細胞運作的必要成分,但超過生理範圍可能危害細胞。
- 肺是暴露於大氣氧最高的器官,特別容易受活性氧與自由基傷害。
- 胎肺在子宮內暴露的氧分壓為 20 至 25 mmHg;轉為呼吸空氣時氧分壓上升 4 至 7 倍,構成明顯的氧化壓力。
- 氧自由基來自內源(代謝反應)或外源(空氣污染物、香菸煙霧)。
- 自由基藉由氧化蛋白質、DNA 與脂質傷害肺。因此,抗氧化解毒系統在胎肺轉為呼吸空氣時特別重要。
自由基的種類與傷害 Oxygen Free Radicals and Injury
- 超氧陰離子(superoxide):分子氧加上一個電子還原而成。
- 過氧化氫(hydrogen peroxide):由單一電子轉移至超氧陰離子產生。
- 氫氧自由基(hydroxyl radicals):由過氧化氫與超氧陰離子交互作用產生。
- 傷害機轉:自由電子促進膜脂質過氧化、改變蛋白質暴露胺基酸上的硫氫基等基團,並直接傷害 DNA。
- 暴露於高濃度氧的動物與人類肺部都曾見到上述改變,但劑量反應因物種與年齡而異,結果是上皮完整性改變、間質與氣腔水腫及發炎細胞浸潤。
- 活性氧物質也被認為會增強肺上皮與常駐發炎細胞製造促發炎介質,途徑包括染色質重塑、觸發訊號傳遞路徑與活化轉錄因子。
抗氧化防禦 Antioxidant Defenses
| 類別 | 成員 |
|---|---|
| 非酵素性(主要) | 麩胱甘肽(glutathione)、維生素 C(ascorbate)、維生素 E(主要為 α-tocopherol)、β-胡蘿蔔素、尿酸 |
| 酵素性 | 超氧化物歧化酶(1、2、3)、過氧化氫酶(catalase)、硫氧還蛋白(thioredoxins)、多種過氧化酶 |
- 動物研究顯示許多抗氧化酵素在足月分娩前被誘導;有限資料提示人類胎兒亦然。
- 然而早產動物在氧化性肺傷害時無法誘導抗氧化酵素。
- 因此早產兒發生氧化性肺傷害的風險明顯較高,兩個原因並存:治療呼吸窘迫症候群對氧的需求增加,以及抗氧化防禦發育不足。
肺發育的機制 Mechanisms of Lung Development
胎兒與出生後肺發育仰賴幾項關鍵過程:分支形態發生,使肺芽分支進入周圍間質;靜態與週期性牽張,協助促進小囊形成;肺泡化,擴大氣體交換面積;vasculogenesis 與 angiogenesis,確保上皮表面同時得到氣體交換與營養兩種血管供應。
分支形態發生 Branching Morphogenesis
- 由分支呼吸道柄部上皮細胞加速生長,同時分支尖端生長停滯來達成。
- 需要上皮細胞之間及與鄰近間質的大量溝通,並整合細胞外基質的微環境訊號。
- 經典組織重組實驗(把近端呼吸道間質移植到遠端,反之亦然)顯示:間質對決定分支模式及上皮細胞命運有重要的誘導作用。
- 小鼠模型指出,三種分支模式是假腺體期建立複雜三維呼吸道樹的基本機制:
- 區域分支(domain branching)
- 平面二分叉(planar bifurcation)
- 正交二分叉(orthogonal bifurcation)
- 這些模式在發育中重複使用,且似乎受基因時鐘(genetic clock)控制:先形成側枝,再讓側枝平面二分叉,再以平面旋轉決定分叉方向,由此建立三維結構。
牽張與機械訊號傳導 Stretch and Mechanotransduction
- 物理因素調節肺大小的角色已確立:正常肺生長需要胸腔有足夠空間,以及適當的持續性與週期性擴張力。
- 與肺發育不全相關的情況:
- 影響胸廓骨骼的基因缺陷,及先天性囊狀腺瘤樣畸形(congenital cystic adenomatoid malformations)等佔位性肺腫塊:胸內空間受限。
- 切斷橫膈神經支配以消除胎兒呼吸動作。
- 羊水過少(oligohydramnios)。
靜態牽張:胎兒肺液的製造 Static Stretch: Fetal Lung Fluid Production
- 胎兒肺液由發育中肺的上皮內襯製造,平均 4 至 6 mL/kg/h。
- 喉部外展產生的阻力使液體累積,妊娠期間總量達 20 至 30 mL/kg,產生約 2 至 4 cmH2O 的吐氣末壓力。
- 成分與羊水、血漿都不同。肺液氯離子高於血清,因氣管與遠端肺上皮主動分泌氯離子,主要經由氯離子通道 CLC-2/CLCN2。
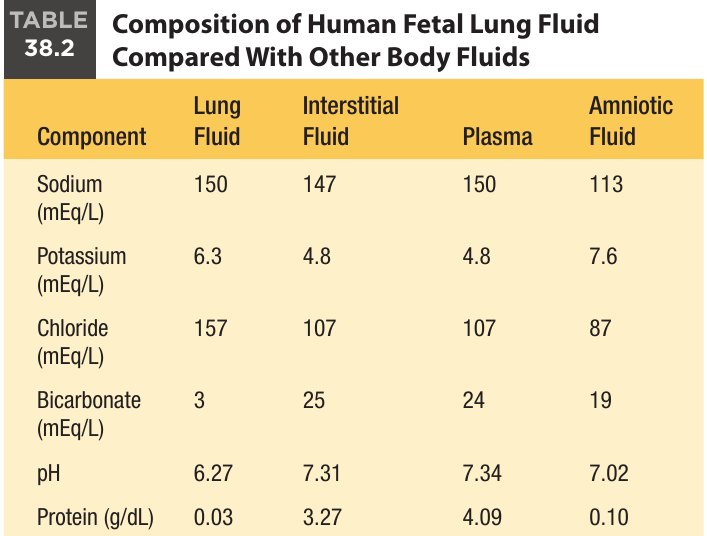
- Table 38.2 重點(肺液/間質液/血漿/羊水):
- 鈉(mEq/L):150/147/150/113
- 鉀(mEq/L):6.3/4.8/4.8/7.6
- 氯(mEq/L):157/107/107/87
- 碳酸氫根(mEq/L):3/25/24/19
- pH:6.27/7.31/7.34/7.02
- 蛋白質(g/dL):0.03/3.27/4.09/0.10
- 影響肺液製造的因子:
- 促進:泌乳素(prolactin)、角質細胞生長因子(keratinocyte growth factor)、前列腺素 E2 與前列腺素 F2。
- 抑制:β 腎上腺素促效劑、血管加壓素(vasopressin)、血清素、升糖素(glucagon)。
出生時的肺液處理
胎兒肺液對發育不可或缺,但出生時是轉為呼吸空氣的重大障礙。呼吸空氣前必須完成三件事,以減少肺液及其對肺泡表面張力的影響:吸收、大量移除、表面張力素成熟。
- 由分泌面轉為吸收面:肺上皮的這項轉換是第三孕期的關鍵事件,部分來自肺泡上皮鈉離子運輸增強。
- 上皮鈉通道(epithelial sodium channel, ENaC):大量證據顯示,第三孕期 ENaC 各成分表現增加,是促進肺泡鈉再吸收的主因,水分被動跟隨鈉移動。
- 不表現 ENaC α 次單元的基因轉殖小鼠,出生後因肺液清除失敗很快死亡。
- 細胞外基質成分變化、糖皮質素、醛固酮與氧氣,都在轉錄層次誘導 ENaC 次單元。
- 提高細胞內 cAMP 的藥物(β 腎上腺素促效劑、磷酸二酯酶抑制劑、cAMP 類似物)不增加 ENaC 通道數量,但增加通道開放機率。
- 糖皮質素與甲狀腺素對「預備」肺上皮很重要,使其在接近足月時能回應 β 腎上腺素促效劑對鈉運輸的作用。
- 臨床含意:產前使用糖皮質素與安胎藥,可能透過促進肺液再吸收及增加表面張力素,改善早產兒肺功能。
- 水通道(aquaporin):在胎兒晚期也被誘導。水通道對液體跨膜移動顯然必要,但不表現 aquaporin 5 及/或 aquaporin 1 的基因轉殖小鼠仍能存活過周產期,所以它們對肺液清除的重要性較不確定。
分娩的角色
- 足月分娩時,只轉為吸收面還不足以把肺液減到最少。
- 沒有經歷陣痛的剖腹產,因缺少子宮收縮,肺液滯留的發生率增加。
- 頭頸娩出時,子宮持續收縮壓迫胎兒胸部,促使大量液體排出;但動物研究提示陣痛中胸部壓迫的益處不大。
- 陣痛促進肺液清除的主要機制是荷爾蒙作用,尤其是兒茶酚胺改變 ENaC 通道的開放機率。
- 開始呼吸空氣時胸內負壓增加,有助把殘餘肺液清到肺泡周圍的疏鬆間質組織,再經淋巴管與肺血管再吸收。
- 一般認為過渡完成後,肺內殘餘液體量約為 0.37 mL/kg 體重。
週期性牽張:胎兒呼吸動作 Cyclic Stretch: Fetal Breathing Movements
- 人類胎兒最早在妊娠 10 週可測得,是肺生長的必要刺激。
- 時間比例:24 至 28 週占 10% 至 20% 的時間,30 週後增至 30% 至 40%;持續呼吸的時段隨孕週延長。
- 型態:源自橫膈,頻率與幅度不規則;移動的液量很小,不足以從氣管清出。
- 速率:每分鐘 30 至 70 次,也曾記錄到長達 2 小時的呼吸暫停。
- 影響因素:隨睡眠狀態變化(安靜睡眠時受抑制),有晝夜變化,清晨最低。
- 荷爾蒙:陣痛開始時胎兒呼吸受抑制,歸因於循環前列腺素升高。
- 母體藥物:
- 中樞神經興奮劑(咖啡因、安非他命)與胎兒呼吸增加有關。
- 抑制劑(麻醉劑、麻醉性止痛藥、尼古丁、乙醇)與胎兒呼吸減少有關。
- 動物研究清楚顯示,無論原因為何,胎兒呼吸永久停止都與肺生長受損有關;短期頻率與幅度變化對肺發育的影響則未知。
綜合而言,肺液製造與滯留帶來的持續擴張壓,加上陣發的週期性胎兒呼吸,是胎兒期肺生長的重要機制。
肺泡化 Alveolarization
- 分支形態發生建立傳導呼吸道,肺泡化則建立氣體交換所需的大表面積。
- 從出生(肺泡數 0 至 50 百萬)到成年(>300 百萬),表面積增加 20 倍。
- 既有定論:原始小囊長出低矮的脊(初級隔),把小囊分成含初級肺泡的肺泡管;脊之間的外突(次級隔/次級嵴)形成次級肺泡。
- 不過也有研究把次級隔描述為三維環狀結構。
- 隔的形成對微血管成熟十分重要,也帶來科恩氏孔(pores of Kohn),使腺泡之間氣體相通,並提供巨噬細胞在肺泡間自由移動的路徑。
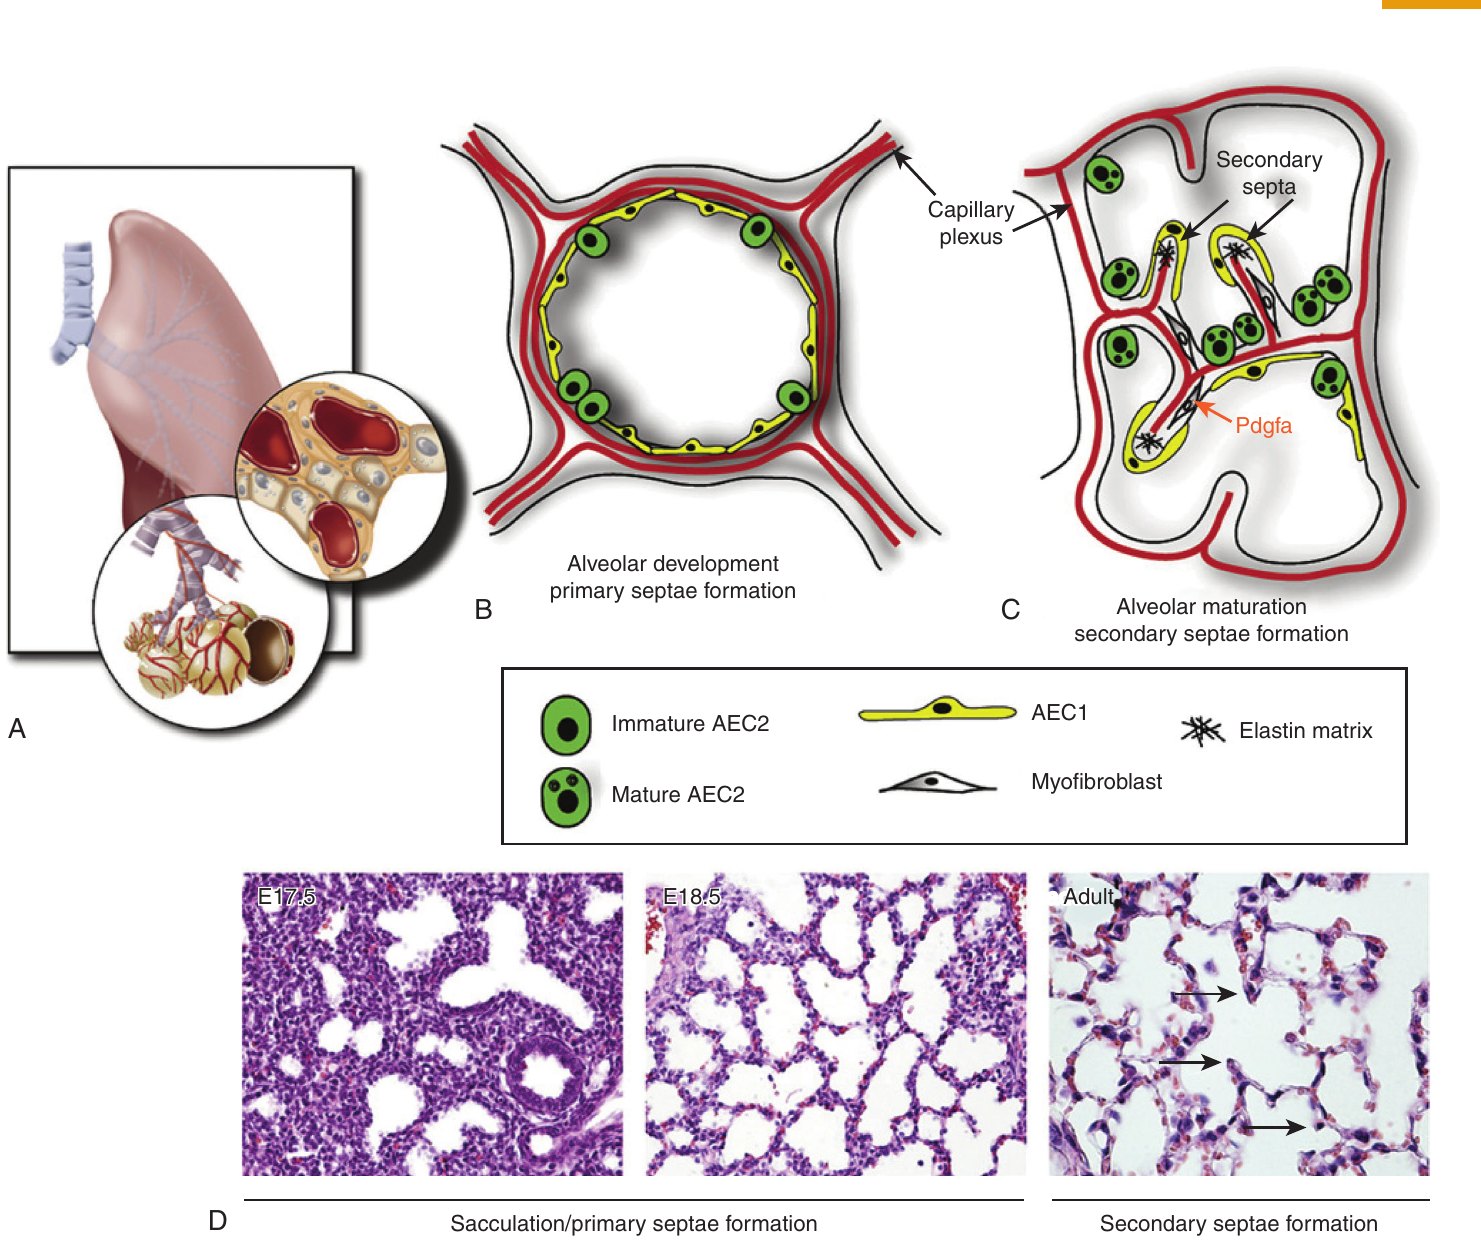
- 此主題發展快速,並受到愈來愈多關注,因為死於重度 BPD 的嬰兒呈現肺泡簡化(alveolar simplification),幾乎看不到次級隔形成。
- 尚不清楚:單純早產(沒有其他傷害)會在多大程度上永久改變肺泡化潛力,以及早產後發育程序能否恢復。
肺泡與血管發育的相互依存 Interdependence of Alveolar and Vascular Development
- 近期證據提示,肺微血管床會主動促進正常肺泡發育、終生維持肺泡結構,並可能促成成人退化性肺病。
- BPD 同時出現呼吸道與血管異常,支持這項假說。
- 只要肺泡持續增加數量與大小,腺泡內動靜脈就在出生後持續以 angiogenesis 發育。
- 這很可能是雙向過程:遠端氣腔周圍的血管生長,提示肺泡上皮細胞也有誘導作用。
肺發育的分子基礎 Molecular Basis for Lung Development
- 器官生成的各發育過程,受相互依存的訊號路徑調控;這些路徑由分泌性生長因子媒介,而生長因子又受龐大的轉錄因子網路控制。
- 腎臟、乳腺等同樣依賴分支形態發生的器官,其基因調控網路也見於肺。
- 以下為本章選列的調控網路。
生長因子 Growth Factors in Lung Development
FGF10 與分支形態發生
- 分支的啟動來自發育中肺上皮管與周圍間質的訊號交互作用。
- 核心是纖維母細胞生長因子(fibroblast growth factors, FGFs)家族:由間質細胞製造分泌,與上皮細胞膜上的受體結合,形成間質—上皮對話。
- 間質分泌的 FGF10 與鄰近上皮的受體 FGFR2IIIb(FGF receptor 2 isoform IIIb)結合。因間質內有聚焦的 FGF10 濃度梯度,分支呼吸道尖端的上皮細胞訊號最強。
- 活化FGF10 結合 FGFR2IIIb,活化上皮細胞內的 MAPK(mitogen-activated protein kinase)路徑。
- 下游引發一連串訊號,調節細胞黏附、細胞骨架與細胞極性,這些都是細胞遷移的必要元素。
- 負回饋受 FGF10/FGFR2IIIb 訊號誘導的基因之一 SPRY2 抑制 MAPK 路徑,進一步抑制 FGF10/FGFR2IIIb 訊號。
- 因此,間質傳來的訊號,其效果在上皮細胞內受到嚴密調控。
- FGF10 訊號必須極為精準:
- FGF10 表現降低的動物發生肺發育不全,大呼吸道數量減少。
- 胎肺發育期在小鼠肺內注射重組 FGF10 使訊號增強,會產生囊狀構造,其上皮特徵取決於注射位置:近端含棒狀細胞,遠端含第 2 型肺泡上皮細胞。
- 這些資料有力地支持:FGF10 訊號依時間及/或空間脈絡產生多樣反應,從啟動分支到上皮細胞分化。
VEGF 與血管發育
- 肺血管發育同樣需要多種血管訊號分子,依特定時空順序交互作用。
- 血管內皮生長因子(vascular endothelial growth factor, VEGF)是 angiogenesis 與 vasculogenesis 的關鍵生長因子。
- 人類胎肺中,VEGF 配體由上皮細胞表現,受體(VEGFRs)由內皮細胞表現,再次說明氣腔與血管發育相互依存。
- VEGF mRNA 與蛋白質定位於發育中肺分支遠端尖端的上皮細胞,表現量隨時間增加。
- 生長中胎肺的缺氧環境,透過感測氧氣的缺氧誘導因子(hypoxia-inducible factor)轉錄因子家族,誘導上皮細胞表現 VEGF 基因。
- 單一 VEGF 基因可產生五種蛋白異構體,其中 VEGFA(VEGF165)研究最多。各異構體對三種 VEGFR 親和力不同。
| 受體 | 表現位置 | 作用 |
|---|---|---|
| VEGFR1(Flt-1) | 血管內皮細胞 | 似乎對把原始內皮管轉變為較穩定的血管網更重要,部分藉由下調 VEGF 製造來減少內皮增生 |
| VEGFR2(Flk-1/kinase insert domain receptor) | 血管內皮細胞;被視為內皮前驅細胞最早的標記 | VEGFA 經此誘導內皮細胞增生與遷移(血管出芽的關鍵)及管腔形成 |
| VEGFR3(Flt-4) | 淋巴管內皮細胞膜 | 原文未進一步說明 |
- VEGFRs 從妊娠很早期就表現在發育中呼吸道周圍的內皮細胞膜上。
- VEGF 表現降低的動物胚胎致死,證明 VEGF/VEGFR 訊號對胎兒血管發育極其重要,不過這不限於肺血管。
轉錄因子 Transcription Factors in Lung Development
- 分支形態發生與肺血管發育所需的配體—受體交互作用,部分取決於轉錄因子促進或減少基因表現的作用。
- 轉錄因子對呼吸道上皮分化及遠端肺第 1、2 型肺泡上皮分化也很關鍵。
TTF-1(NKX2-1)
- 肺內最重要的轉錄因子是甲狀腺轉錄因子 1(thyroid transcription factor 1, TTF-1),為 NKX2-1 基因的產物,被視為肺發育的主調控因子(master regulator)。
- NKX2-1 基因剔除小鼠完全沒有肺分支。
- 沿分支肺上皮由近到遠建立細胞命運,表現最終較侷限於棒狀細胞與第 2 型肺泡細胞。
- 對分化上皮特有基因的表現非常關鍵,例如棒狀細胞的 SCGB1A1 及第 2 型細胞的表面張力素蛋白。
- 四個表面張力素基因、SCGB1A1 及 NKX2-1 本身的啟動子都有其 DNA 結合位點,形成正回饋迴路,維持 TTF-1 持續表現。
- TTF-1 功能高度依賴關鍵胺基酸的磷酸化,但參與的激酶仍不清楚。
- 無法磷酸化 TTF-1 的動物 VEGFA 表現降低,這是上皮與血管發育之間的另一個重要連結。
- TTF-1 本身受其他轉錄因子調控,它們結合 NKX2-1 啟動子區,特別是肝細胞核因子 3β(hepatocyte nuclear factor 3β)與 GATA 結合蛋白 6(GATA-binding protein 6)。
胎肺發育時,轉錄因子網路協調地結合 DNA 調控元件,促成生長因子網路的時空表現,由此推動分支形態發生、產生構成人類肺的約 40 種細胞類型,並協調上皮與血管發育。
肺發育的疾患 Disorders of Lung Development
正常肺發育程序通常以固定模式進行;特定發育窗口內的形態發生缺陷,會造成可辨識的人類肺部畸形。
| 疾病 | 與氣管支氣管樹相通 | 血液供應/引流 | 特點 |
|---|---|---|---|
| CPAM | 有 | 保有正常血液供應 | 最常見;約每 2500 至 8000 活產 1 例 |
| 先天性肺葉氣腫 | 有 | 原文未述 | 占先天性肺部畸形 10%;一或多個肺葉過度充氣 |
| 支氣管肺隔離症 | 無 | 體循環動脈供應(通常為胸主動脈或其分支) | 無功能肺組織;肺葉外型 85%、肺葉內型 15% |
| ACD/MPV | 原文未述 | 肺微血管遠離肺泡;肺靜脈錯位 | 罕見,幾乎一律致死;與 FOXF1 突變相關 |
先天性肺呼吸道畸形 Congenital Pulmonary Airway Malformations
- CPAMs 是最常見的先天性肺部畸形,為一群肺內呼吸道分支病灶,發生率約每 2500 至 8000 活產 1 例。
- 與氣管支氣管樹相通,保有正常血液供應。
- 依推定起源部位、大小與上皮內襯性質分成 5 個亞型,稱為斯托克分類(Stocker's classification)。
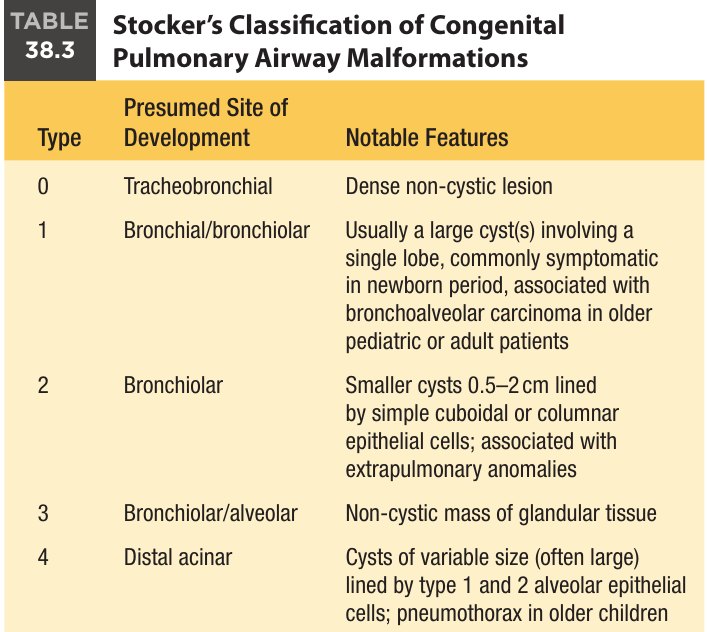
- Table 38.3 重點:
- 第 0 型(氣管支氣管):緻密的非囊性病灶。
- 第 1 型(支氣管/細支氣管):通常為侵犯單一肺葉的大囊腫,新生兒期常有症狀,與年長兒童或成人的支氣管肺泡癌(bronchoalveolar carcinoma)相關。
- 第 2 型(細支氣管):較小囊腫 0.5–2 cm,內襯單層立方或柱狀上皮,與肺外異常相關。
- 第 3 型(細支氣管/肺泡):腺體組織構成的非囊性腫塊。
- 第 4 型(遠端腺泡):大小不一(常較大)的囊腫,內襯第 1、2 型肺泡上皮細胞;年長兒童可發生氣胸。
- 臨床表現差異很大:胎兒與新生兒可無症狀,也可發展為非免疫性水腫(non-immune hydrops)。
- 第 2 型合併肺外重大先天異常的發生率為 50% 至 60%。
- 產前預後工具:產前超音波的 CPAM 體積比(CPAM-volume ratio, CVR)曾用於預測臨床結果,但除了水腫發生之外,對新生兒結果尚無明確參數。
- 病因:確切分子缺陷未知。推測機轉包括近端分支程序被異位應用於遠端,或發育中局部阻塞不可逆地破壞分支。
先天性肺葉氣腫 Congenital Lobar Emphysema
- 比 CPAMs 少見,占先天性肺部畸形的 10%。
- 與氣管支氣管樹相連,表現為一或多個肺葉過度充氣。
- 最常侵犯左上葉或右中葉,可能造成空氣滯留並壓迫鄰近肺組織。
支氣管肺隔離症 Bronchopulmonary Sequestration
- 與 CPAMs 或先天性肺葉氣腫不同,不與氣管支氣管樹相通,由體循環動脈供應,通常來自胸主動脈或其分支。
- 是無功能的肺組織島。
- 肺葉外型(extralobar,85%):體靜脈引流,較常見。
- 肺葉內型(intralobar,15%):經肺循環引流至左心房,較少見。
肺泡微血管發育不良合併肺靜脈錯位 Alveolar Capillary Dysplasia With Misalignment of the Pulmonary Veins
- ACD/MPV 是遠端肺氣腔最受注目的先天畸形,罕見且幾乎一律致死。
- 病理診斷要件:
- 肺葉發育不成熟(immature lobar development)。
- 肺微血管位置遠離肺泡。
- 肺靜脈「錯位」,與小肺動脈包在同一外膜鞘內。
- 臨床:從出生 24 至 48 小時起,進行性且持續惡化的低血氧。
- 合併異常:多數(50% 至 80%)有重大肺外先天異常,包括先天性橫膈疝氣、先天性心臟病或腸閉鎖。
- 遺傳:與 FOXF1 突變相關。若嬰兒有不明原因低血氧及其他異常,且已知含此基因的區段有染色體缺失,應考慮 ACD/MPV。
肺發育的新概念 Novel Concepts in Lung Development
肺的幹細胞與前驅細胞 Stem/Progenitor Cells in the Lung
定義
- 幹細胞(stem cells):未分化,自我更新能力無限。不對稱分裂時,一個子細胞維持自我更新,另一個走向較終末的分化。
- 前驅細胞(progenitor cells):分化方向較固定,能自我更新,但細胞命運較受限。
肺上皮替換因老化或傷害受損細胞的能力,受到愈來愈多關注。結合譜系追蹤與肺傷害動物模型的實驗,已找到數種上皮前驅細胞。
| 細胞 | 位置/標記 | 可產生 |
|---|---|---|
| 基底細胞 | 大呼吸道與黏膜下腺;表現 p63 與細胞角蛋白 5(cytokeratin 5) | 自我更新;纖毛細胞與分泌細胞 |
| 棒狀細胞 | 較小呼吸道;表現棒狀細胞分泌蛋白 | 自我更新;僅分化為棒狀細胞或纖毛細胞(分化方向較固定) |
| 支氣管肺泡幹細胞(bronchoalveolar stem cells, BASCs) | 棒狀細胞的亞群,位於細支氣管肺泡管交界;對某些肺傷害有抗性;棒狀細胞分泌蛋白與 SP-C 皆陽性 | 可能產生棒狀細胞或第 2 型肺泡細胞;似乎參與上皮修復 |
| 神經內分泌細胞 | 較小呼吸道 | 受傷後自我更新;產生棒狀細胞與纖毛細胞 |
| 第 2 型肺泡細胞 | 肺泡;最受限的肺上皮前驅細胞 | 快速分裂以重建受損肺泡的上皮連續性,再轉分化(transdifferentiates)為第 1 型細胞 |
- 間質前驅細胞研究較少。已找到候選細胞,可在 vasculogenesis 中產生內皮細胞,並沿分支肺上皮管產生呼吸道平滑肌細胞。
解讀時的限制
- 肺幹細胞/前驅細胞存在的證據雖強,但大多限於肺發育與修復的小鼠模型。小鼠終末細支氣管到肺泡的移行與人類不對等,外推到人類應謹慎。
- 自我更新能力誘人,但這類細胞也必然有自主生長(如癌症)的風險。
- 能否利用這些細胞矯正肺發育異常(肺發育不全)、肺部遺傳疾病(囊性纖維化)與受傷肺的異常修復(BPD),仍有爭議。
肺發育與成熟的表觀遺傳調控 Epigenetic Regulation of Lung Development and Maturation
- 理解早產的影響與開發肺保護療法,核心在於了解正常發育的調控與異常發育的後果。
- 愈來愈多表觀遺傳機制被認識,挑戰了 DNA→RNA→蛋白質的中心法則,包括組蛋白修飾、DNA 與 RNA 修飾、silencing RNA 及微小 RNA(microRNA, miRNA)。
miRNA
- miRNA 在正常胎肺發育中的重要性已明確。
- 細胞內的小型非編碼 RNA,長度一般 19 至 22 個核苷酸,使目標基因的 RNA 降解或抑制蛋白質合成。
- 已知超過 500 種,部分在肺細胞族群中特別豐富。
- 生成:始於細胞核,長的初級 miRNA 被轉錄、加工並輸出細胞核,在細胞質進一步成熟,之後才能與 mRNA 區域作用,通常在 3′ 非轉譯區。
- 對 miRNA 加工的關鍵酵素 dicer 進行標靶刪除,會造成呼吸道發育異常與肺內過度細胞凋亡,顯示 miRNA 是正常肺發育所必需。
- miR-17-92 叢集:在胚胎小鼠肺高度表現,隨發育進展到成年而下降。其表現改變提示,這群 miRNA 在分支形態發生時主要負責維持呼吸道上皮的 E-cadherin 表現。
長鏈非編碼 RNA Long Noncoding RNAs(lncRNAs)
- 新型非編碼 RNA,同樣調節肺發育。長度 >200 個核苷酸,比 mRNA 不穩定,修飾較少,可穩定染色質而調節基因轉錄。
- 數種 lncRNA 的表現在時空上與肺發育關鍵轉錄因子相關。
- 特性最清楚的是 NANCI(Nkx2.1-associated noncoding intergenic RNA),調節鄰近的 Nkx2.1 表現。體內抑制 NANCI 會造成肺小囊形成與上皮分化缺陷。
治療上的展望與障礙
- 非編碼 RNA 調節發育與病理過程,因此愈來愈被視為治療標靶。
- 障礙與其他基因治療相似:給藥方式、細胞與組織專一性、脫靶效應。
總結 Summary
- 肺分支形態發生與肺血管發育互相協調,提供大表面積與薄的肺泡微血管膜,以完成轉為呼吸空氣時的氣體交換,並滿足成長中嬰兒與兒童的需求。
- 表面張力素系統雖在胎肺發育晚期才成熟,對呼吸空氣的過渡及維持氣體交換面通暢同樣關鍵。
- 胎肺發育除了需要多種轉錄因子、荷爾蒙與生長因子,也同等依賴:完整的神經輸入以調節胎兒呼吸、大小適當且穩定的胸廓,以及足夠的肺液與羊水。
- 宿主防禦與解毒系統的成熟,降低了過渡時氧分壓上升與病原暴露的影響。
- 早產影響上述所有功能(Table 38.4)。BPD 是多重傷害作用於早產兒未發育完全之肺的淨結果,損害出生後的生長發育,進而損害功能。
- 反映這些肺功能相互依存的整合性治療,最有希望減少早產對兒童期以至成人肺功能的影響。
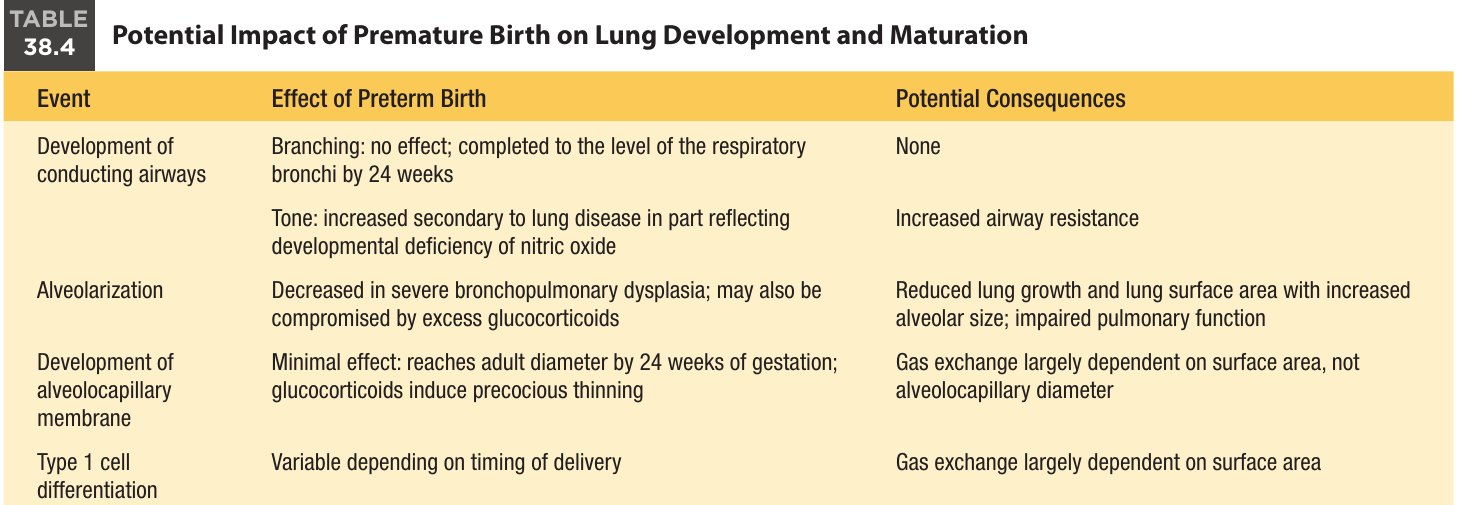
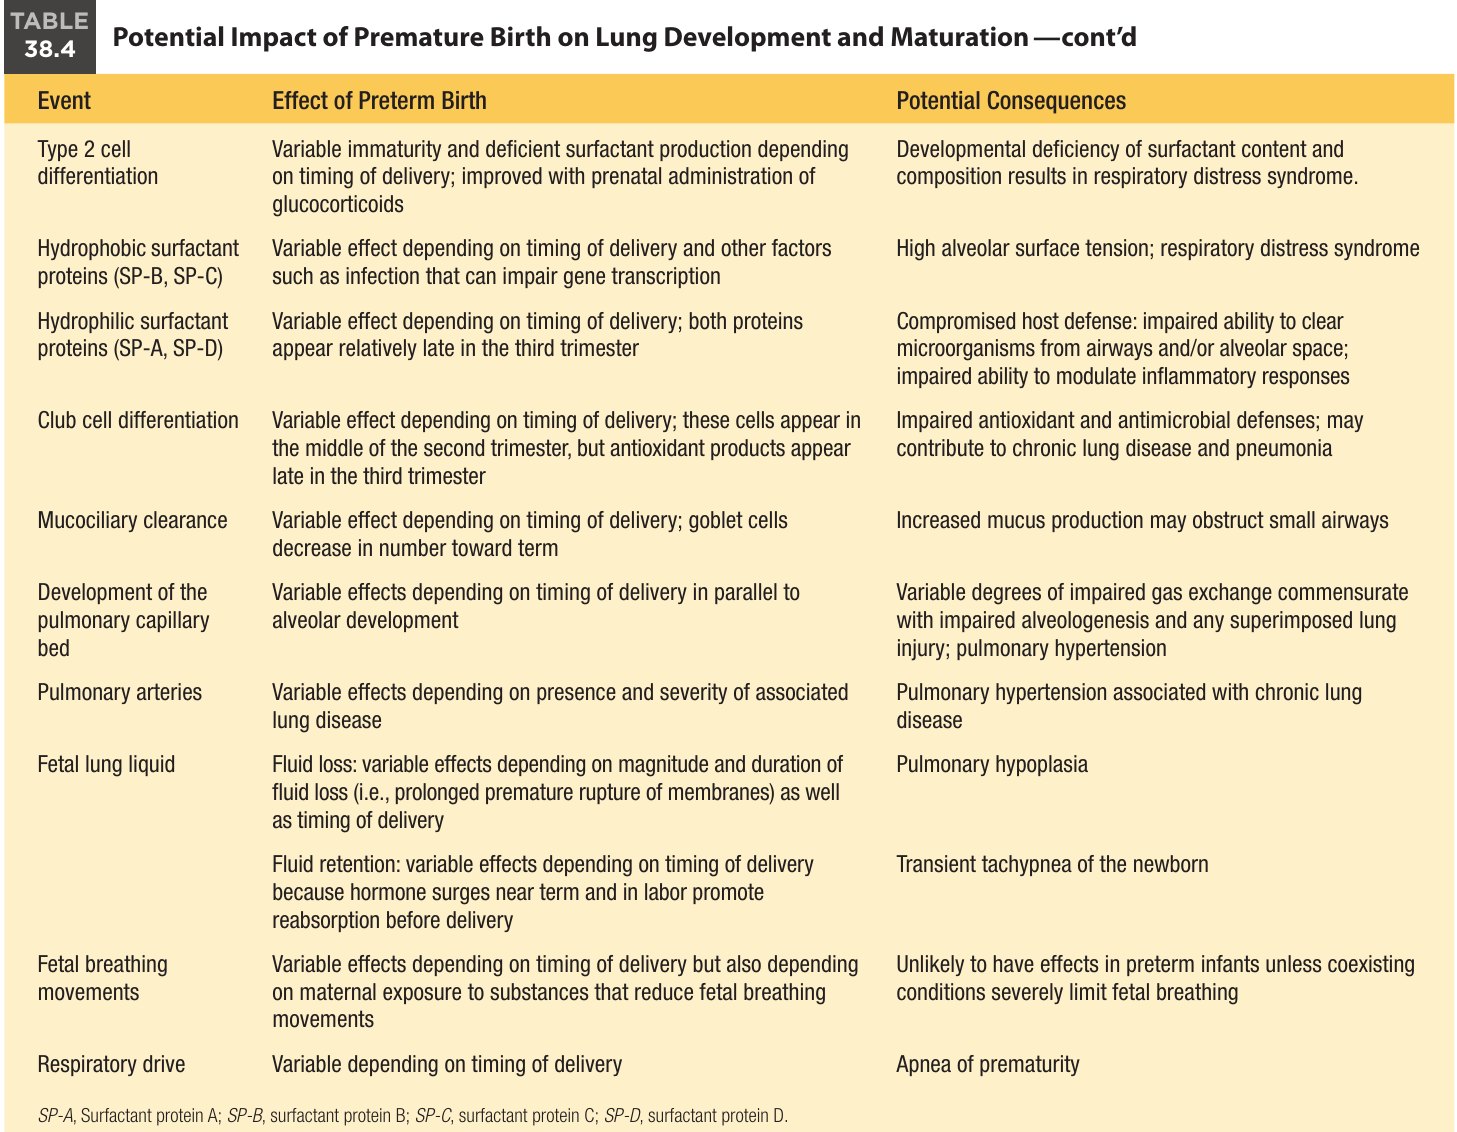
- Table 38.4 重點(事件:早產影響 → 潛在後果):
- 傳導呼吸道分支:無影響,24 週已完成至呼吸性支氣管層級 → 無。
- 呼吸道張力:因肺部疾病而增加,部分反映一氧化氮的發育性缺乏 → 呼吸道阻力增加。
- 肺泡化:重度 BPD 時減少,也可能因糖皮質素過量而受損 → 肺生長與肺表面積減少、肺泡變大、肺功能受損。
- 肺泡微血管膜:影響極小,妊娠 24 週已達成人厚度;糖皮質素誘導提早變薄 → 氣體交換主要取決於表面積,而非膜厚度。
- 第 1 型細胞分化:依分娩時機而異 → 氣體交換主要取決於表面積。
- 第 2 型細胞分化:不同程度的不成熟與表面張力素不足,依分娩時機而異;產前糖皮質素可改善 → 表面張力素含量與組成的發育性缺乏造成呼吸窘迫症候群。
- SP-B、SP-C:依分娩時機及感染等可損害基因轉錄的因素而異 → 肺泡表面張力高、呼吸窘迫症候群。
- SP-A、SP-D:依分娩時機而異,兩者在第三孕期相對晚才出現 → 宿主防禦受損:清除呼吸道及/或肺泡空間微生物的能力及調節發炎反應的能力受損。
- 棒狀細胞分化:依分娩時機而異;細胞在第二孕期中段出現,但抗氧化產物要到第三孕期晚期 → 抗氧化與抗微生物防禦受損,可能促成慢性肺病與肺炎。
- 黏液纖毛清除:依分娩時機而異;杯狀細胞數量往足月減少 → 黏液增加,可能阻塞小呼吸道。
- 肺微血管床:依分娩時機而異,與肺泡發育平行 → 不同程度的氣體交換受損(與肺泡生成受損及疊加的肺傷害相稱)、肺高壓。
- 肺動脈:依相關肺病的有無與嚴重度而異 → 慢性肺病相關的肺高壓。
- 胎兒肺液流失:依流失量、持續時間(如早產前期長時間破水)及分娩時機而異 → 肺發育不全。
- 胎兒肺液滯留:依分娩時機而異,因接近足月與陣痛時的荷爾蒙激增促進分娩前再吸收 → 新生兒暫時性呼吸急促(transient tachypnea of the newborn)。
- 胎兒呼吸動作:依分娩時機及母體暴露於減少胎兒呼吸之物質而異 → 除非並存情況嚴重限制胎兒呼吸,否則不太可能影響早產兒。
- 呼吸驅動:依分娩時機而異 → 早產兒呼吸暫停(apnea of prematurity)。
跨系統發育時間總覽 Developmental Milestones Across Systems
| 時間 | 結構與上皮 | 血管 | 表面張力素、液體與功能 |
|---|---|---|---|
| 第 25 天 | 喉氣管溝(肺芽)出現 | — | — |
| 4–8 週 | 4 週軟骨始於原始氣管;6–8 週可見平滑肌;7 週氣管與次肺段支氣管可見,胸腹膜皺襞閉合 | 5 週支氣管周圍有微血管網;8 週可見支氣管血管 | — |
| 10–14 週 | 10 週軟骨達主支氣管;11–16 週出現多纖毛細胞;12 週未成熟基底細胞;13 週分泌細胞 | — | 10 週胎兒呼吸動作可測得;12 週 SP-C mRNA;14 週 SP-B mRNA |
| 16–20 週 | 16 週末支氣管分支完成;16–17 週棒狀細胞出現 | 17 週腺泡前血管皆已出現 | 20 週前測不到 SP-A mRNA |
| 23–25 週 | 23–34 週棒狀細胞劇增;約 25 週軟骨達終末細支氣管 | — | 約 24 週肺泡微血管膜達 0.6 μm;24 週後可測得成熟 SP-B、SP-C |
| 30 週以後 | 最早 36 週出現真正肺泡 | 囊狀期血管網連接增加 | 30 週羊水可測得 SP-A 與 SP-B;30 週後胎兒呼吸占 30%–40% 時間;第三孕期上皮轉為吸收面 |
| 出生後 | 前 6 個月大量肺泡化;至 2 歲持續;第 2 個月軟骨包覆完成 | 第 3 週可見微血管融合;至 3 歲微血管成熟 | 肺液過渡完成後殘餘約 0.37 mL/kg;早產後 SP-A、SP-D 於最初幾天明顯上升 |
臨床反思:NICU 視角 Clinical Reflection—NICU Perspective
臨床上可帶走的重點
- 24 週是結構上的分界:肺泡微血管膜約在此時足以進行氣體交換,之後氣體交換效率取決於可用表面積。
- 足月肺仍未完成:肺泡化主要在出生後發生,出生時的傷害落在持續進行的發育程序上;死於重度 BPD 的嬰兒可見肺泡簡化,幾乎沒有次級隔。
- 早產兒的表面張力素問題是雙重的:磷脂與疏水性蛋白都不足;產前糖皮質素的作用涵蓋所有關鍵脂質與蛋白質成分。
- 產前糖皮質素與安胎藥可能有兩條獲益路徑:增加表面張力素,以及促進肺液再吸收。
- 未經陣痛的剖腹產肺液滯留增加;陣痛的主要作用可能是兒茶酚胺影響 ENaC,胸部壓迫的益處不大。
- 氧氣的兩面性:出生本身使氧分壓上升 4 至 7 倍;早產兒對氧的需求增加,抗氧化防禦卻發育不足。
- 早產兒防禦能力較弱:杯狀細胞相對纖毛細胞較多,易有黏液阻塞;SP-A、SP-D 及棒狀細胞抗氧化產物都出現得晚。
- 肺發育不全的線索:胸廓空間受限、胸內腫塊、橫膈神經支配喪失、羊水過少,以及長時間破水造成的肺液流失。
- 難以解釋的進行性低血氧:出生 24 至 48 小時開始、合併其他異常,尤其已知含 FOXF1 區段缺失時,要考慮 ACD/MPV。
- 整合思維:本章結論指出,反映肺功能相互依存的整合性治療,最有希望減少早產對長期肺功能的影響。
閱讀時請留意 Points to Verify
原文內部不一致
- 囊狀期結束時間:內文寫 24 至 38 週,Fig. 38.1 的 Saccular 區段止於 36 週,內文也說真正肺泡最早 36 週出現。原文提到各階段可能重疊,但兩處數字不同。
- Table 38.1 百分比:脂質 92 與蛋白質 10 兩大類相加已超過 100;脂質各細項加總為 92,與表內一致。
- 黏膜下腺發育階段:內文說五個階段,但列舉的文字依逗號只分出四項(除非「出芽」與「侵入固有層」算兩階段)。
- 兒童期肺容積與體重:內文說 2 歲到成年肺組織擴張與體重增加成比例,又說 4 歲到青春期肺容積增加明顯超過體重,兩個年齡區間重疊而描述不同。
- 肺動脈肌肉化起點:內文先說始於發育早期,下一處又說始於小管期。
- Table 38.4「respiratory bronchi」:表格寫分支 24 週完成至 respiratory bronchi;內文用詞是傳導呼吸道完成至 terminal bronchioles,並說支氣管分支 16 週末完成。
- SP-A、SP-D 出現時間:Table 38.4 說在第三孕期相對晚才出現;內文說 SP-A 30 週即可在羊水測得。
- Fig. 38.1 圖說:圖說提到小鼠各階段標示了關鍵轉錄因子,但圖上未見轉錄因子標示。
- 疑似誤植或用語待查:內文「laryngeal abduction」造成肺液累積的阻力、ACD/MPV 病理要件「immature lobar development」,以及分泌細胞「declines in the third trimester relative to adulthood」的比較基準,三處皆照原文,建議對照原書或其他來源確認。